Ионофоры: перенос ионов через мембрану
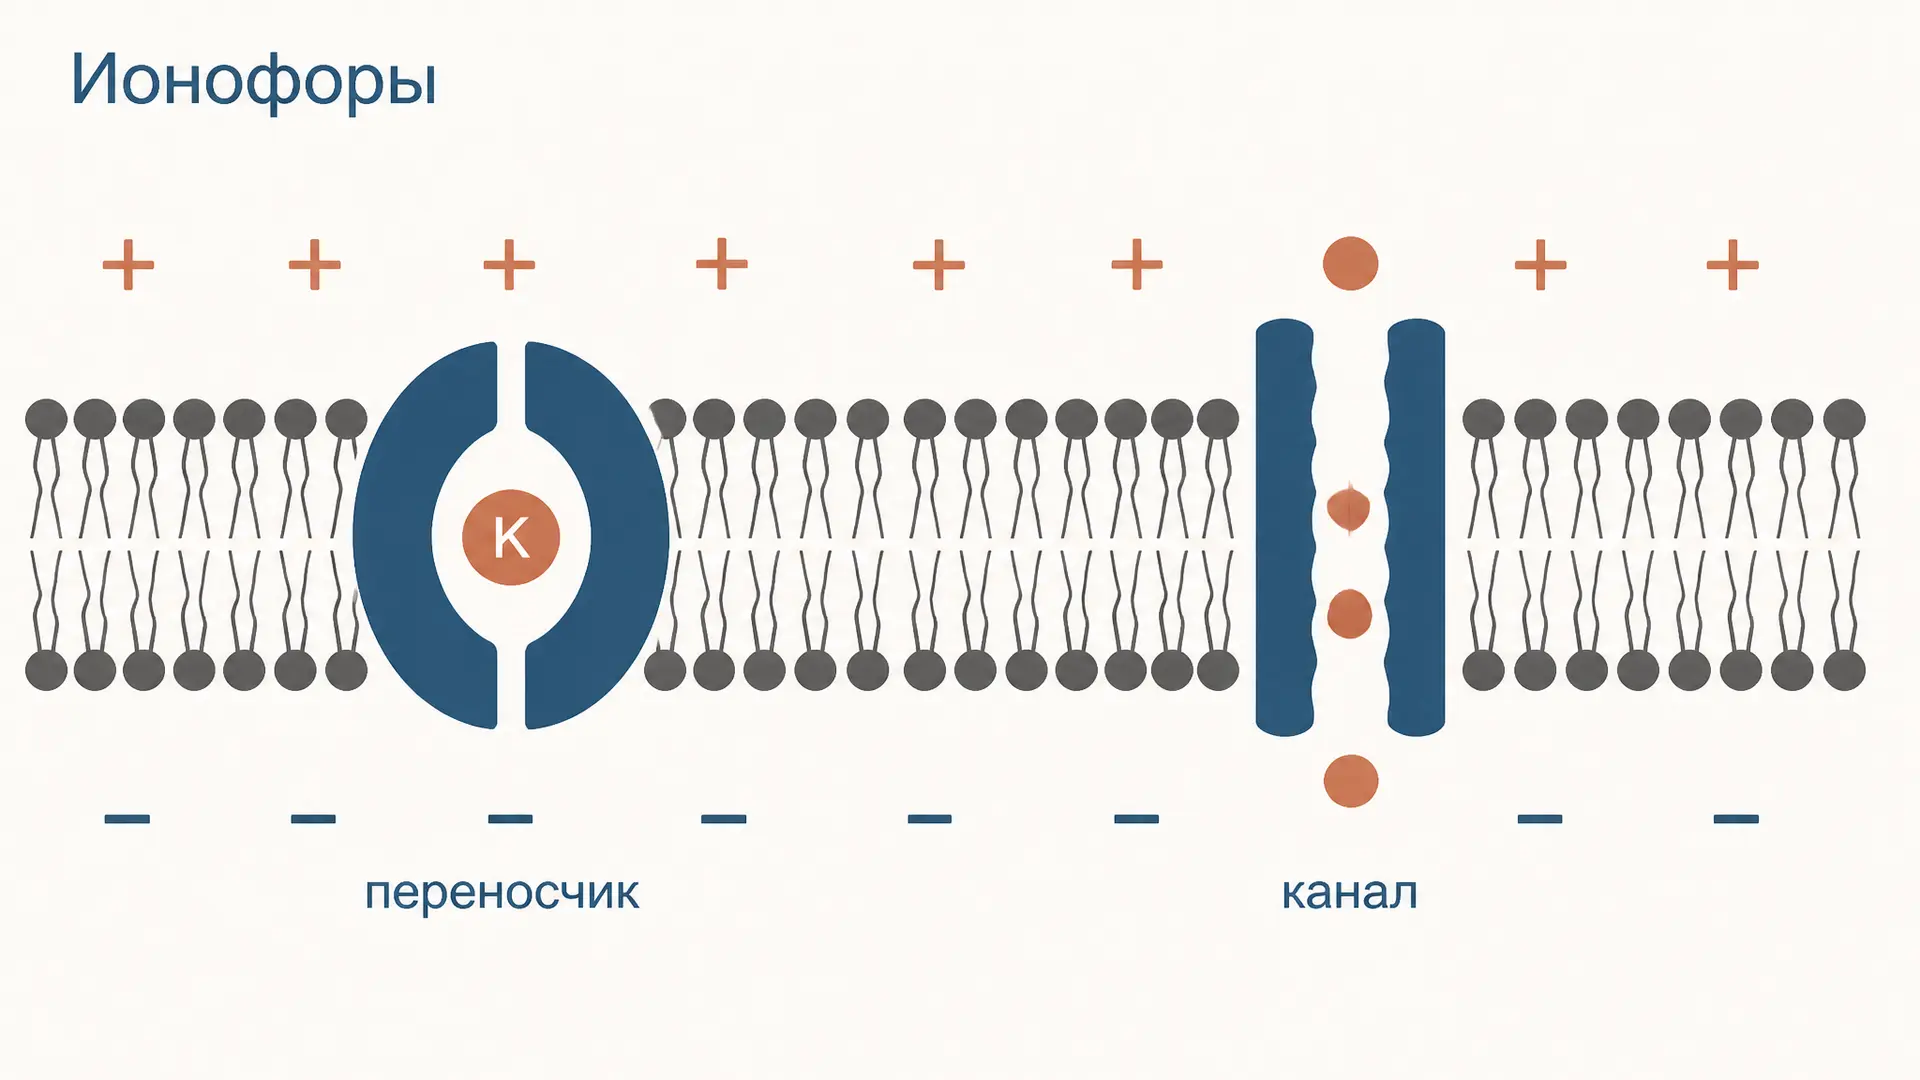
Ионофоры - небольшие обычно липофильные молекулы, которые повышают проницаемость мембраны для выбранных ионов. Липидный бислой сам по себе плохо пропускает заряженные частицы: иону пришлось бы оставить гидратную оболочку и попасть в гидрофобную среду. Ионофор решает эту физическую проблему, экранируя заряд или создавая водоподобный путь. Поэтому он не «качает» ионы против градиента, как АТФаза, а открывает им пассивный маршрут по электрохимическому градиенту. Это делает ионофоры удобными зондами в опытах и одновременно объясняет их токсичность для микробов.
Почему иону трудно пересечь бислой
Основой барьера служит липидный бислой плазматической мембраны: его середина неполярна. Вода стабилизирует ион гидратной оболочкой, а в углеводородном ядре липида такой компенсации заряда нет. Свободный или поэтому почти не диффундирует через мембрану.
Ионофор имеет липофильную внешнюю поверхность, совместимую с хвостами фосфолипидов, и полярные атомы внутри связывающего центра либо поры. Он снижает энергетическую цену переноса и увеличивает проницаемость не всей мембраны, а для определённого класса ионов. Направление потока всё равно задают концентрационная разность и электрическое поле. В этом принципиальное отличие от натрий-калиевой АТФазы, которая расходует АТФ на перенос против градиентов.
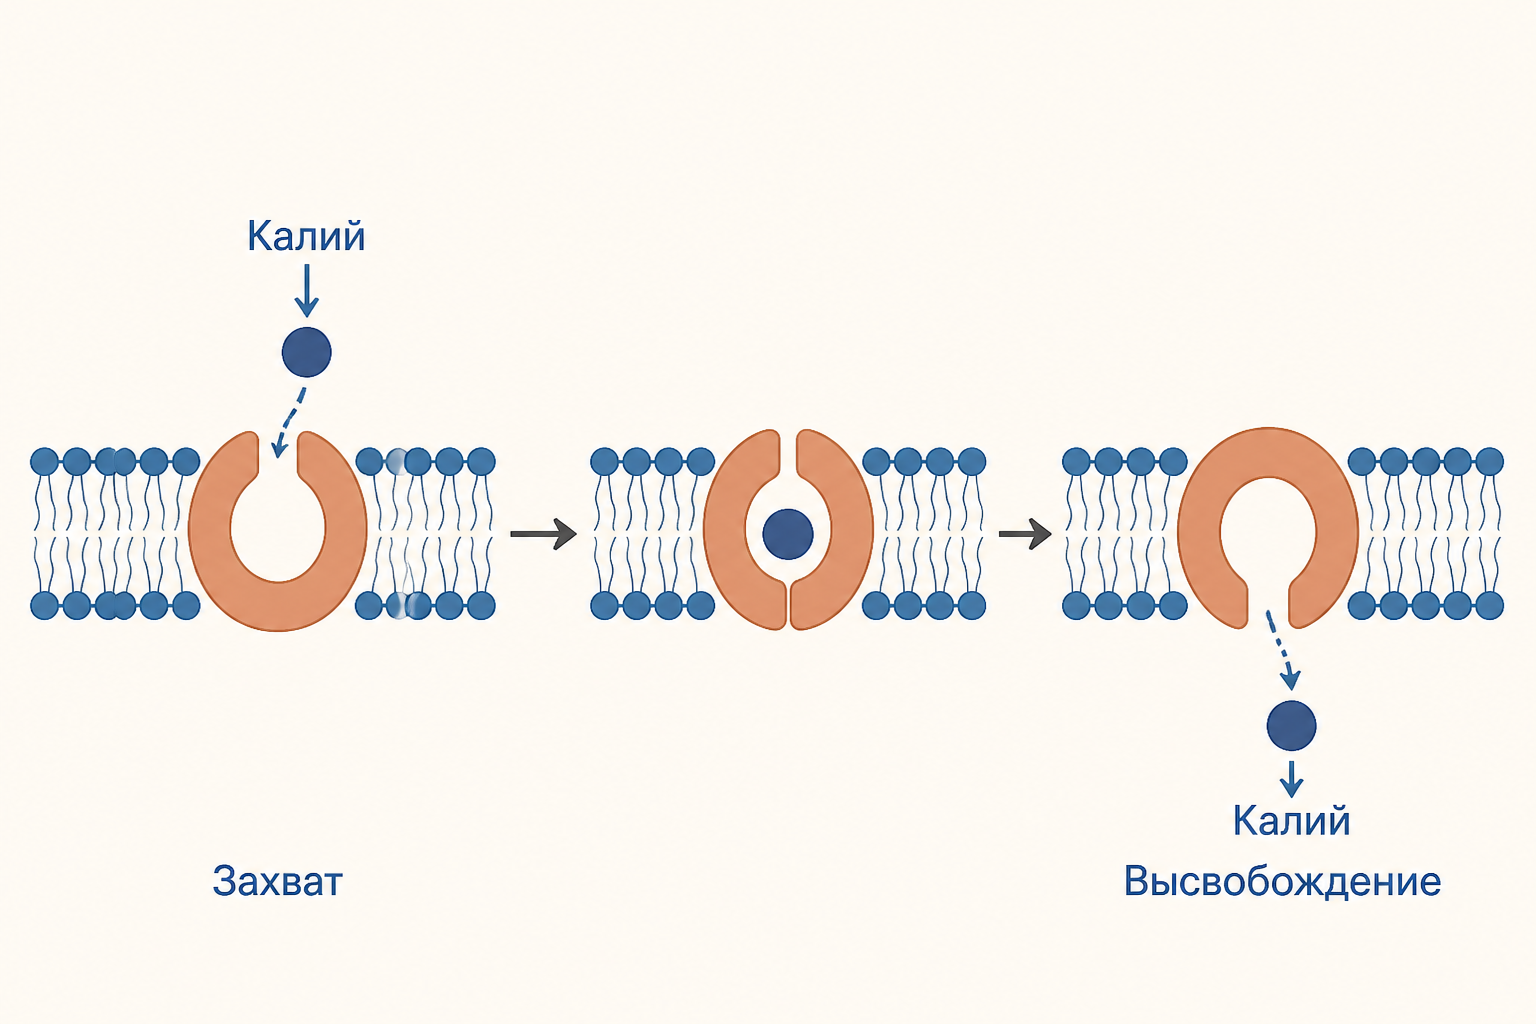
Два механизма: переносчик и канал
Подвижный переносчик обратимо связывает ион с одной стороны мембраны, растворяется в бислое как комплекс, достигает другой стороны и высвобождает груз. Затем возвращается в свободной форме либо в комплексе с другим ионом. За один цикл такой переносчик несёт ограниченное число ионов.
Каналообразователь собирается в мембране в непрерывный гидрофильный путь. Ионы проходят через него последовательно и обычно намного быстрее, чем при челночном переносе. Оба механизма пассивны: когда электрохимический градиент исчезает, чистый поток останавливается. Поэтому слово «ионофор» не означает активный транспорт.
| Пример | Тип | Основной перенос | Электрический итог |
|---|---|---|---|
| Валиномицин | подвижный переносчик | преимущественно | электрогенный перенос одного катиона |
| Нигерицин | подвижный обменник | в обмен на | обычно электронейтральный обмен 1:1 |
| Монензин | подвижный обменник | в обмен на | обычно электронейтральный обмен 1:1 |
| Грамицидин A | каналообразователь | одновалентные катионы, включая , , | быстрый пассивный ток катионов |
Электрогенным называют перенос, который меняет суммарный заряд по сторонам мембраны. Электронейтральный обмен тоже может иметь сильный эффект: нигерицин меняет распределение и , а значит pH и осмотический баланс компартмента, не обязательно создавая прямой ток.
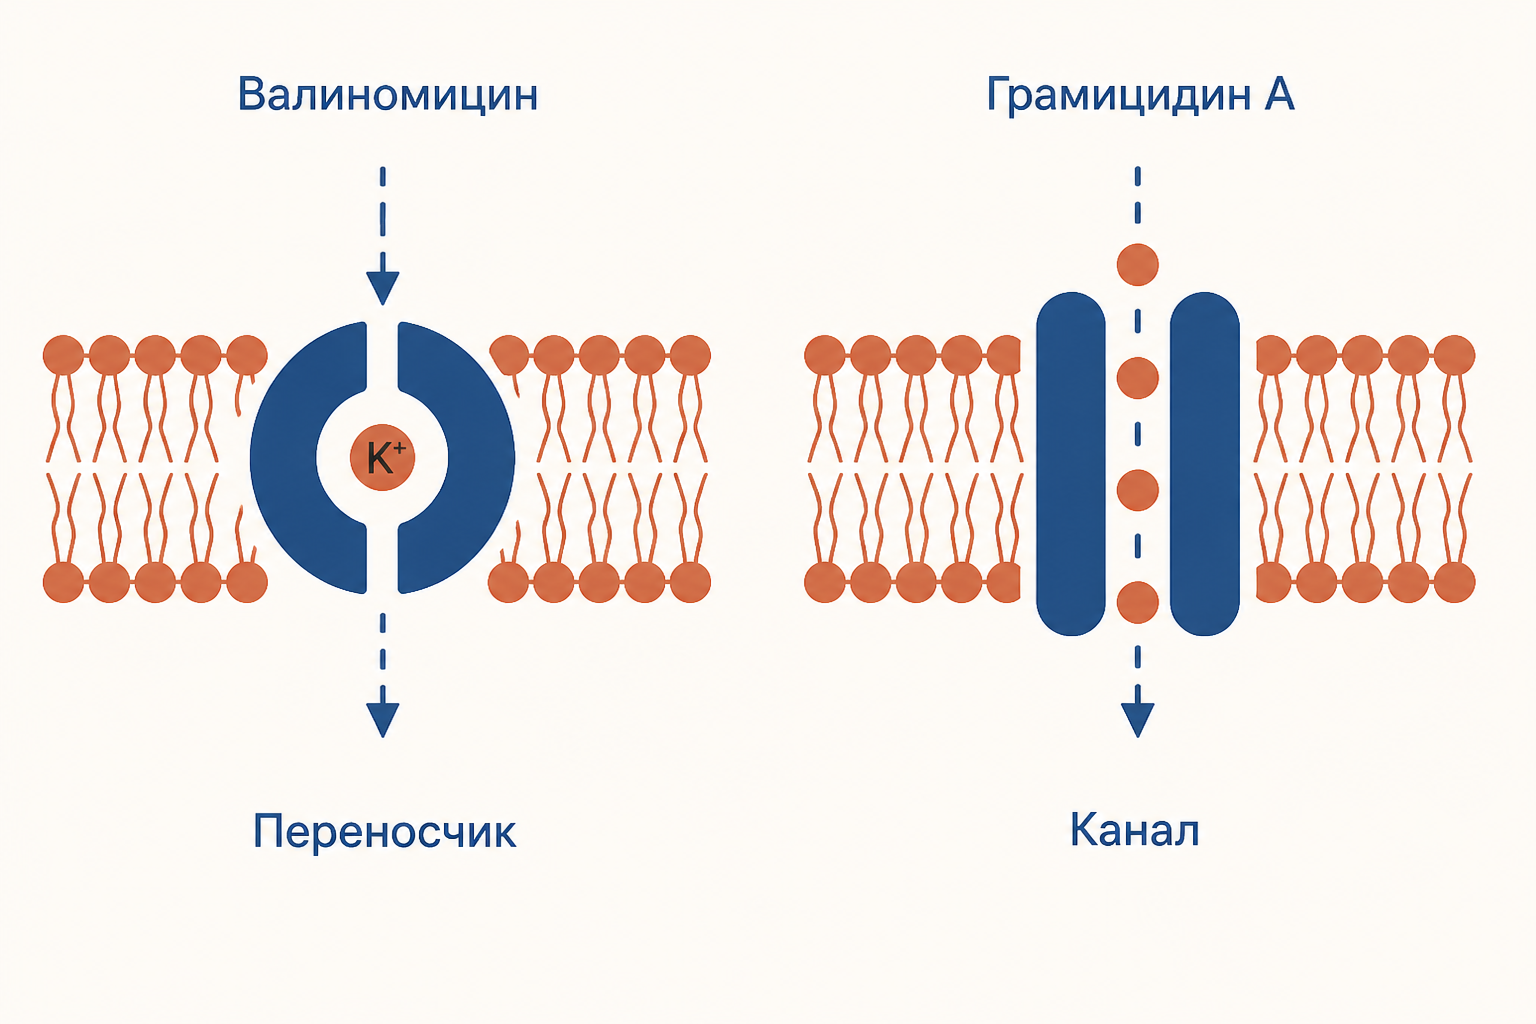
Валиномицин и селективность к калию
Валиномицин образует кольцевой комплекс с катионом. Его кислородные атомы обращены внутрь и координируют ион, а наружная часть комплекса липофильна. Геометрия полости особенно хорошо соответствует : энергетическая выгода от координации компенсирует потерю воды при входе в комплекс. Для меньшего расстояния до донорных атомов менее выгодны, поэтому селективность не сводится к фразе «калий больше натрия».
Решают одновременно радиус голого иона, прочность гидратации и форма полости. Слишком сильная гидратация делает выход иона из воды дорогим; несоответствие размера не даёт достаточно прочных контактов внутри переносчика. Эта логика родственна селективности белковых каналов, но у валиномицина роль белка выполняет небольшая молекула.
Потенциал Нернста после добавления валиномицина
Если валиномицин резко делает мембрану проницаемой главным образом для , напряжение стремится к равновесному потенциалу калия. При для одновалентного катиона:
В учебном примере мМ и мМ. Тогда мВ. Калий первоначально выходит по химическому градиенту, оставляя внутри избыток отрицательного заряда; возникающее поле тормозит выход. Равновесие наступает не при равных концентрациях, а при балансе химической и электрической сил. Калькулятор выше меняет внешнюю концентрацию и повторяет именно эту модель; подробнее математический смысл разобран в статье про потенциал покоя и уравнение Нернста.
Нигерицин, монензин и обмен протонами
Нигерицин связывает и переносит его в обмен на в противоположном направлении. В идеализированной схеме один положительный заряд меняется на один положительный заряд, поэтому такой обмен часто называют электронейтральным. Практически это позволяет преобразовать градиент калия в градиент pH или, наоборот, выровнять pH компартмента при наличии калия. В клеточных экспериментах нигерицин используют именно как инструмент управляемого обмена , а не как универсальный «разрушитель мембраны».
Монензин - полиэфирный ионофор с близкой логикой, обычно описываемый как обменник . Его применяют в ветеринарии как ионофорный противомикробный препарат и кокцидиостатик в разрешённых кормовых продуктах для отдельных видов животных. Это не переносит выводы на человека: режимы использования, видовая чувствительность и ограничения определяет ветеринарная регистрация.
Грамицидин A: канал вместо челнока
Грамицидин A - линейный пептид, две молекулы которого могут соединяться концами в мембране и образовывать узкий канал. Снаружи его гидрофобные остатки контактируют с липидами, внутри оказывается полярный маршрут для одновалентных катионов. Через такую пору ионы идут быстро и по градиенту; двухвалентные катионы не проходят так же свободно.
Именно утечка катионов объясняет антибактериальный эффект: микроб теряет градиенты, нужные для транспорта веществ и энергетики. Не стоит, однако, переносить этот механизм на все антибиотики: многие действуют на клеточную стенку, рибосому или другие мишени. Устойчивость бактерий к препаратам и её механизмы - отдельная тема, разобранная в материале о механизмах устойчивости к антибиотикам.
Ионофоры и разобщение энергетики
Внутренняя мембрана митохондрий хранит энергию в протон-движущей силе. Если ионофор создаёт обходной путь для иона, который рассеивает существенную часть этой силы, дыхательная цепь и синтез АТФ могут разойтись: электроны продолжают переноситься, а полезная энергия не доходит до АТФ-синтазы. Классический пример - протонофор, переносящий ; это подробно объясняет хемиосмотическая теория Митчелла.
Валиномицина достаточно, чтобы менять вклад калия в потенциал, но назвать любой эффект валиномицина прямым разобщением без условий опыта нельзя. Нужно знать, какая мембрана исследуется, какие ионные градиенты в ней созданы и как изменение связано с мембранным потенциалом. Ионофоры ценны именно тем, что позволяют ставить такие контролируемые эксперименты.
Полезно различать разобщение и простое повреждение мембраны. Разобщитель даёт определённому иону путь, по которому тот сбрасывает компонент электрохимической силы; при этом липидный барьер может оставаться структурно целым. Неспецифическое разрушение бислоя, напротив, выпускает множество растворённых веществ и не позволяет сделать вывод о роли одного градиента. В хорошем опыте подбирают концентрацию ионофора, контролируют ионный состав среды и сравнивают результат с образцом без ионофора. Тогда сдвиг потенциала или pH можно связать с выбранной проницаемостью, а не с гибелью клетки как таковой.
Применения и границы интерпретации
В мембранной биофизике ионофоры задают проницаемость для нужного иона, калибруют чувствительные красители и проверяют роль градиента в транспорте. Валиномицин также используют как распознающий компонент калий-селективных мембран: связывание меняет потенциал электрода по нернстовскому принципу. В ветеринарии полиэфирные ионофоры, включая монензин, применяют по зарегистрированным показаниям; безопасность зависит от вида и дозы.
Главная методическая осторожность проста: ионофор меняет проницаемость, а наблюдаемый потенциал и pH являются результатом всех доступных ионов, буферов и насосов. Поэтому контроль с другой солью, известной концентрацией и подходящим временем экспозиции важнее красивой схемы механизма.
Частые ошибки
- Считать ионофор насосом. Он не расходует АТФ и не переносит ион против электрохимического градиента.
- Путать переносчик с каналом. Валиномицин переносит комплекс через бислой, а грамицидин A создаёт трансмембранную пору.
- Сводить селективность к размеру. Важны также гидратация и химия координационных атомов.
- Приравнивать к потенциалу любой живой клетки. Нернстовский потенциал относится к мембране, проницаемой только для калия.
FAQ
Почему валиномицин выбирает калий, а не натрий? Его полость и кислородные доноры энергетически лучше координируют после частичной потери гидратной оболочки. Для геометрия и баланс энергии менее выгодны.
Нигерицин обязательно меняет мембранный потенциал? При строгом обмене одного на один суммарный перенос заряда равен нулю, но pH и косвенно другие процессы меняются заметно.
Зачем ионофоры нужны в электродах? Они придают мембране электрода предпочтительное связывание целевого иона; возникающий потенциал связывают с его активностью через уравнение Нернста.
Коротко
Ионофоры делают липидный бислой проницаемым для выбранных ионов без расхода АТФ. Валиномицин переносит преимущественно , нигерицин и монензин обменивают катионы на протоны, а грамицидин A формирует канал для одновалентных катионов. Их эффект определяется селективностью, концентрационным и электрическим градиентами; поэтому они одновременно служат антибиотическими молекулами и точными инструментами мембранной биофизики.
Источники
- Alberts B. и соавт. Principles of Membrane Transport, NCBI Bookshelf.
- Duax W. L. и соавт. Molecular structure and mechanisms of action of cyclic and linear ion transport antibiotics, Biopolymers, 1996.
- FDA. Monensin for cattle and goats.
Читайте также
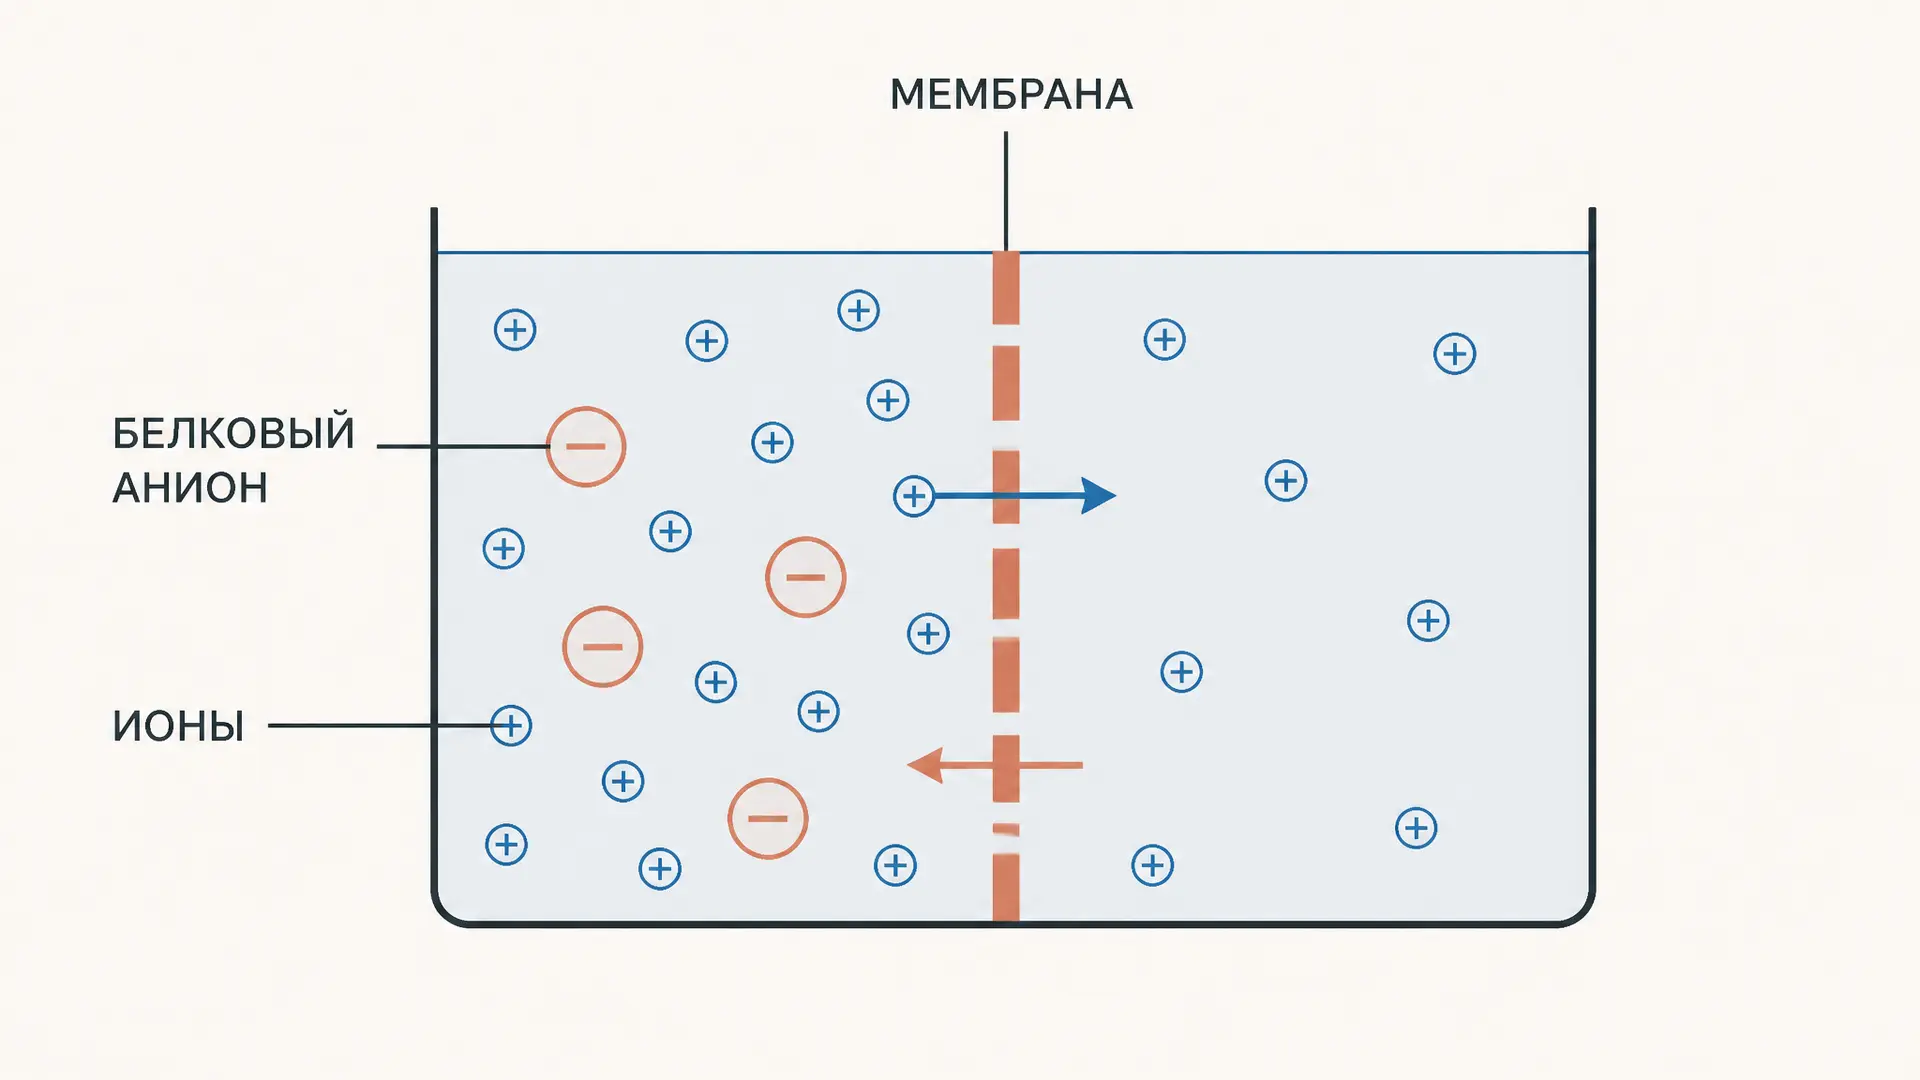
Равновесие Доннана: ионы и мембрана
Равновесие Доннана: как непроникающий белковый анион меняет распределение ионов, откуда берутся потенциал и осмотический приток воды и зачем клетке натрий-калиевый насос.
Потенциал покоя: происхождение и уравнение Нернста
Потенциал покоя клетки - как он возникает, чем определяется и как рассчитать по уравнению Нернста. Физиология мембранного потенциала от ионных каналов до формулы.
ВПСП и ТПСП: постсинаптические потенциалы простыми словами
Что такое ВПСП и ТПСП, чем возбуждающий постсинаптический потенциал отличается от тормозного, какие ионы и каналы их создают и как нейрон суммирует входы.
Потенциал действия: фаза деполяризации простыми словами
Фаза деполяризации потенциала действия: что происходит с мембраной, почему открываются натриевые каналы, как считать равновесный потенциал по Нернсту и размах подъёма, где ошибаются студенты.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.