Сортировка белков в Гольджи: как клетка их адресует
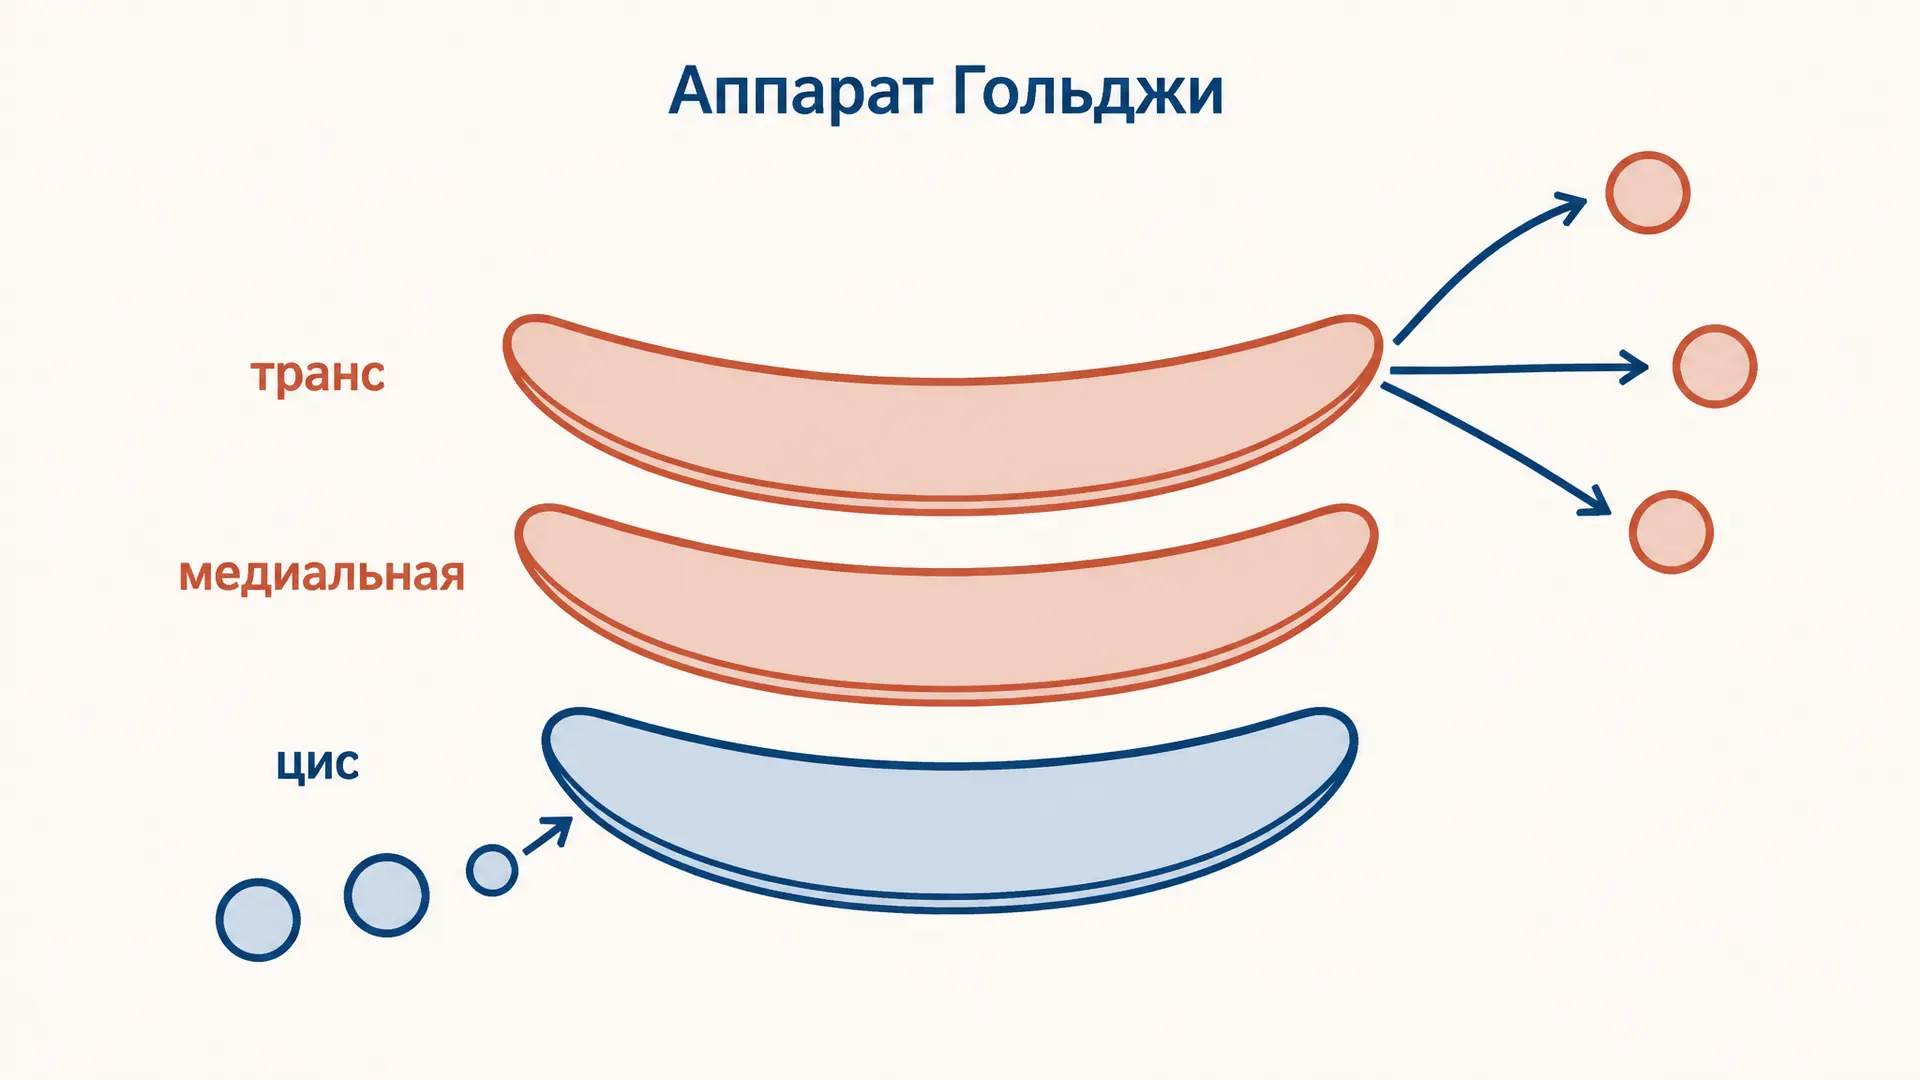
Через аппарат Гольджи проходит почти всё, что клетка синтезирует на шероховатом ЭПР: ферменты лизосом, гормоны, коллаген, рецепторы плазматической мембраны и слизь. Все эти белки входят в стопку цистерн одним общим потоком, а выходят по разным адресам, причём почти без ошибок. Сортировка белков в Гольджи и есть тот механизм, который превращает единый поток в набор адресованных посылок: сначала белок получает химическую метку, затем в транс-сети её читает рецептор и упаковывает груз в нужный тип везикулы. Ниже разобрано, чем различаются отделы стопки, какие сигналы служат адресами и как посчитать, сколько потока уйдёт по каждому маршруту.
Аппарат Гольджи как сортировочная станция
Стопка Гольджи полярна: у неё есть вход и выход. Со стороны ЭПР лежит цис-сторона, куда приходят транспортные везикулы, покрытые белком COPII; на противоположном конце находится транс-сторона, переходящая в разветвлённую транс-сеть Гольджи. Между ними - медиальные цистерны. Полярность поддерживается двумя встречными потоками: груз движется вперёд вместе с созревающими цистернами, а ферменты и ЭПР-резиденты едут назад в COPI-везикулах. Именно поэтому стопка не перемешивается: каждая цистерна удерживает свой набор ферментов, хотя её содержимое постоянно обновляется.
Вдоль стопки натянут градиент кислотности: в цис-цистернах pH около 6,7, в транс-сети - примерно 6,0. Этот градиент не декорация, а рабочий инструмент сортировки: связывание рецепторов с грузом зависит от pH, и белок, схваченный в транс-сети, отпускается уже в закисленной эндосоме. Второй общий инструмент - концентрация ионов кальция, которая в транс-сети нужна для агрегации секреторных белков.
Цис, медиальная и транс: три отдела с разными ферментами
Отделы стопки различаются не формой, а ферментным набором, и порядок этих наборов задаёт последовательность модификаций.
- Цис-цистерна. Здесь маннозидаза I отрезает лишние остатки маннозы от олигосахарида, пришедшего из ЭПР, а GlcNAc-фосфотрансфераза навешивает фосфат на маннозу будущих лизосомных ферментов.
- Медиальная цистерна. Работают маннозидаза II и GlcNAc-трансфераза I, добавляется фукоза. Гликан теряет однообразную маннозную структуру и становится ветвистым.
- Транс-цистерна и транс-сеть. Галактозилтрансфераза и сиалилтрансфераза достраивают концевые остатки; отрицательно заряженная сиаловая кислота становится последним звеном цепочки. Здесь же снимается защитный остаток GlcNAc, и метка манноза-6-фосфат наконец открывается для рецептора.
Порядок жёсткий: фермент следующего отдела не может работать раньше, чем отработал предыдущий. Отсюда практическое следствие для лабораторной работы: по составу сахаров на белке можно сказать, до какой цистерны он успел дойти.
Гликозилирование как метка маршрута
Гликозилирование начинается ещё в ЭПР, но именно в Гольджи оно превращается из общей модификации в индивидуальную. Одна и та же исходная цепочка после прохождения стопки даёт разные структуры - и различия эти небезразличны для маршрута.
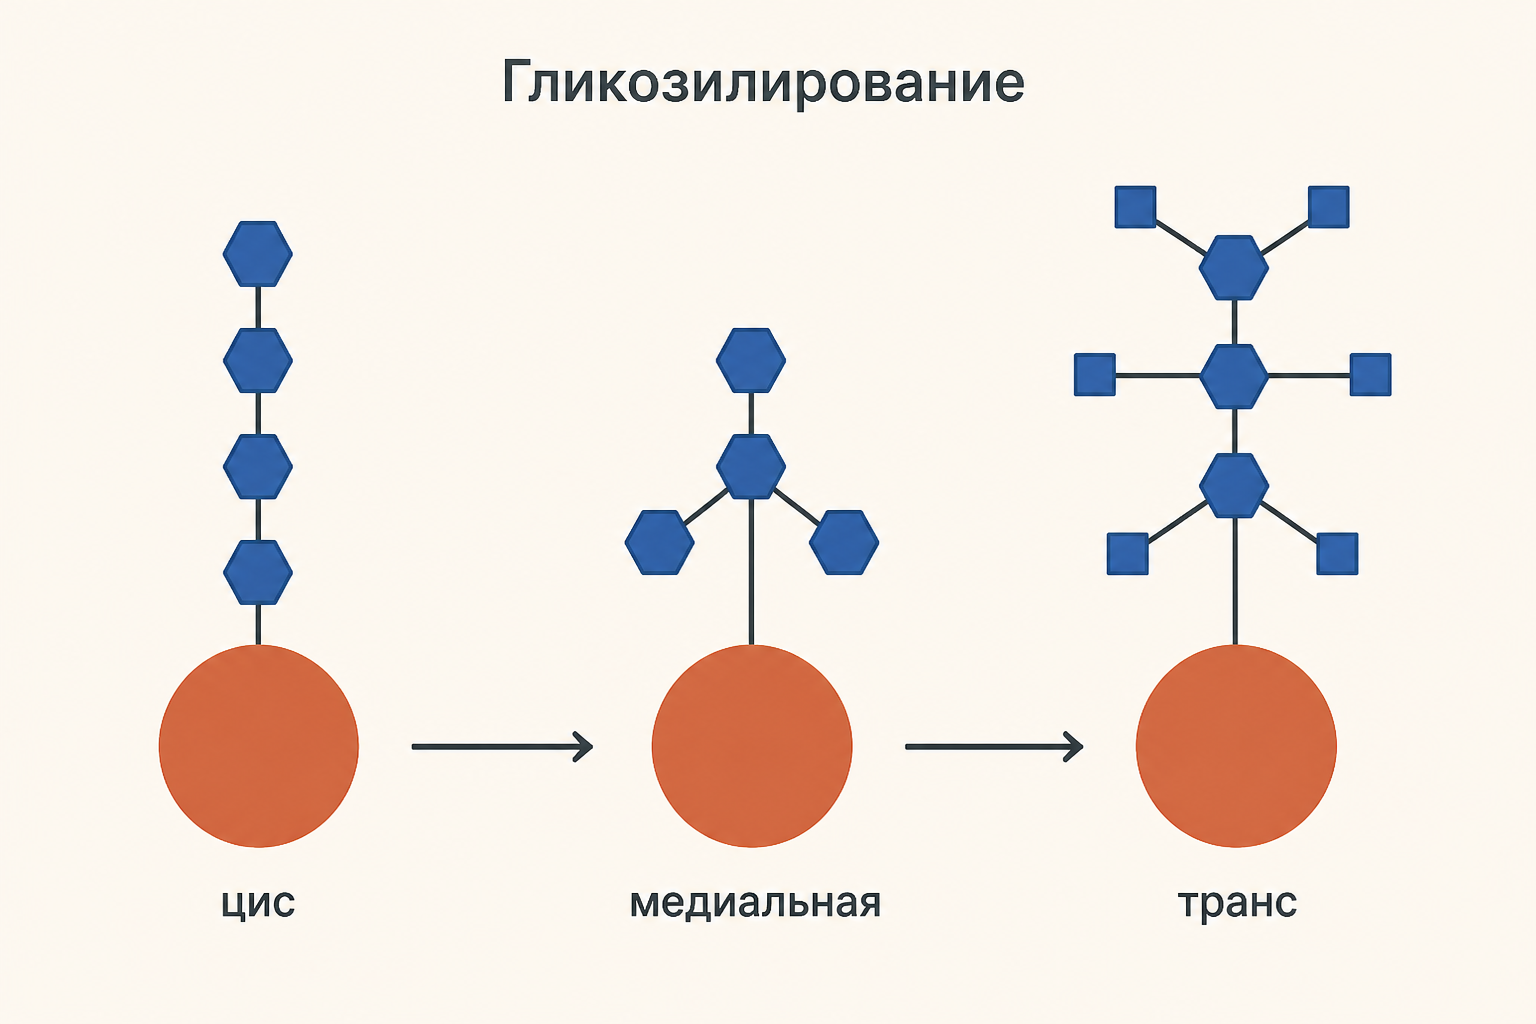
Для лизосомных гидролаз химическая метка на сахаре и есть адрес. Для остальных белков гликан работает мягче: он повышает растворимость, защищает от протеаз, участвует в узнавании клетками друг друга. Подробнее о том, как ковалентные довески вообще меняют судьбу белка, разобрано в статье про посттрансляционную модификацию; там же видно, что гликозилирование - самая объёмная из модификаций по массе. А сама химия связи между сахаром и белком описана в разборе гликозидной связи.
Сигналы сортировки: манноза-6-фосфат и KDEL
Клетка использует два принципиально разных типа адресов: положительный сигнал «отправить туда» и отрицательный сигнал «вернуть обратно».
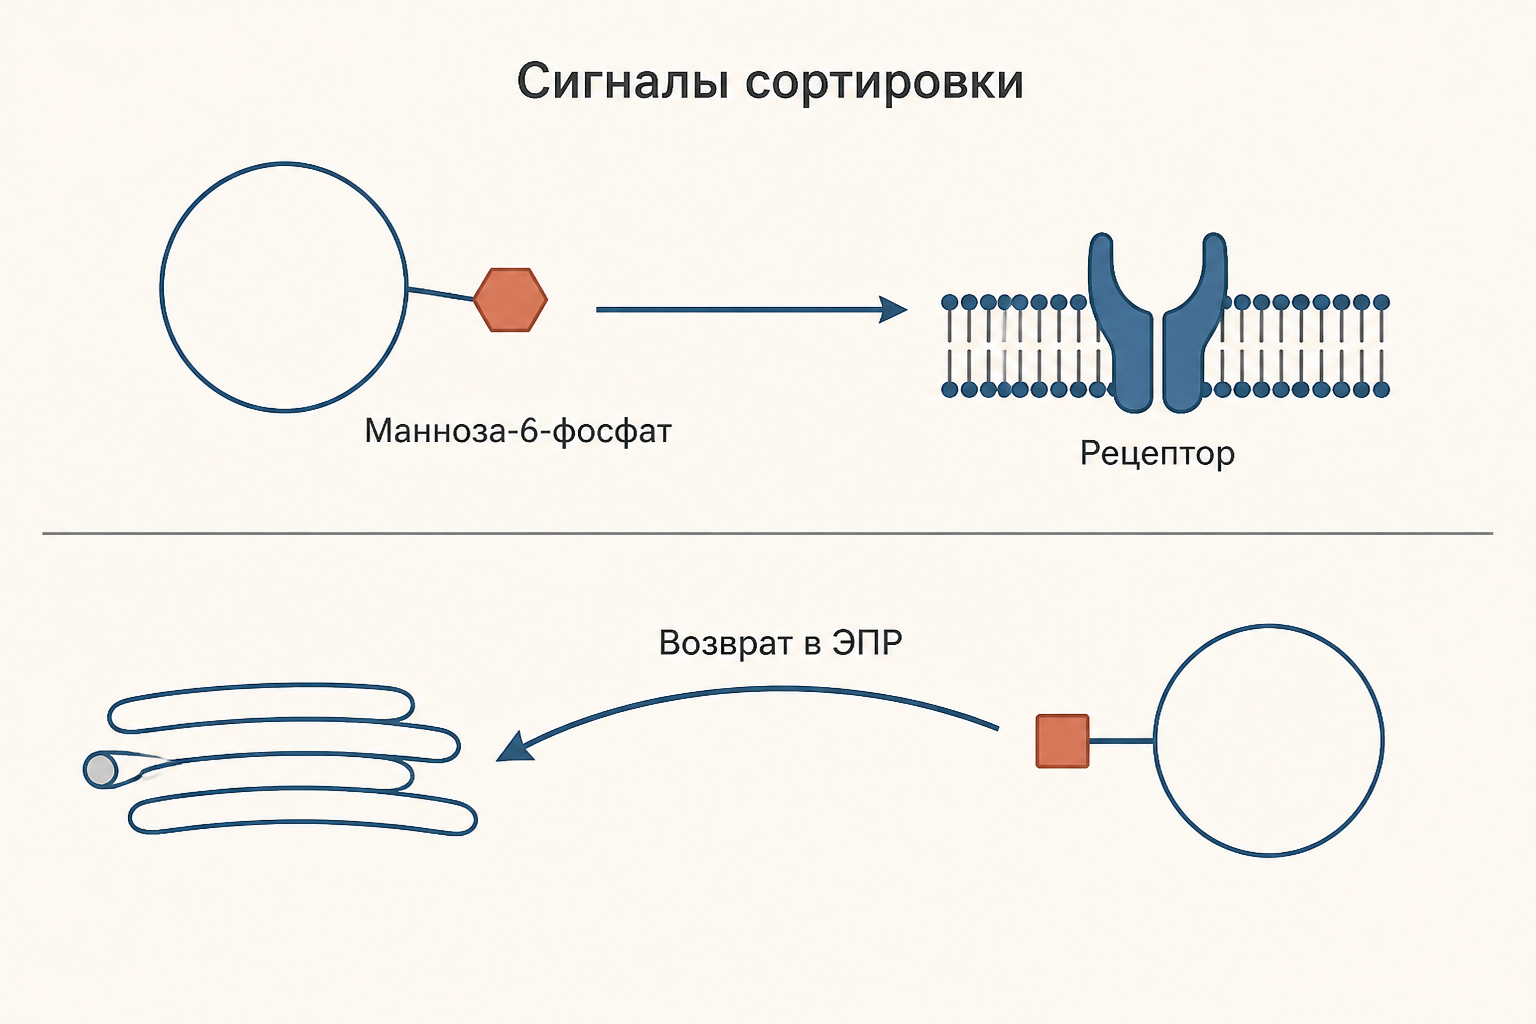
Манноза-6-фосфат (М6Ф) - адрес лизосомы. Фермент, предназначенный для лизосомы, узнаётся фосфотрансферазой не по короткому мотиву, а по трёхмерному участку поверхности: несколько удалённых по цепи остатков сходятся вместе только у правильно свёрнутого белка. Поэтому сборка гидролаз и качество их фолдинга напрямую влияют на адресацию. В транс-сети метку М6Ф читает рецептор MPR, а в закисленной поздней эндосоме отпускает груз и возвращается назад.
KDEL - сигнал возврата. Растворимые белки ЭПР (шапероны BiP, кальретикулин, протеиндисульфидизомераза) заканчиваются последовательностью Lys-Asp-Glu-Leu. Хитрость в том, что удержание работает не в самом ЭПР, а уже в Гольджи: KDEL-рецептор связывает сигнал при кислом pH цистерн и отпускает при нейтральном pH ЭПР, куда груз доставляется COPI-везикулами. У мембранных белков ЭПР ту же роль играет дилизиновый мотив KKXX на цитозольном конце.
Утечка при этом не нулевая, но безобидна: если за один проход возвращается доля , то вероятность того, что белок ускользнёт наружу после проходов, равна , а среднее число циклов ЭПР - Гольджи - ЭПР составляет
При белок в среднем выдерживает 20 циклов возврата, и лишь малая часть пула теряется со временем.
Транс-сеть Гольджи: узел ветвления
Транс-сеть - не просто последняя цистерна, а отдельная тубулярная станция, где поток расходится. Здесь на мембрану садятся адаптерные комплексы: AP-1 и GGA собирают клатриновую оболочку вокруг участков с рецепторами MPR, отправляя груз в эндосомы; другие участки отпочковываются без клатрина.
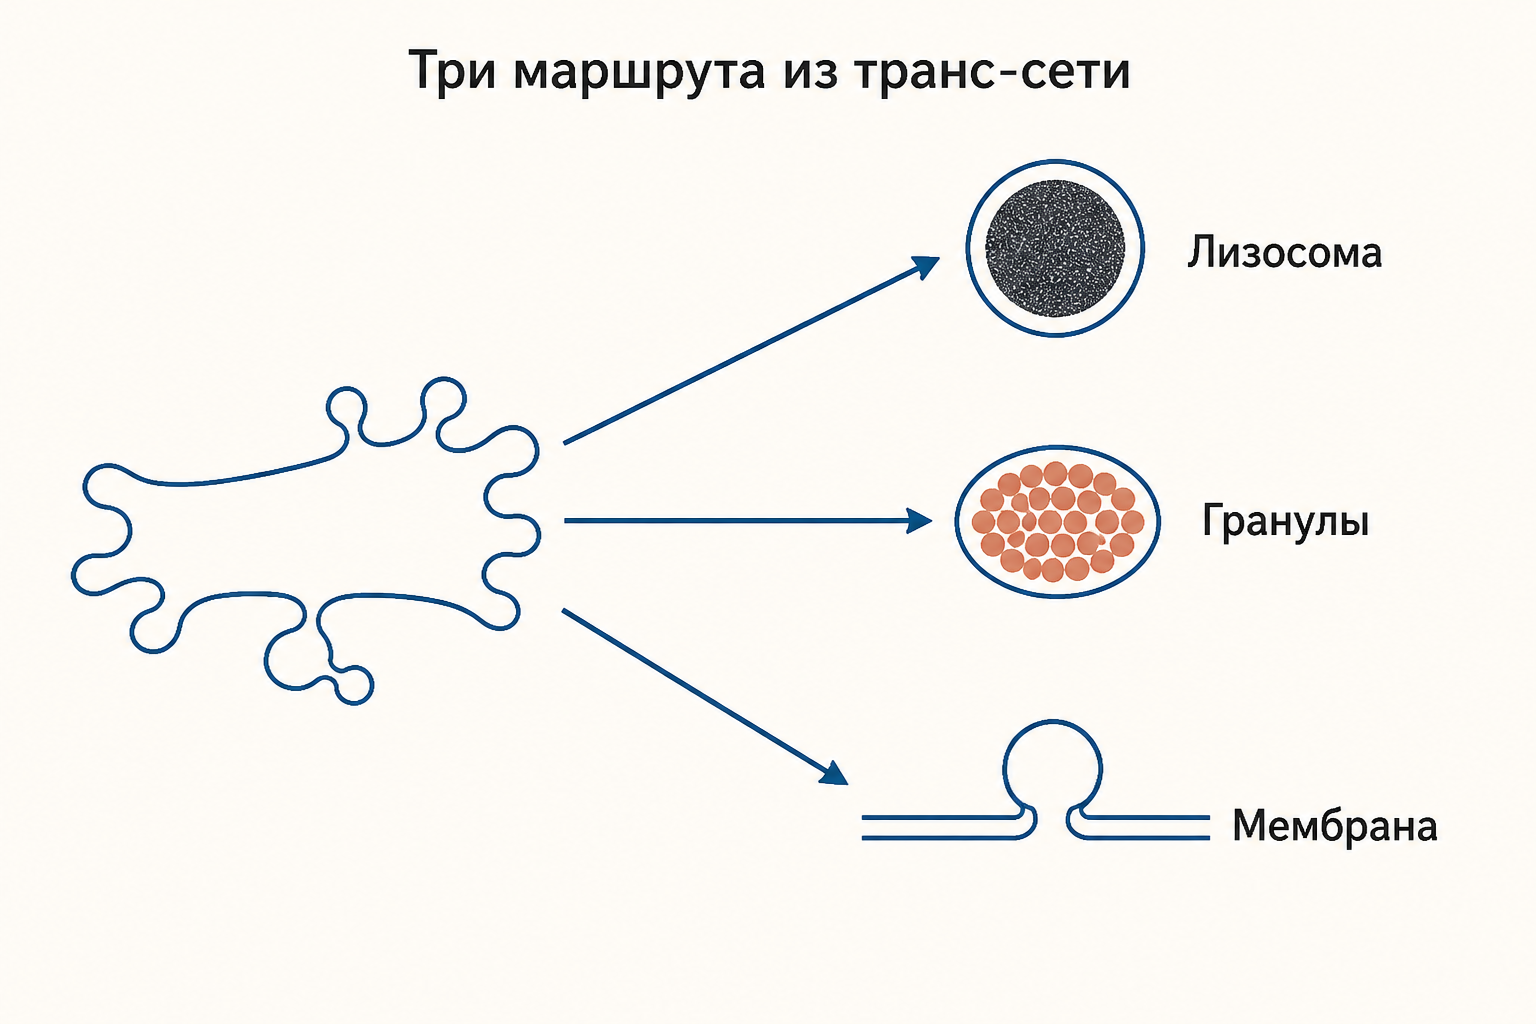
Дальше везикулы не плывут наугад: их тащат моторы по микротрубочкам, а конкретный адрес подтверждается парой белков SNARE при стыковке. Механика этой доставки разобрана в статьях про моторные белки динеин и кинезин и про эндоцитоз и экзоцитоз - там же описано, как мембрана везикулы сливается с мишенью и возвращается обратно.
Три маршрута и путь по умолчанию
Из транс-сети ведут три дороги, и различаются они наличием сигнала.
- Конститутивная секреция - путь по умолчанию. Никакого сигнала не требуется: белок, у которого нет ни М6Ф, ни склонности к агрегации, попадает в везикулу автоматически и уходит к плазматической мембране непрерывным потоком. Так секретируются альбумин, коллаген, компоненты внеклеточного матрикса.
- Регулируемая секреция - есть у эндокринных, экзокринных и нервных клеток. Проинсулин, зимогены поджелудочной железы и гормоны агрегируют в транс-сети при pH около 6,0 и высоком кальции, отделяются от растворимого груза и запасаются в плотных гранулах до сигнала кальция.
- Лизосомный путь - по метке М6Ф через рецептор MPR и эндосому.
Отдельно стоит помнить и о четвёртой дороге, которую легко забыть на экзамене: ретроградный возврат в ЭПР по сигналу KDEL. Он не выводит белок из системы, а закольцовывает поток.
Как посчитать баланс потоков
Модель в калькуляторе выше сводит всё сказанное к арифметике долей. Пусть в цис-цистерну входит поток условных единиц, доля приходится на ЭПР-резиденты, ускользнувшие вперёд, а на транс-сеть попадает груз . Тогда в лизосомы уйдёт
где - доля груза с меткой, а - эффективность захвата рецептором. При настройках по умолчанию (, , ) получаем единицы в лизосомы, 27,6 единицы в секреторные гранулы, 7,6 единицы обратно в ЭПР и 52,4 единицы в конститутивную секрецию.
Модель хорошо показывает патологию. Опустите захват рецептором MPR до 10 %: в лизосомы попадёт 1,4 % потока, а конститутивная секреция вырастет до 63,4 %. Это и есть картина I-клеточной болезни (муколипидоза II), где дефект фосфотрансферазы лишает гидролазы метки: ферменты в высоких концентрациях обнаруживаются в крови, а в клетках накапливаются включения непереваренного материала.
Проверка на понимание: уберите сигнал возврата (эффективность KDEL 0 %) и посмотрите, что ЭПР-резиденты целиком уходят в секрецию. Именно так действует брефельдин A, разрушая границу между ЭПР и Гольджи.
Частые ошибки
- Считать конститутивную секрецию сигнальным путём. Наоборот: она работает по умолчанию, сигнал нужен как раз тем белкам, которые из этого потока изымают.
- Путать удержание в ЭПР с возвратом из Гольджи. Сигнал KDEL не мешает белку покинуть ЭПР, он обеспечивает возврат уже уехавшего.
- Говорить, что метка М6Ф ставится в транс-сети. Фосфат навешивается в цис-отделе, а в транс-сети лишь снимается прикрывающий остаток GlcNAc и метку читает рецептор.
- Считать рецептор MPR расходуемым. Он циркулирует между транс-сетью и эндосомой десятки раз; груз отпускается из-за падения pH, а не из-за разрушения рецептора.
- Смешивать аппарат Гольджи с однофамильцами. Сухожильный орган Гольджи и клетки Гольджи мозжечка названы в честь того же гистолога, но к сортировке белков отношения не имеют.
FAQ
Что произойдёт, если аппарат Гольджи выключить? При обработке клеток брефельдином A стопка распадается, а её ферменты сливаются с ЭПР. Секреция останавливается, лизосомные гидролазы не получают метку, гликаны остаются в незрелой маннозной форме. Клетка какое-то время живёт, но обновлять мембрану и секретировать перестаёт.
Как экспериментально узнать, где остановился белок? По устойчивости гликана к эндогликозидазе H: пока белок не прошёл медиальную цистерну, его гликан расщепляется этим ферментом, а после обработки GlcNAc-трансферазой I становится устойчивым. Дополнительно применяют температурный блок 20 °C, при котором груз накапливается в транс-сети.
Все ли лизосомные белки адресуются через манноза-6-фосфат? Нет. Мембранные белки лизосом несут сигналы в цитозольном хвосте, которые узнают адаптеры AP-3 и AP-1, а некоторые гидролазы попадают в лизосому альтернативными путями. Именно поэтому при I-клеточной болезни страдают не все клетки одинаково: в гепатоцитах работает запасной механизм.
Коротко
Сортировка белков в Гольджи устроена как последовательное чтение адреса: цис-, медиальная и транс-цистерны по очереди достраивают гликан и ставят метки, а транс-сеть Гольджи разводит поток по трём маршрутам - конститутивной секреции как пути по умолчанию, регулируемой секреции через агрегацию в гранулы и лизосомному пути по метке манноза-6-фосфат. Четвёртая дорога, возврат в ЭПР по сигналу KDEL, замыкает систему и удерживает резидентные шапероны на месте. Все сигналы работают через pH-зависимое связывание с рецепторами, поэтому поломка одного фермента, как при I-клеточной болезни, перенаправляет целый поток белков не по адресу.
Читайте также
Первичные и вторичные лизосомы: путь пищеварения
Первичные и вторичные лизосомы: как кислые гидролазы приходят из Гольджи, образуют фаголизосомы и аутофаголизосомы, а остатки превращаются в липофусцин.
Эндоцитоз и экзоцитоз: механизмы и отличия
Эндоцитоз и экзоцитоз: чем отличаются, как идут фагоцитоз, пиноцитоз и рецепторный захват, зачем клетке клатрин, динамин и белки SNARE, как считать баланс мембраны.
Моторные белки динеин и кинезин: транспорт по микротрубочкам
Моторные белки динеин и кинезин: полярность микротрубочек, ATP-цикл и шаги 8 нм, движение к плюс- и минус-концу, везикулярный транспорт в аксоне, роли в митозе и патологии.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.