Синтез пуриновых нуклеотидов: путь de novo
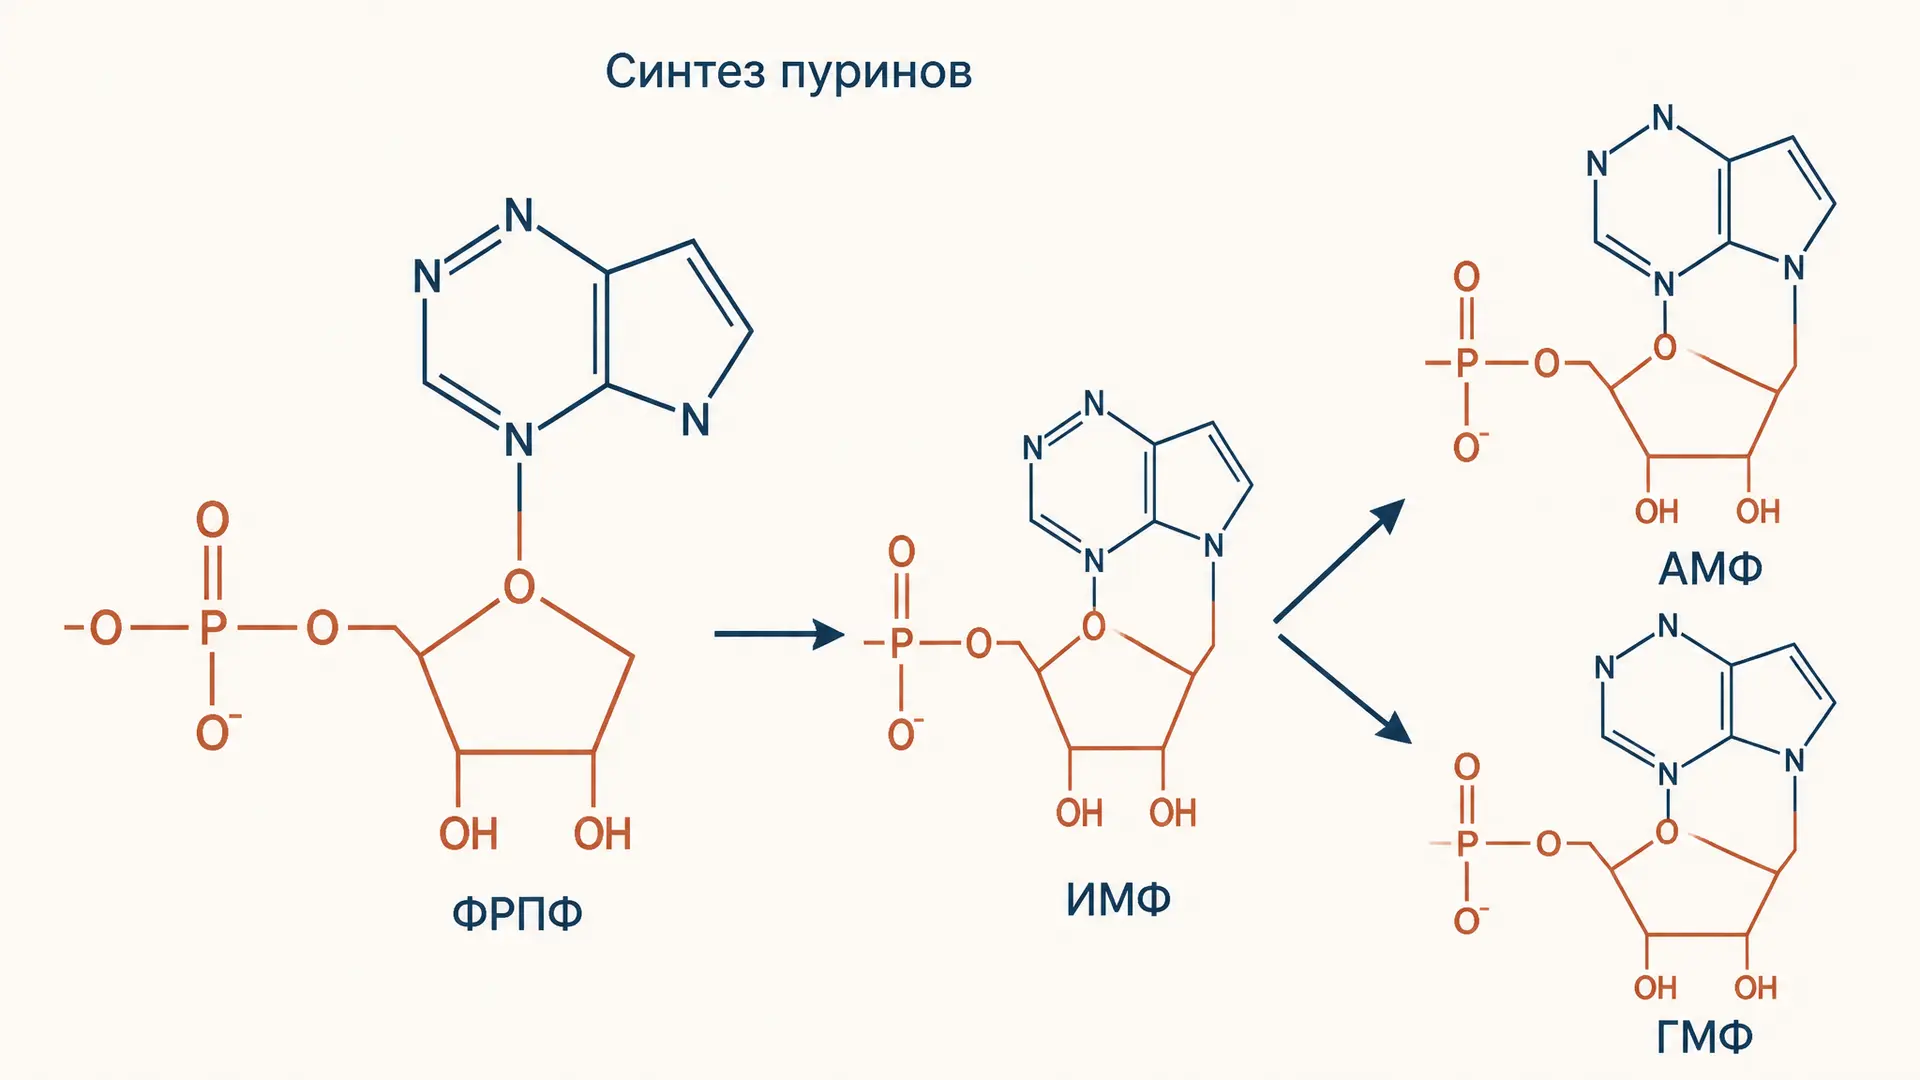
Пуриновый нуклеотид клетка может получить двумя способами: собрать заново или вернуть в оборот готовое основание. В пути de novo кольцо не делают отдельно и затем не «приклеивают» к сахару. Напротив, его по одному фрагменту строят прямо на активированной рибозе, а первым полноценным продуктом становится инозинмонофосфат (ИМФ). Уже из ИМФ расходятся ветви к адениловым и гуаниловым нуклеотидам. Такая логика объясняет и регуляцию, и последствия дефектов реутилизации, и действие нескольких антиметаболитов. Сначала освежите, чем нуклеотид отличается от нуклеозида: здесь мы будем отслеживать не компоненты готовой молекулы, а их происхождение.
Старт: рибоза превращается в ФРПФ
Исходная площадка - рибозо-5-фосфат, продукт пентозофосфатного пути. Фермент ФРПФ-синтетаза переносит на него пирофосфат от АТФ и образует 5-фосфорибозил-1-пирофосфат, или ФРПФ (PRPP). Это не только субстрат пуринового пути: он нужен и в других обменных реакциях, поэтому его наличие ещё не означает, что клетка решила синтезировать пурины.
Первую обязательную реакцию катализирует глутамин-ФРПФ-амидотрансфераза. Она замещает пирофосфат амидным азотом глутамина; возникает очень нестабильный 5-фосфорибозиламин. Именно этот шаг обычно называют первым коммитированным: после него углеродный скелет направлен к пуриновому кольцу. Важно не спутать его с образованием ФРПФ: ФРПФ готовит активированную рибозу, а амидотрансфераза запускает собственно пуриновую ветвь.
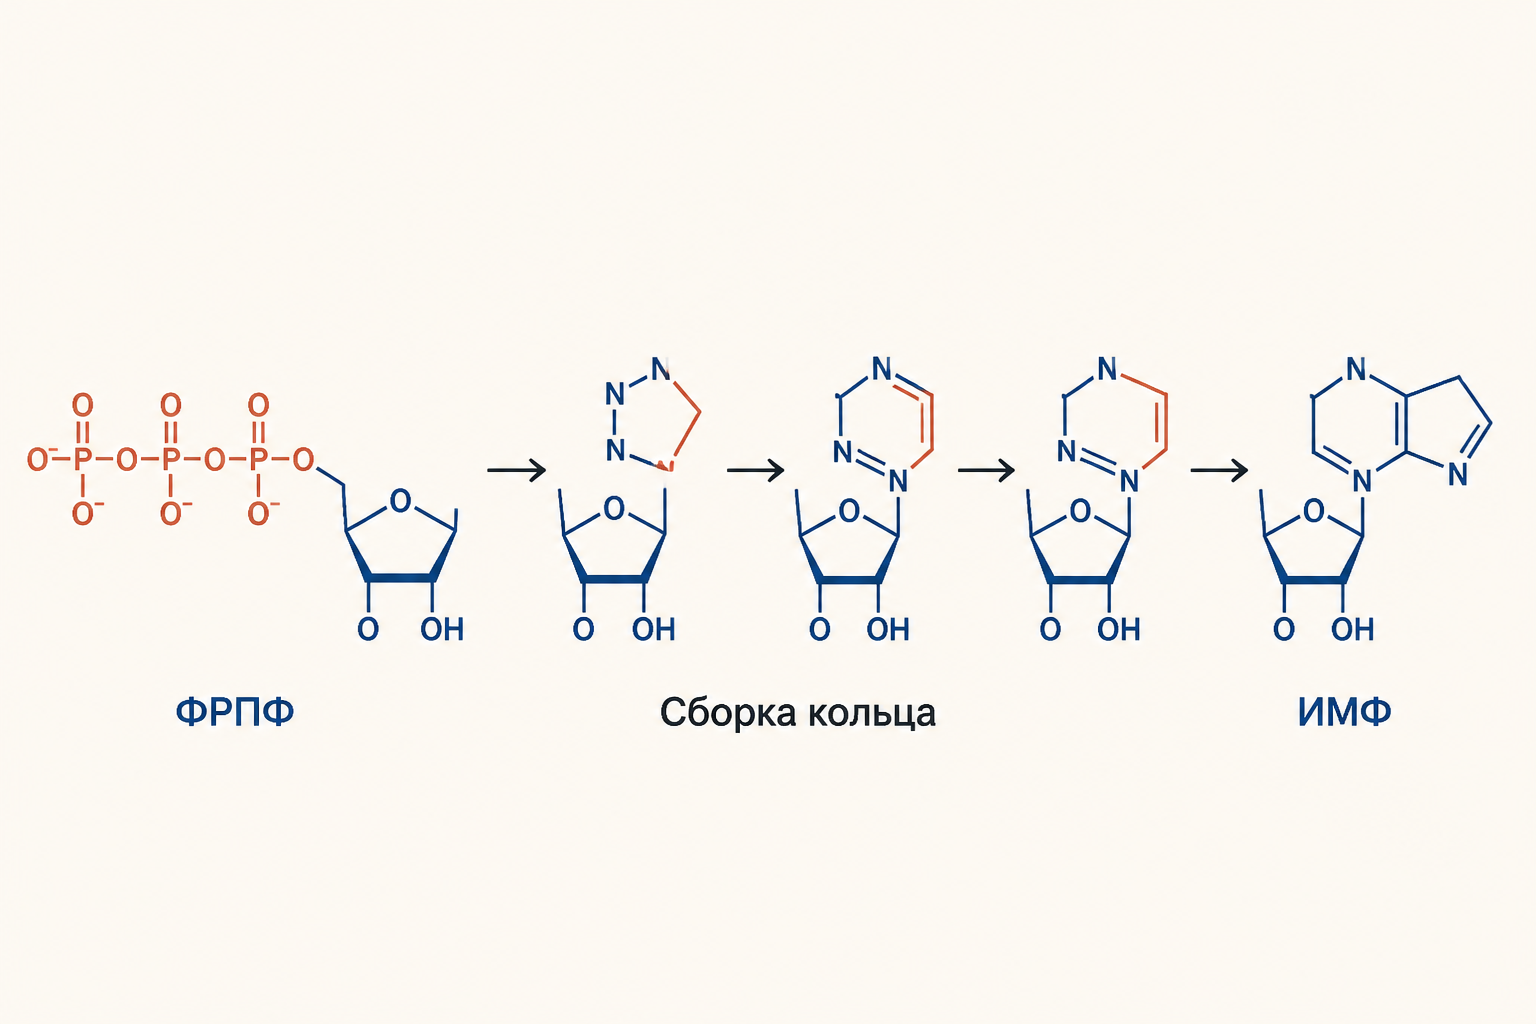
Кольцо растёт прямо на рибозофосфате
От фосфорибозиламина до ИМФ проходит серия реакций. Для ответа на экзамене необязательно механически перечислять все промежуточные сокращения GAR, FGAR, FGAM, AIR, CAIR, SAICAR, AICAR и FAICAR. Гораздо полезнее видеть порядок: сначала присоединяются глицин и формильная группа, затем второй азот глутамина и замыкается пятичленное кольцо; после этого вносятся углекислый газ и аспартат, от которого затем отщепляется фумарат; в конце приходит ещё одна формильная группа и замыкается шестичленное кольцо. Так появляется гипоксантиновое основание ИМФ.
На один ИМФ нужны глицин, аспартат, две молекулы глутамина, углекислый газ и две одноуглеродные формильные группы, переносимые N10-формил-тетрагидрофолатом. Процесс энергозатратен: в учебной стехиометрии указывают пять эквивалентов АТФ для пути до ИМФ. Поэтому скорость синтеза зависит не от одного фермента, а от доступа к энергии, аминокислотам, рибозофосфату и фолатному одноуглеродному обмену.
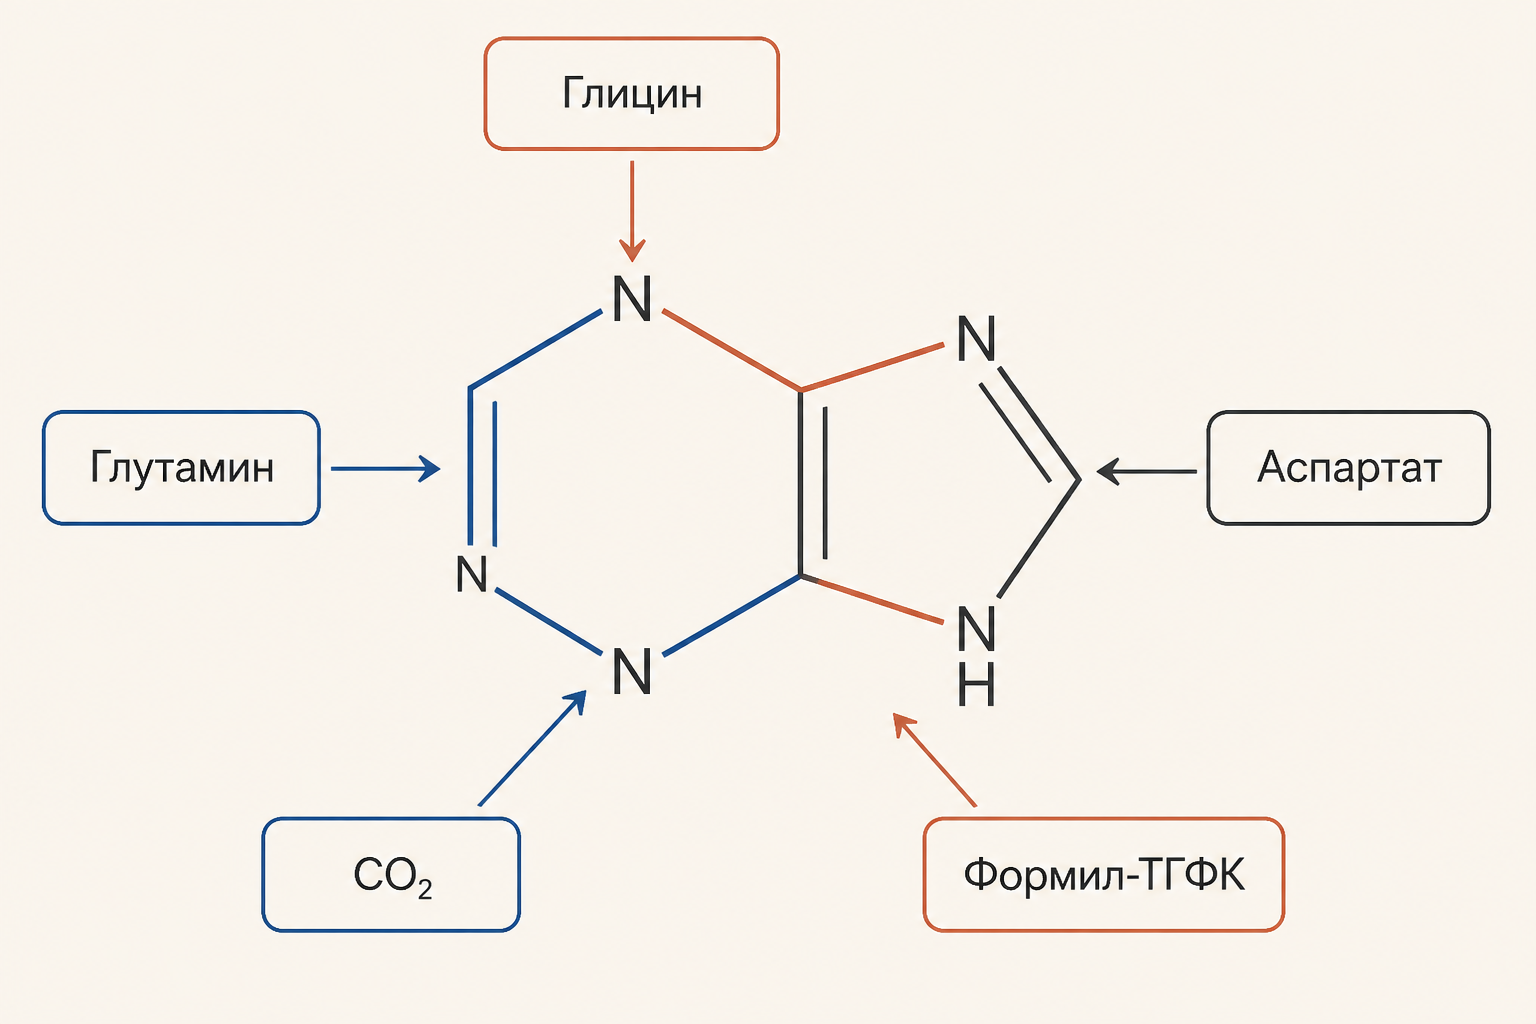
Кто дал атом: карта пуринового кольца
Проверочная схема особенно ценна потому, что она отделяет доноров атомов от источника рибозы. Пять атомов кольца поступают из глутамина, глицина и аспартата, а три углерода - из CO2 и формил-ТГФК. Сам ФРПФ остаётся сахарофосфатным каркасом нуклеотида, не источником атомов пуринового кольца. ТГФК работает здесь как переносчик одноуглеродного фрагмента, то есть как частный случай кофермента, а не как источник готового кольца.
| Позиции пурина | Донор |
|---|---|
| N9, N3 | амидный азот глутамина |
| C4, C5, N7 | глицин |
| C6 | CO2 (бикарбонат) |
| N1 | аспартат |
| C2, C8 | N10-формил-ТГФК |
Именно поэтому фолат здесь переносит не «фолиевую кислоту целиком», а два одноуглеродных фрагмента. Подробнее общую архитектуру основания, включая два кольца пуринов, полезно сопоставить с материалом о строении нуклеотида. Запоминайте не рисунок без смысла, а пары: глицин даёт сразу C4, C5 и N7; формил-ТГФК - C2 и C8.
ИМФ расходится к АМФ и ГМФ
ИМФ - развилка, а не конечный запасной продукт. Для синтеза АМФ к ИМФ сначала присоединяется аспартат с затратой ГТФ: образуется аденилосукцинат, из которого аденилосукцинат-лиаза удаляет фумарат. Азот аспартата остаётся в адениновом основании как N6. Использование ГТФ на ветви АМФ - часть перекрёстной настройки: избыток одного типа нуклеотида не должен автоматически усиливать собственное производство.
Путь к ГМФ иной: ИМФ окисляется до ксантозинмонофосфата (КМФ), затем ГМФ-синтетаза вводит амидный азот глутамина с затратой АТФ. Здесь в гуаниновом основании появляется N2. В итоге АМФ и ГМФ получают разные дополнительные доноры и разные энергетические нуклеотиды. Это удобный ориентир в тесте: АМФ - аспартат и ГТФ, ГМФ - глутамин и АТФ.
Тормоза и обратная связь
Клетке опасно накапливать нуклеотиды не меньше, чем испытывать их дефицит. ФРПФ-синтетаза тормозится АДФ и ГДФ, а глутамин-ФРПФ-амидотрансфераза активируется ФРПФ и аллостерически подавляется конечными пуриновыми нуклеотидами ИМФ, АМФ и ГМФ. Это ретроингибирование: продукт сообщает раннему этапу, что новый поток ему не нужен.
Есть и регуляция на развилке. АМФ сдерживает собственную ветвь через аденилосукцинат-синтетазу, а ГМФ - через ИМФ-дегидрогеназу. Перекрёстное потребление ГТФ и АТФ выравнивает пулы. Не стоит говорить, что один фермент «выключает весь обмен»: это сеть сигналов, которая отвечает на соотношение ФРПФ, энергии и готовых нуклеотидов.
Практически полезно разделять уровни контроля. Ранний общий шаг отвечает на вопрос, сколько пуринового материала войдёт в путь; ветви после ИМФ отвечают на соотношение аденилатов и гуанилатов. Если в условии сказано, что вырос только ГМФ, нельзя автоматически ожидать усиления всей цепи от ФРПФ: избыток продукта должен затормозить прежде всего подходящую ветвь и участвовать в обратном торможении раннего фермента. Если же повышен ФРПФ, он одновременно даёт больше субстрата амидотрансферазе и ослабляет относительное ограничение на входе. Такая причинная цепочка помогает решать задачи без заучивания разрозненных стрелок.
Реутилизация: короткий путь и синдром Леша-Нихана
Путь реутилизации экономит энергию: свободное основание получает рибозофосфат от ФРПФ и сразу становится нуклеотидом. Гипоксантин-гуанин-фосфорибозилтрансфераза, ГГФРТ (HPRT), образует ИМФ из гипоксантина и ГМФ из гуанина. Аденин возвращает аденин-фосфорибозилтрансфераза. Это не запасной пустяк, а способ сберечь сложную сборку кольца.
При тяжёлом дефиците ГГФРТ развивается Х-сцепленный синдром Леша-Нихана. Основания хуже реутилизируются, ФРПФ остаётся доступнее, синтез de novo усиливается, а избыток пуринов распадается до уратов. Гиперурикемия объясняет камни и отложения урата, но не сводит к себе неврологические проявления синдрома. Это важно для клинической логики: коррекция уратов не равна устранению всех последствий ферментного дефекта.
Распад, подагра и лекарства
Пуриновые нуклеотиды деградируют через гипоксантин и ксантин до мочевой кислоты; ключевую окислительную ступень выполняет ксантиноксидаза. Если уратов слишком много, кристаллы моноурата натрия способны запускать воспаление суставов при подагре. Аллопуринол структурно похож на гипоксантин, а его активный метаболит оксипуринол ингибирует ксантиноксидазу, поэтому образование мочевой кислоты снижается. Это учебное объяснение механизма, а не схема самоназначения препарата: выбор и дозы лечащий врач связывает с диагнозом, сопутствующими состояниями и рисками.
Полезно различать снижение синтеза и ускорение выведения уратов: это разные фармакологические стратегии. В биохимической задаче аллопуринол ставят на конечный участок распада, а не на амидотрансферазу и не на ГГФРТ. При его ингибировании повышается доля предшественников, более растворимых, чем мочевая кислота; одновременно реутилизация гипоксантина может увеличивать пул нуклеотидов и поддерживать обратное торможение пути de novo. Последнее объясняет, почему линии синтеза и распада нельзя изучать как две полностью независимые схемы.
Связь с лекарствами есть и выше по пути. Метотрексат нарушает восстановление фолатных коферментов, от которых зависят формильные переносы; тиопуриновые аналоги, такие как меркаптопурин, после метаболической активации вмешиваются в пуриновый обмен. В быстро делящихся клетках потребность в нуклеотидах высока, поэтому этот обмен стал мишенью противоопухолевой терапии. Но фраза «препарат блокирует синтез ДНК» слишком груба: конкретная мишень, превращения лекарства и клиническое применение различаются.
Частые ошибки
- Рисуют готовое пуриновое кольцо, присоединяемое к рибозе. В пути de novo кольцо собирается на ФРПФ.
- Приписывают N1 глутамину. Его даёт аспартат; глутамин даёт N9 и N3.
- Называют ИМФ гуаниновым нуклеотидом. ИМФ содержит гипоксантин и является общей развилкой.
- Путают ветви: АМФ требует аспартата и ГТФ, ГМФ - глутамина и АТФ.
- Считают, что аллопуринол растворяет кристаллы непосредственно. Его основной эффект - снижение образования мочевой кислоты через ингибирование ксантиноксидазы.
FAQ
Почему ИМФ синтезируется раньше АМФ и ГМФ? ИМФ - первый нуклеотид с полностью собранным пуриновым кольцом. Из него двумя разными ветвями клетка получает адениловый и гуаниловый пулы.
Какие вещества дают атомы пуринового кольца? Глицин даёт C4, C5, N7; глутамин - N3 и N9; аспартат - N1; CO2 - C6; N10-формил-ТГФК - C2 и C8.
Чем реутилизация отличается от de novo? При реутилизации готовое свободное основание присоединяется к ФРПФ. При de novo кольцо собирают заново из небольших предшественников прямо на рибозофосфате.
Коротко
Синтез пуриновых нуклеотидов начинается с ФРПФ и приводит через сборку кольца на рибозе к ИМФ. Глицин, глутамин, аспартат, CO2 и две формильные группы ТГФК дают атомы пуринового основания; затем ИМФ расходится к АМФ и ГМФ. Конечные нуклеотиды тормозят ранние этапы, а реутилизация через ГГФРТ экономит ресурсы. Нарушения этой сети связывают биохимию с синдромом Леша-Нихана, гиперурикемией, подагрой и лекарственными мишенями.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.