Синтез креатина: этапы, ферменты и роль органов
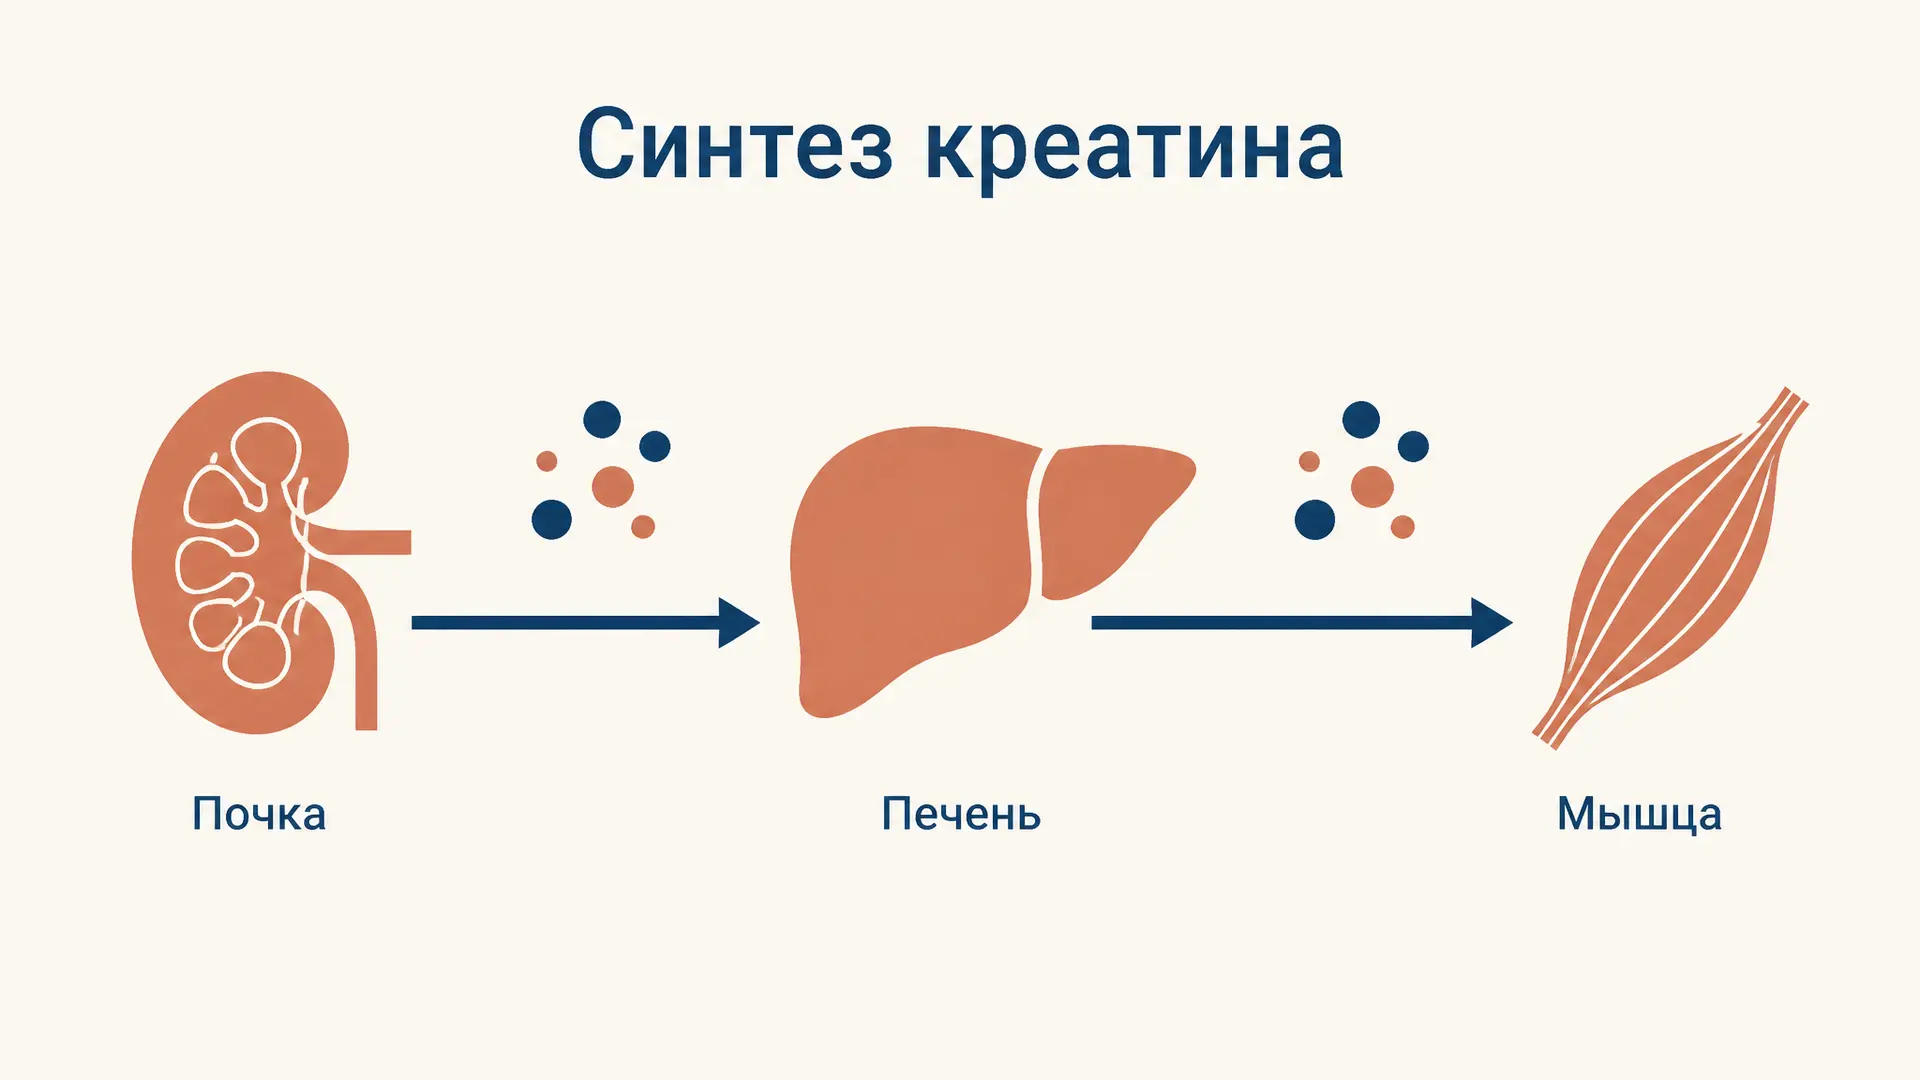
Креатин помогает клеткам с высокими энергетическими потребностями поддерживать запас быстро доступной энергии. Организм получает его с пищей и синтезирует сам. Чтобы проследить собственный синтез, достаточно связать две реакции: сначала из аргинина и глицина образуется гуанидиноацетат, затем он получает метильную группу и превращается в креатин. В этом пути участвуют разные органы, а готовый продукт ещё должен попасть в клетки-потребители.
Из чего образуется креатин
Для двух основных реакций нужны аргинин, глицин и S-аденозилметионин. Глицин даёт основу будущей молекулы, аргинин передаёт амидиновую группу, а S-аденозилметионин, сокращённо SAM, служит донором метильной группы. SAM образуется из метионина и АТФ в отдельной реакции. Поэтому в учебном ответе уместно назвать все три аминокислоты источниками материала, но в уравнении второго этапа непосредственный донор - именно SAM, а не свободный метионин.
Молекула креатина не входит в состав белков. Она присутствует в свободной форме и в форме фосфокреатина; соотношение зависит от состояния ткани. Синтез восполняет часть потерь общего пула, а пищевой креатин, особенно из мяса и рыбы, тоже может вносить вклад. Соотношение источников зависит от рациона и физиологических условий, поэтому фиксированная доля не подходит каждому человеку.
Важно отличать построение молекулы от её последующего использования. При синтезе атомы и группы исходных веществ собираются в креатин. В реакции креатинкиназы уже готовый креатин обратимо фосфорилируется. Это разные задачи и разные ферменты.
Первый этап: аргинин и глицин
Фермент аргинин:глицин-амидинотрансфераза, или AGAT, переносит амидиновую группу с аргинина на глицин. Продукты реакции - гуанидиноацетат и орнитин:
Перенос группы объясняет, почему весь аргинин не становится частью креатина: остаток аргинина выходит в виде орнитина. Гуанидиноацетат, также называемый гуанидиноуксусной кислотой, - непосредственный предшественник следующего этапа. Название AGAT относится к ферменту; кодирующий его ген обозначают GATM.
Высокая активность AGAT характерна для почек и поджелудочной железы. В исследовании на людях и крысах показано образование гуанидиноацетата почкой in vivo: это подтверждает её вклад в межорганный обмен, а не означает, что первая реакция возможна только там. Подробнее о самой работе - в публикации Edison и соавторов.
Второй этап: метилирование гуанидиноацетата
Фермент гуанидиноацетат-N-метилтрансфераза, GAMT, переносит метильную группу с SAM на гуанидиноацетат. Так образуются креатин и S-аденозилгомоцистеин, сокращённо SAH:
GAMT особенно значима в печени. После переноса группы SAH включается в дальнейший обмен, связанный с гомоцистеином. Образование SAM, реметилирование и другие превращения рассмотрены отдельно в статье про обмен метионина. Для задачи о креатине достаточно понимать: SAM расходуется как донор группы, а метиониновый обмен помогает обеспечивать этот ресурс.
Если сложить два уравнения, промежуточный гуанидиноацетат сократится. На одну молекулу креатина в этих реакциях приходятся одна молекула глицина, одна аргинина и одна SAM; сопутствующие продукты - орнитин и SAH. Это стехиометрия двух показанных стадий, а не полный энергетический бюджет организма: образование и восстановление предшественников требуют дополнительных реакций.
Как сотрудничают органы
Удобная учебная схема начинается в почке, где AGAT образует гуанидиноацетат. С кровью предшественник может поступать в печень, где GAMT превращает его в креатин. Готовый креатин переносится кровью к тканям, в том числе мышцам и мозгу. Переход вещества между органами - важная часть схемы: ферменты обеих стадий не обязаны находиться в одной и той же клетке.
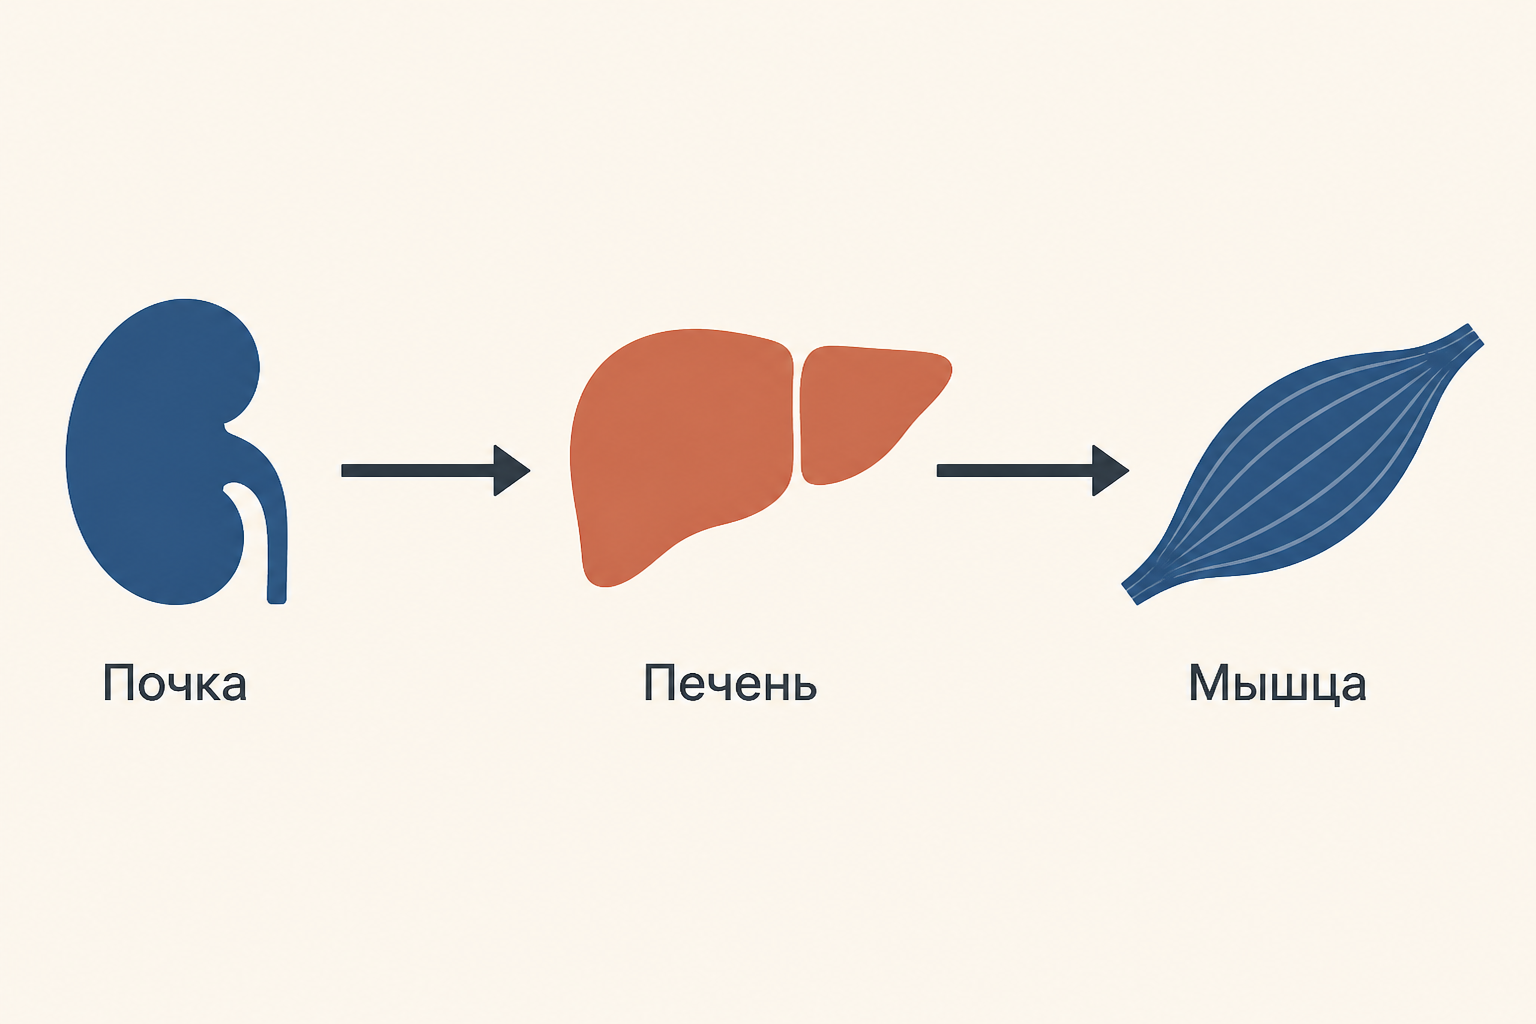
Рисунок показывает основной маршрут, а не единственно возможную локализацию. Ферменты пути обнаружены и в других тканях, включая мозг; активность зависит от ткани. Поэтому фраза «синтез возможен исключительно в почках и печени» слишком категорична. Обзор наследственных нарушений с описанием тканевого распределения опубликован в GeneReviews.
Для входа креатина во многие клетки нужен переносчик SLC6A8, использующий градиенты натрия и хлорида. Наличие креатина в крови само по себе не гарантирует его достаточного поступления в клетку: транспорт - отдельное звено после синтеза. Скелетные мышцы накапливают значительную часть общего запаса, хотя не являются главным местом его образования.
Что происходит после синтеза
В клетке креатинкиназа обратимо переносит фосфорильную группу между АТФ и креатином. При доступности АТФ может образовываться фосфокреатин; когда потребность в АТФ резко возрастает, обратная реакция помогает быстро её восполнять. Подробный разбор скорости, ёмкости системы и восстановления запаса дан в статье о креатинфосфатном пути ресинтеза АТФ.
Фосфокреатин полезен как часть системы переноса энергии, но не является первичным источником энергии для организма. На восстановление его запаса требуется АТФ, полученная другими путями. Связь переноса фосфорильной группы с энергетикой клеток раскрыта в материале о макроэргических соединениях.
Часть креатина и фосфокреатина самопроизвольно превращается в креатинин, который выводится почками. Сходство названий не делает вещества взаимозаменяемыми: креатин участвует в энергетическом обмене, а креатинин служит продуктом его распада. Для интерпретации почечных показателей важно помнить о механизме клубочковой фильтрации, а не выводить диагноз из одного термина.
Регуляция и нарушения пути
Синтез меняется в зависимости от доступности креатина. При увеличении его поступления активность образования может снижаться за счёт регуляции первого этапа. В эксперименте на культуре человеческих клеток исследователи наблюдали зависимость экспрессии AGAT от внутриклеточного креатина; переносить количественные результаты этой модели напрямую на весь организм нельзя. Описание эксперимента доступно в оригинальной публикации.
Различают наследственные нарушения AGAT, GAMT и переносчика SLC6A8. При дефиците AGAT образование гуанидиноацетата снижено; при дефиците GAMT нарушается следующий шаг и гуанидиноацетат может накапливаться. При нарушении переносчика проблема состоит в поступлении креатина в клетки, хотя сами ферменты синтеза - другие белки. Эти состояния могут сопровождаться неврологическими проявлениями, но по одной схеме обмена их не диагностируют: нужны клиническая оценка и специальные исследования. Тактика лечения зависит от конкретного дефекта и определяется врачом.
Как разобрать учебную задачу
Допустим, в условной системе GAMT не работает, а AGAT сохраняет активность. Первый этап ещё способен образовывать гуанидиноацетат, но второй не превращает его в креатин обычным путём. Следовательно, ожидаются снижение образования креатина через этот путь и накопление предшественника. Это качественный вывод модели, а не предсказание точной концентрации в анализе: в живом организме действуют регуляция, транспорт и другие процессы.
Для сравнения представим дефект первого фермента, AGAT. Тогда образование гуанидиноацетата из указанных субстратов уменьшается ещё до стадии GAMT. Даже исправный второй фермент не сможет поддерживать обычную скорость пути при недостатке своего предшественника. В такой постановке полезно назвать оба последствия: меньше промежуточного вещества и меньше конечного продукта. Сравнение двух дефектов помогает увидеть, почему направление стрелок в схеме важно для объяснения.
Чтобы решить похожую задачу, сначала отметьте заблокированную стрелку, затем определите субстрат до неё и продукт после неё. Не путайте блок синтеза с дефектом транспортёра: при втором варианте молекула может образоваться, но хуже поступать в ткань. Отдельно запишите, какие данные условие действительно даёт, прежде чем говорить об уровне вещества в крови или моче.
Частые ошибки
- Называть креатинкиназу ферментом синтеза креатина. Она работает с уже образованным креатином и фосфокреатином.
- Считать метионин прямым донором метила для GAMT. В этой реакции группу передаёт SAM, образованный с участием метионина.
- Забывать орнитин. Он образуется наряду с гуанидиноацетатом на первой стадии.
- Сводить весь путь к одному органу. Почка и печень сотрудничают, а ферменты встречаются и в других тканях.
- Путать креатин с креатинином. Последний является продуктом превращения креатина и фосфокреатина.
FAQ
Какие ферменты нужны для синтеза креатина?
Две непосредственные стадии катализируют AGAT и GAMT. Для образования SAM из метионина нужна дополнительная ферментативная реакция.
Обязательно ли креатин должен поступать с пищей?
Организм способен синтезировать его самостоятельно. Вклад пищи различается в зависимости от рациона; при наследственных нарушениях синтеза или транспорта обмен требует отдельной медицинской оценки.
Почему в схеме участвуют и почка, и печень?
В почке высока активность AGAT, а в печени - GAMT. Предшественник может переноситься кровью между органами, хотя это упрощённое представление не исключает участия других тканей.
Коротко
Синтез креатина включает перенос амидиновой группы с аргинина на глицин с образованием гуанидиноацетата и орнитина, затем метилирование гуанидиноацетата с помощью SAM. Реакции проводят AGAT и GAMT. Готовый креатин доставляется к тканям, где участвует в системе фосфокреатина; его синтез, транспорт и превращение в креатинин следует различать.
Читайте также
Коферментные формы витаминов: таблица и функции
Коферментные формы витаминов группы B и витамина K: таблица превращений, переносимые группы и примеры реакций. Как отличить витамин от его активного производного.
Номенклатура ферментов: названия и шифр EC
Номенклатура ферментов на примерах: тривиальные и систематические названия, четыре части шифра EC, алгоритм поиска реакции в каталоге и типичные ошибки при чтении.
Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Азотистый баланс: расчёт, нормы и значение
Азотистый баланс: как вычислить поступление и выведение азота, отличить положительный баланс от отрицательного, оценить белок и незаменимые аминокислоты.
Мультиферментные комплексы: зачем ферменты работают вместе
Как мультиферментные комплексы ускоряют последовательные реакции: субстратное каналирование, защита интермедиатов, регуляция и примеры ПДК, ФАС и триптофансинтазы.
Дезаминирование аминокислот: типы реакций и ферменты
Дезаминирование аминокислот: окислительный и неокислительные типы, непрямое дезаминирование через глутамат, ключевые ферменты и судьба аммиака и кетокислот.