Дезаминирование аминокислот: типы реакций и ферменты
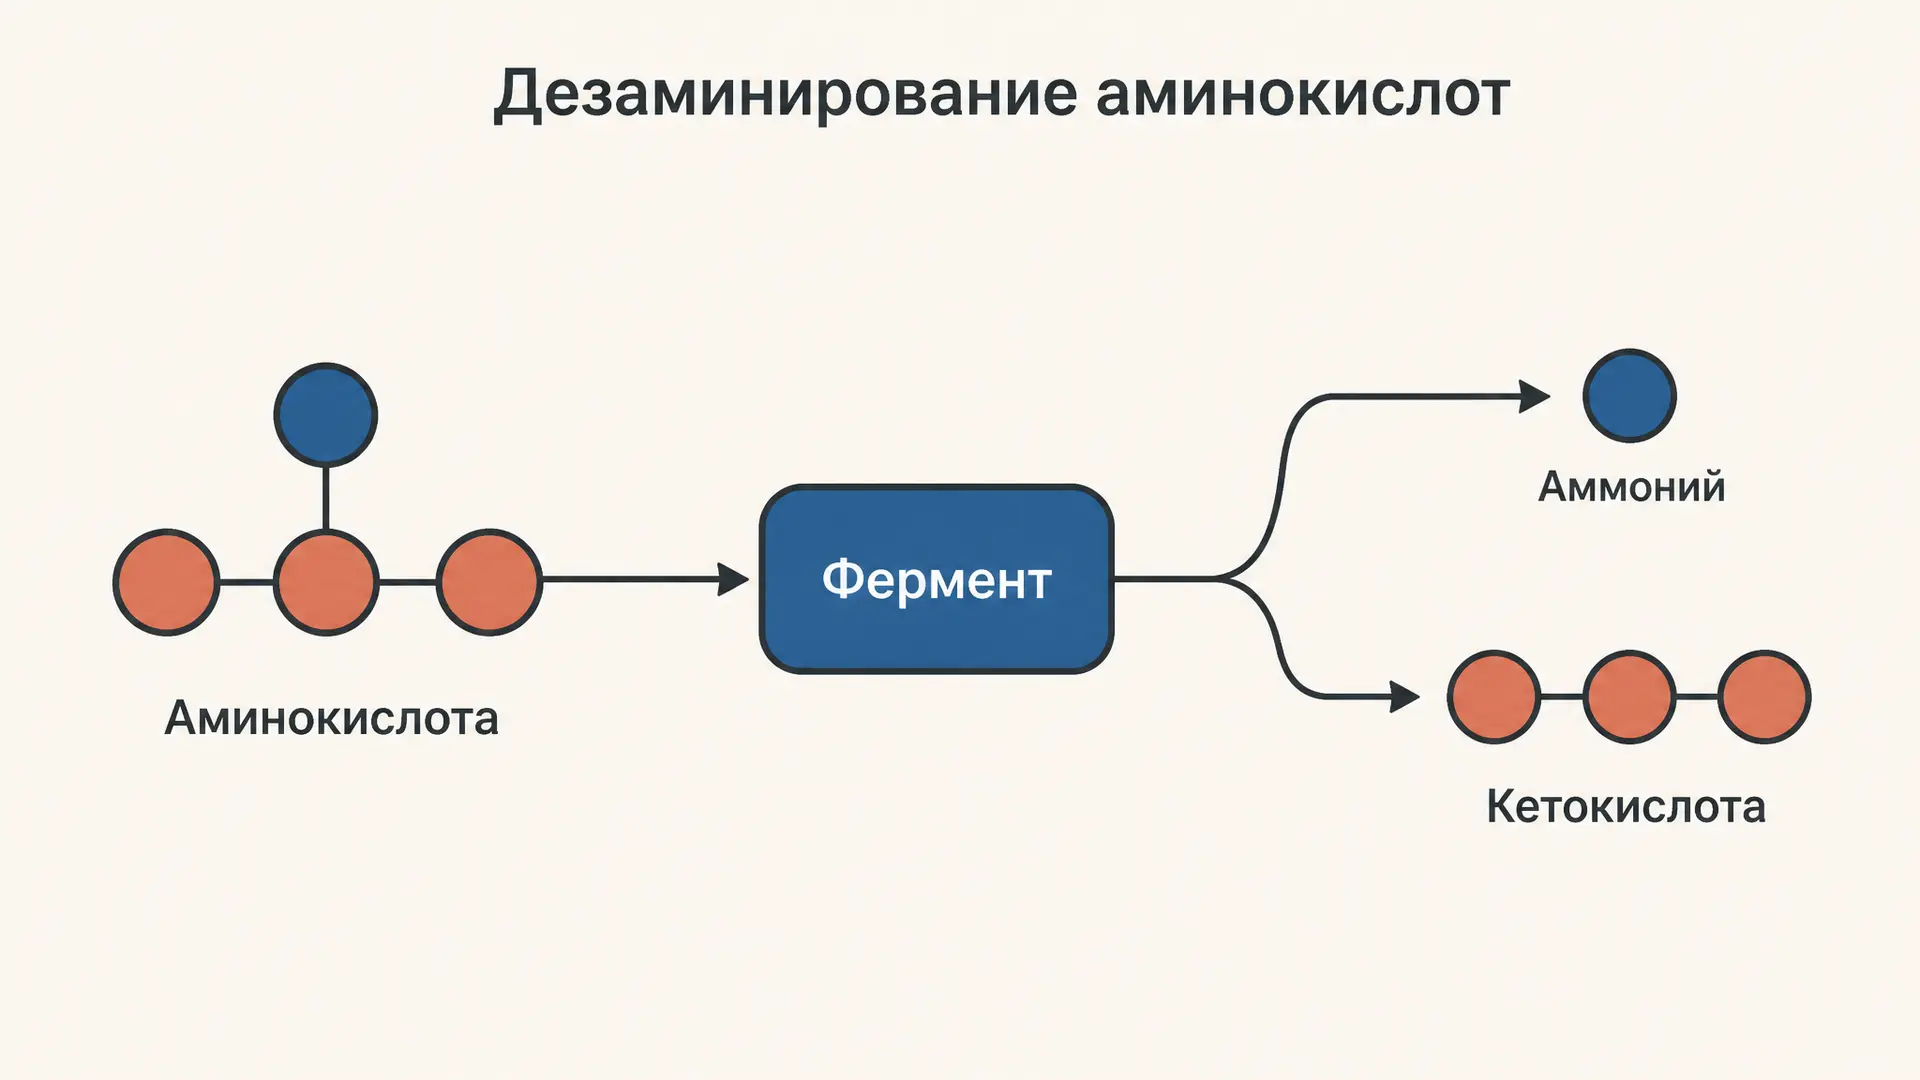
Дезаминирование аминокислот - это отщепление аминогруппы с образованием свободного аммиака и безазотистого остатка. С этой реакции начинается настоящий распад аминокислоты: пока азот сидит на альфа-углероде, молекула остаётся аминокислотой и может быть использована повторно, а как только аминогруппа ушла, углеродный скелет отправляется в энергетический обмен и обратной дороги к исходной аминокислоте уже нет. В учебных курсах тему спрашивают по-разному: где-то требуют все четыре типа реакции с уравнениями, где-то только окислительный путь и роль глутаматдегидрогеназы, где-то - связь с циклом мочевины. Ниже разберём типы дезаминирования, ферменты каждого пути и судьбу обоих продуктов. Чтобы собрать ответ под свою формулировку, воспользуйтесь формой ниже.
Что такое дезаминирование аминокислот
Формально дезаминирование - это разрыв связи и высвобождение азота в виде аммиака, который в физиологических условиях почти целиком существует как ион аммония : при pH 7.4 и на одну молекулу приходится примерно шестьдесят ионов . Именно поэтому в уравнениях реакций корректнее писать , хотя по традиции говорят «выделяется аммиак».
Ключевое отличие от трансаминирования - необратимость по азоту. При трансаминировании аминокислот аминогруппа не теряется, а перебрасывается на кетокислоту-акцептор, и суммарное количество азота в пуле аминокислот не меняется. Дезаминирование выводит азот из этого пула наружу, поэтому именно оно определяет скорость катаболизма белка и объём выведения мочевины.
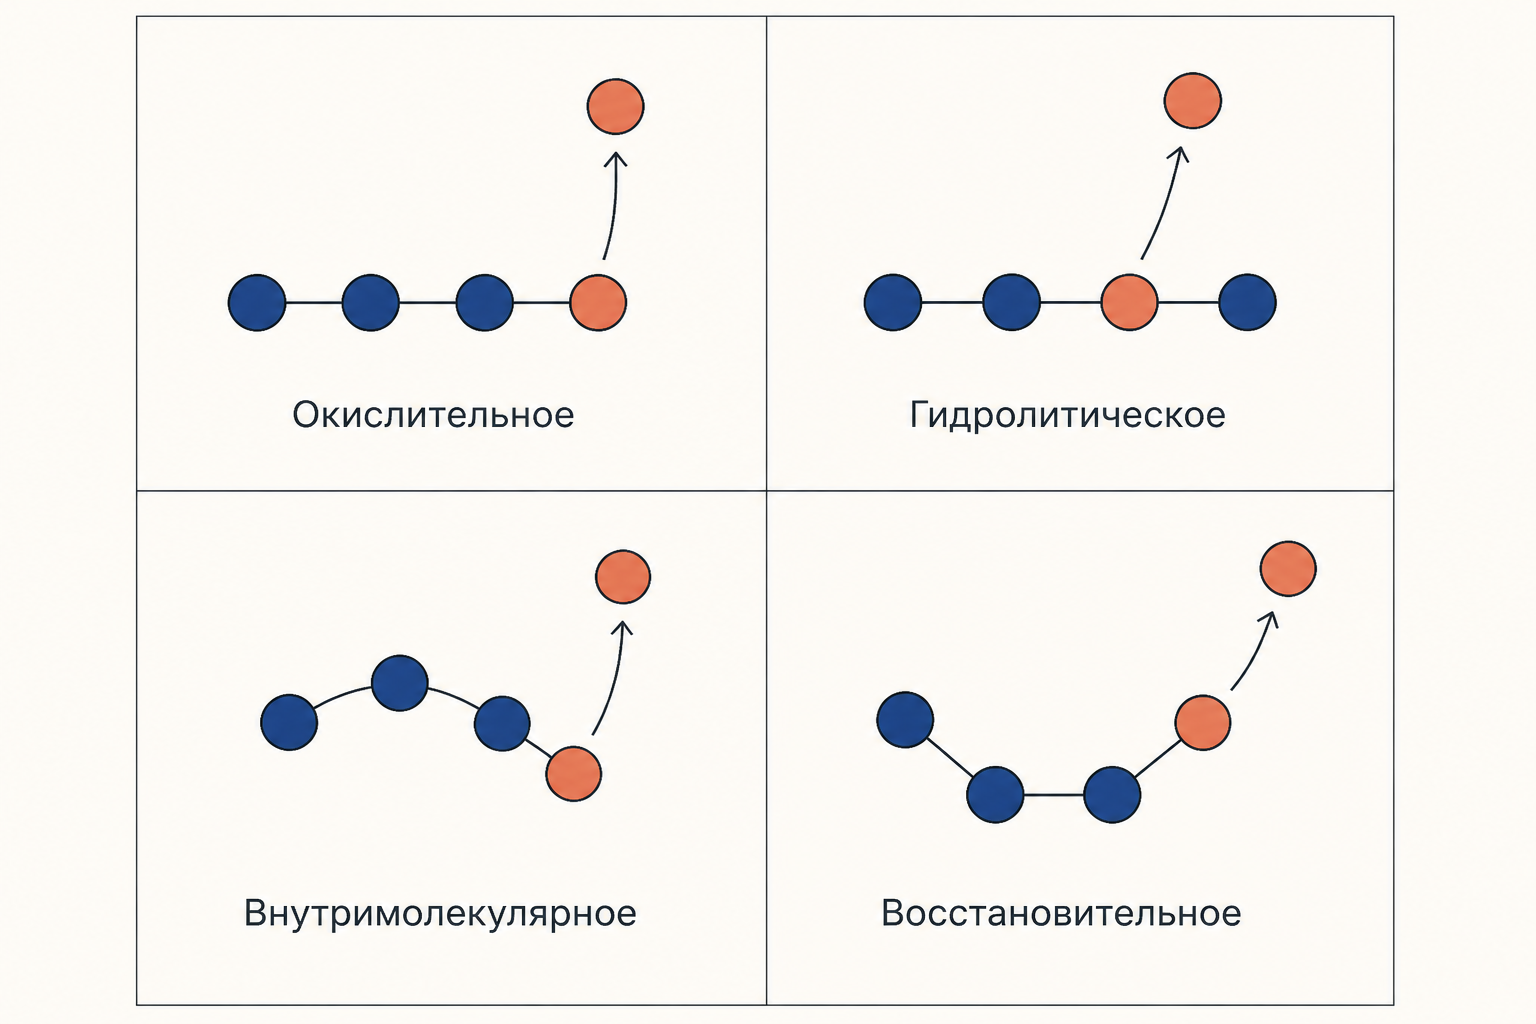
По химии процесса выделяют четыре типа: окислительное, гидролитическое, внутримолекулярное и восстановительное. У человека физиологически значим по сути один - окислительный, а остальные представлены точечно или встречаются у микроорганизмов. Отдельно стоит непрямое дезаминирование, которое формально не тип реакции, а двухступенчатая схема.
Окислительное дезаминирование: главный путь
Окислительное дезаминирование идёт в две стадии. Сначала аминокислота окисляется до иминокислоты с переносом двух атомов водорода на кофермент, затем иминокислота спонтанно, без участия фермента, гидролизуется водой до кетокислоты и аммония:
Главный фермент пути - глутаматдегидрогеназа (GLUD1) митохондриального матрикса. Она работает практически только с глутаматом, зато делает это с огромной мощностью и одинаково хорошо использует и . Реакция обратима, но в клетке сдвинута в сторону распада, потому что образующийся аммоний немедленно откачивается на обезвреживание. Аллостерический контроль двусторонний: АДФ и ГДФ активируют фермент, ГТФ и АТФ тормозят - то есть азот сжигается тогда, когда клетке не хватает энергии. Подробный разбор кинетики и регуляции есть в материале об окислительном дезаминировании глутамата.
Вторая группа ферментов - оксидазы аминокислот, флавопротеины, отдающие водород прямо на кислород с образованием перекиси:
Перекись тут же разрушается каталазой. Оксидаза L-аминокислот (кофермент ФМН) у человека почти бесполезна: её оптимум лежит около pH 10, а при физиологических 7.4 активность ничтожна. Оксидаза D-аминокислот (кофермент ФАД), наоборот, активна и работает как санитар - обезвреживает D-изомеры, поступающие из бактериальных стенок и пищи, переводя их в общие альфа-кетокислоты.
Неокислительные типы дезаминирования
Гидролитическое дезаминирование заменяет аминогруппу на гидроксильную, продукт - оксикислота:
У человека для свободных аминокислот этот путь не характерен, зато по такому же механизму работают дезаминазы азотистых оснований: аденозиндезаминаза и цитидиндезаминаза, важные для обмена нуклеотидов.
Внутримолекулярное дезаминирование отщепляет аммиак вместе с водородом соседнего атома, давая ненасыщенную кислоту:
Единственный клинически заметный пример у человека - гистидаза печени и кожи, превращающая гистидин в уроканиновую кислоту. Наследственный дефект этого фермента даёт гистидинемию.
Восстановительное дезаминирование требует доноров водорода и даёт насыщенную карбоновую кислоту. Оно свойственно анаэробным бактериям кишечника и лежит в основе гниения белков: так из аминокислот получаются пропионовая и масляная кислоты.
Особняком стоит непрямое отщепление азота у серина и треонина. Сериндегидратаза, зависимая от пиридоксальфосфата, сначала отнимает воду, а образующийся нестойкий аминоакрилат самопроизвольно присоединяет её обратно и распадается на пируват и аммоний. Формально это дегидратация, а по результату - дезаминирование, поэтому в задачах его относят к неокислительным путям. Кофермент здесь тот же, что и в трансаминазах, - подробнее о нём в разборе роли пиридоксальфосфата.
Непрямое дезаминирование: как работает большинство аминокислот
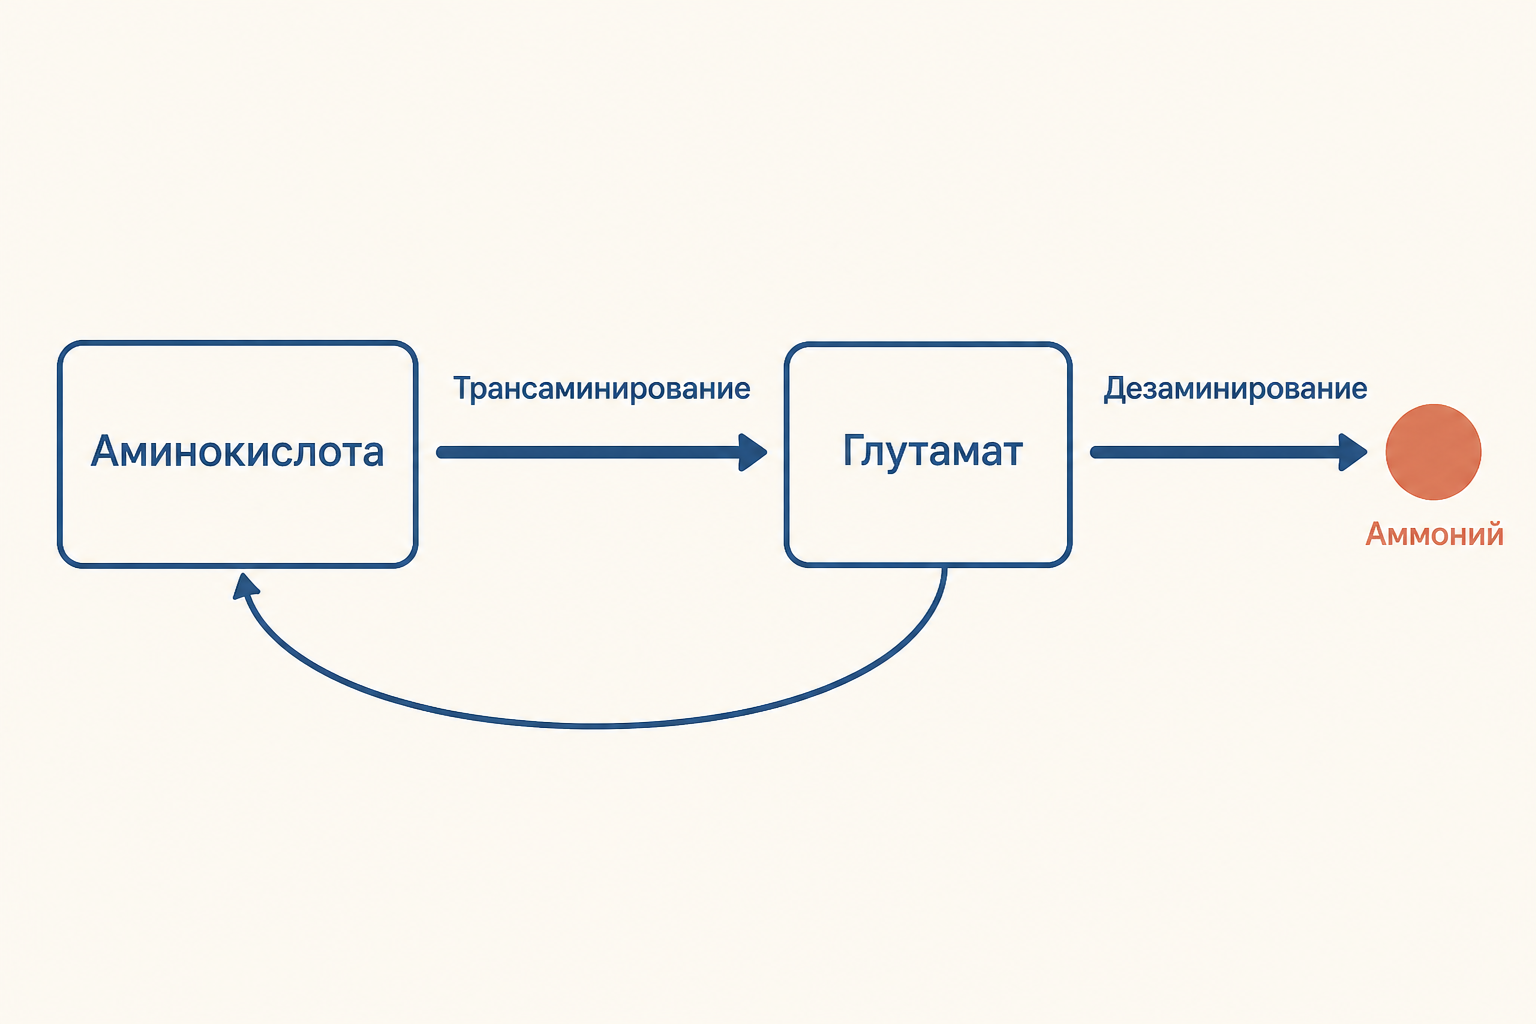
Глутаматдегидрогеназа берёт только глутамат, а оксидазы при pH 7.4 практически стоят. Возникает вопрос: как тогда теряют азот аланин, валин, лейцин, аспартат и остальные? Ответ - через двухступенчатую схему, которую называют непрямым дезаминированием, или трансдезаминированием.
На первой стадии аминотрансфераза переносит аминогруппу с любой аминокислоты на альфа-кетоглутарат, и весь азот собирается на одном коллекторе - глутамате. На второй стадии глутамат окислительно дезаминируется глутаматдегидрогеназой, отдавая аммоний и возвращая альфа-кетоглутарат обратно в оборот. Акцептор регенерирует, поэтому схема работает как конвейер:
В скелетной мышце работает второй вариант непрямого пути - цикл пуриновых нуклеотидов. Азот через аспартат передаётся на инозинмонофосфат, образуется аденилосукцинат, затем АМФ, и АМФ-дезаминаза отщепляет от него аммиак. Побочный продукт цикла - фумарат, который подпитывает цикл Кребса при интенсивной работе. Наследственная недостаточность мышечной АМФ-дезаминазы проявляется быстрой утомляемостью и болью при нагрузке.
Судьба продуктов: аммоний и углеродный скелет
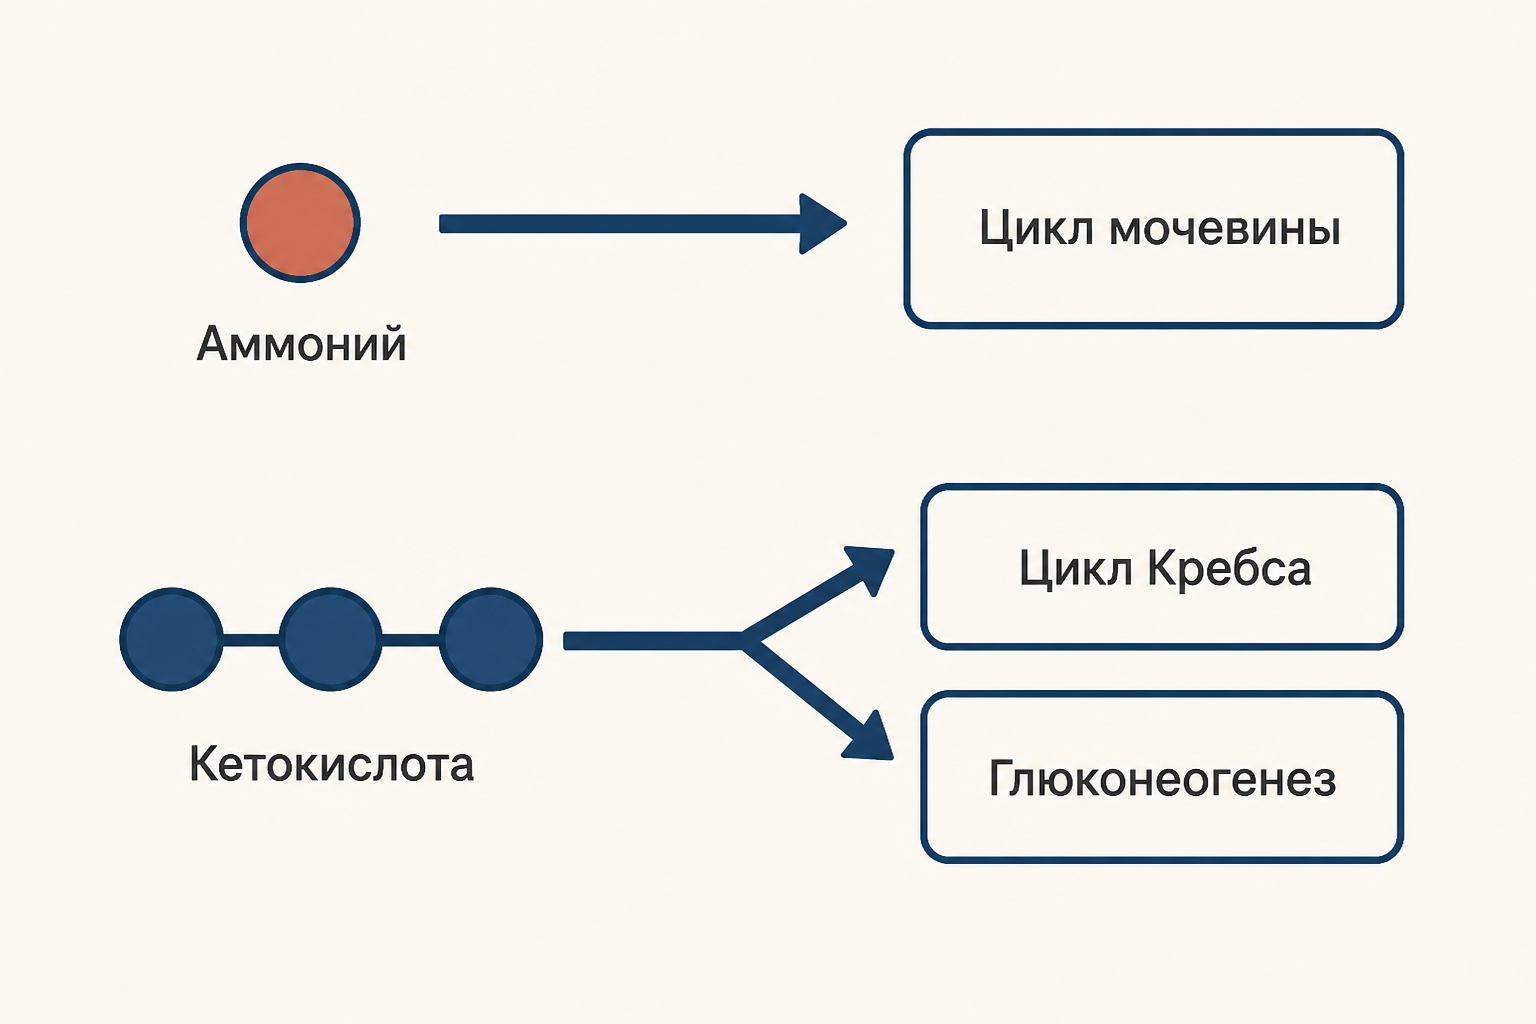
Дезаминирование аминокислот всегда даёт два продукта, и дальше их пути расходятся.
Аммоний токсичен для нервной ткани: он оттягивает альфа-кетоглутарат из цикла Кребса на синтез глутамата и глутамина, тормозя энергетику нейронов. Поэтому его связывают на месте. В мышцах и мозге глутаминсинтетаза пришивает аммоний к глутамату и получает нейтральный глутамин - транспортную форму азота крови. В мышцах работает ещё и глюкозо-аланиновый цикл: азот уезжает в печень в виде аланина. В гепатоцитах глутамин и аланин снова отдают аммоний, и он уходит в цикл мочевины, где два атома азота (один из аммония, другой из аспартата) превращаются в мочевину - конечный продукт с суточной экскрецией порядка 25 граммов.
Углеродный скелет - альфа-кетокислота - идёт по одному из двух маршрутов. Глюкогенные аминокислоты дают пируват или интермедиаты цикла Кребса, из которых печень строит глюкозу через глюконеогенез. Кетогенные (лейцин и лизин) дают ацетил-КоА или ацетоацетат и в глюкозу превратиться не могут. Несколько аминокислот, включая фенилаланин, тирозин, изолейцин и триптофан, смешанные - часть скелета уходит в глюкозу, часть в кетоновые тела.
Частые ошибки
- Путают дезаминирование с трансаминированием. При трансаминировании свободный аммиак не образуется вообще: азот только меняет носителя. Если в ответе на вопрос про трансаминирование появился - ответ неверен.
- Пишут, что оксидаза L-аминокислот обеспечивает распад белка. Её оптимум pH около 10, при физиологическом pH она почти неактивна. Основной поток азота идёт через непрямое дезаминирование.
- Забывают вторую, неферментативную стадию. Фермент образует иминокислоту, а гидролиз имина до кетокислоты идёт самопроизвольно с водой. В уравнении обязательна .
- Считают реакцию GLUD1 необратимой. Она равновесна, и при высоком аммонии может идти в сторону синтеза глутамата - на этом основано временное связывание азота.
- Смешивают дезаминирование и декарбоксилирование. Первое отнимает азот и даёт кетокислоту, второе отнимает и даёт биогенный амин (гистамин, серотонин).
FAQ
Какие ферменты участвуют в дезаминировании аминокислот? Главный - глутаматдегидрогеназа митохондрий, работающая только с глутаматом. Дополнительно: оксидазы D- и L-аминокислот (флавопротеины), гистидаза, сериндегидратаза и треониндегидратаза, АМФ-дезаминаза в мышцах. Аминотрансферазы формально не дезаминируют, но обеспечивают первую стадию непрямого пути.
Где в клетке идёт дезаминирование? Окислительное дезаминирование глутамата - в матриксе митохондрий, там же, где начинается цикл мочевины: это сокращает путь аммония до карбамоилфосфатсинтетазы I. Оксидазы аминокислот локализованы в пероксисомах, рядом с каталазой, разрушающей перекись. Наиболее активный орган - печень, дополнительно почки, кишечник и мышцы.
Чем непрямое дезаминирование отличается от прямого? Прямое - одна реакция: фермент сразу отщепляет аминогруппу от конкретной аминокислоты. Непрямое - две сопряжённые реакции: трансаминирование переносит азот на альфа-кетоглутарат, и только потом глутамат дезаминируется. Через непрямой путь теряет азот большинство аминокислот, через прямой - почти исключительно глутамат.
Коротко
Дезаминирование аминокислот отщепляет аминогруппу в виде аммония и превращает аминокислоту в альфа-кетокислоту, запуская необратимый распад молекулы. Химически различают окислительный, гидролитический, внутримолекулярный и восстановительный типы, но у человека реально работает окислительный - через глутаматдегидрогеназу митохондрий, а большинство аминокислот подходит к ней окольным путём: сначала трансаминирование собирает азот на глутамате, затем глутамат окисляется. Аммоний уходит на обезвреживание через глутамин и цикл мочевины, а углеродный скелет - в цикл Кребса, глюконеогенез или кетоновые тела.
Читайте также
Азотистый баланс: расчёт, нормы и значение
Азотистый баланс: как вычислить поступление и выведение азота, отличить положительный баланс от отрицательного, оценить белок и незаменимые аминокислоты.
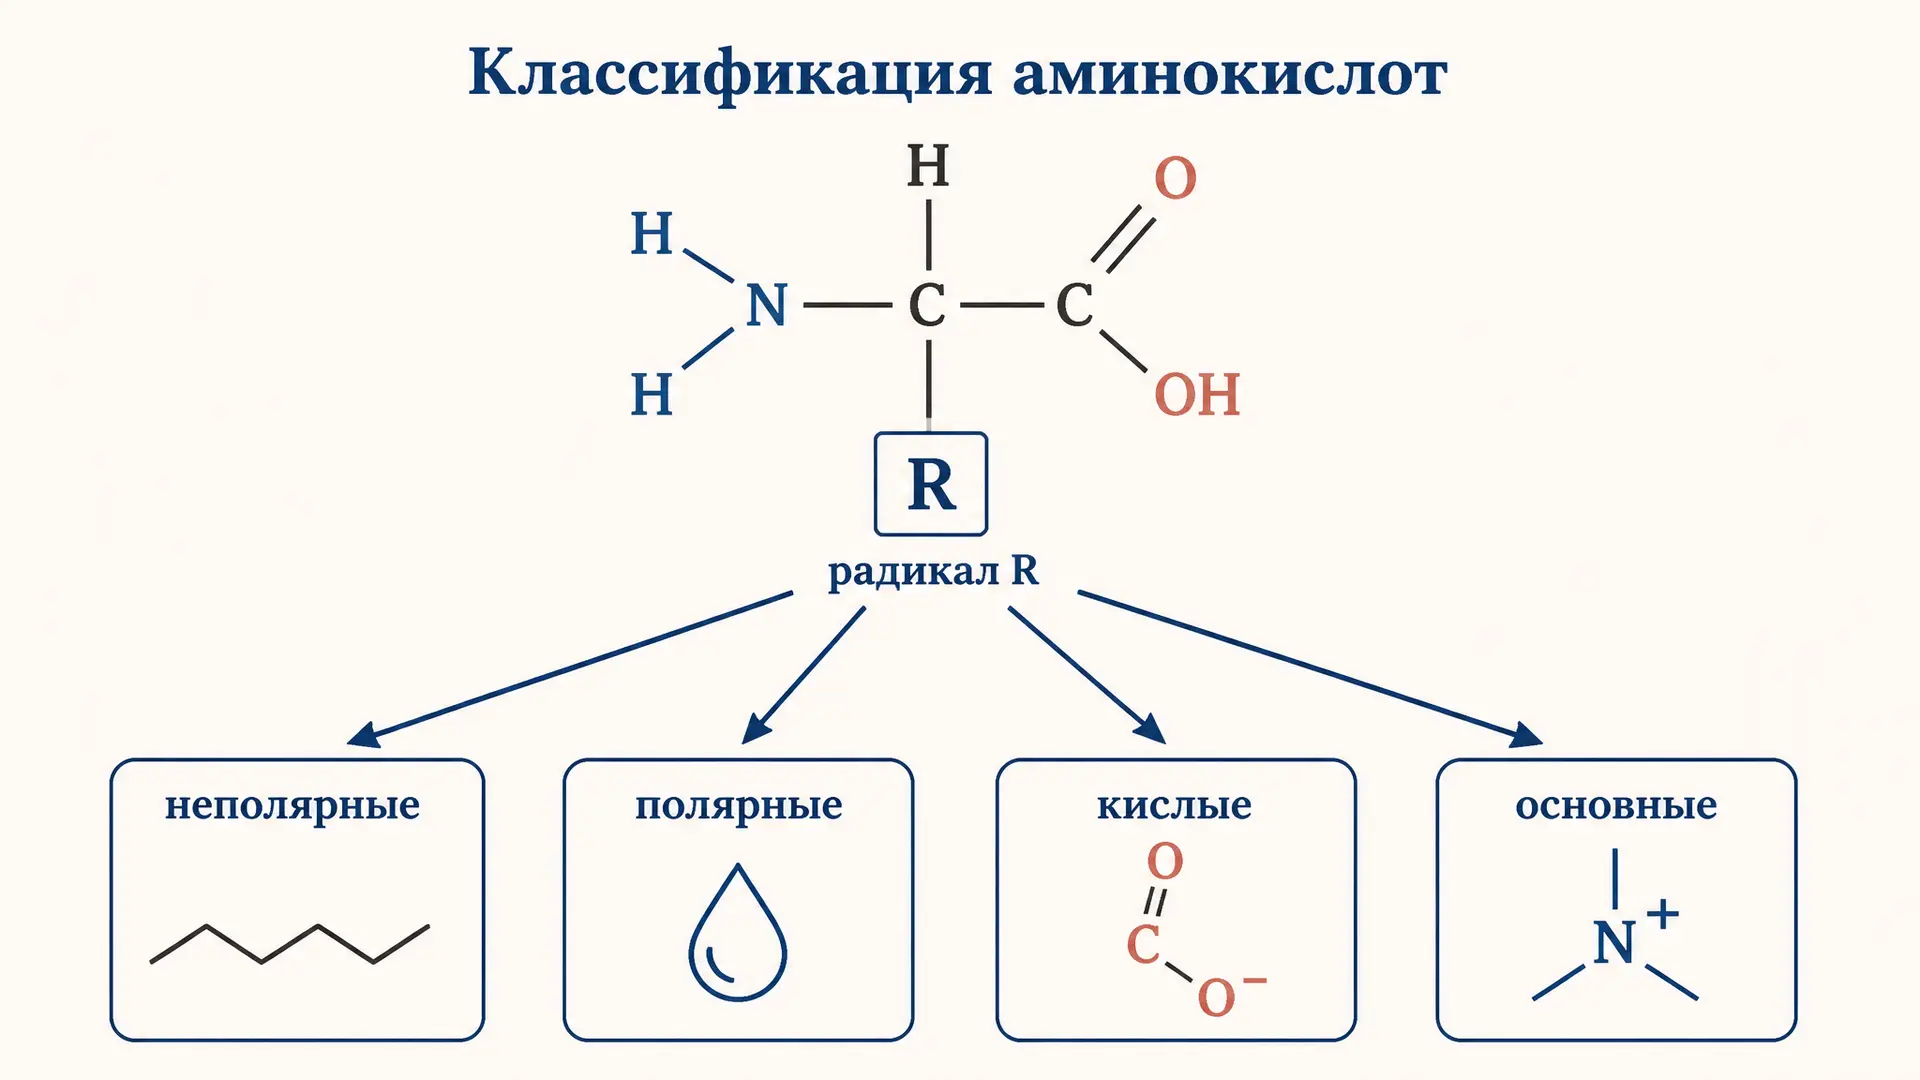
Классификация аминокислот по полярности радикала
Как разделить аминокислоты на неполярные, полярные незаряженные, кислые и основные по свойствам радикала R, с примерами, признаками заряда и логикой деления.
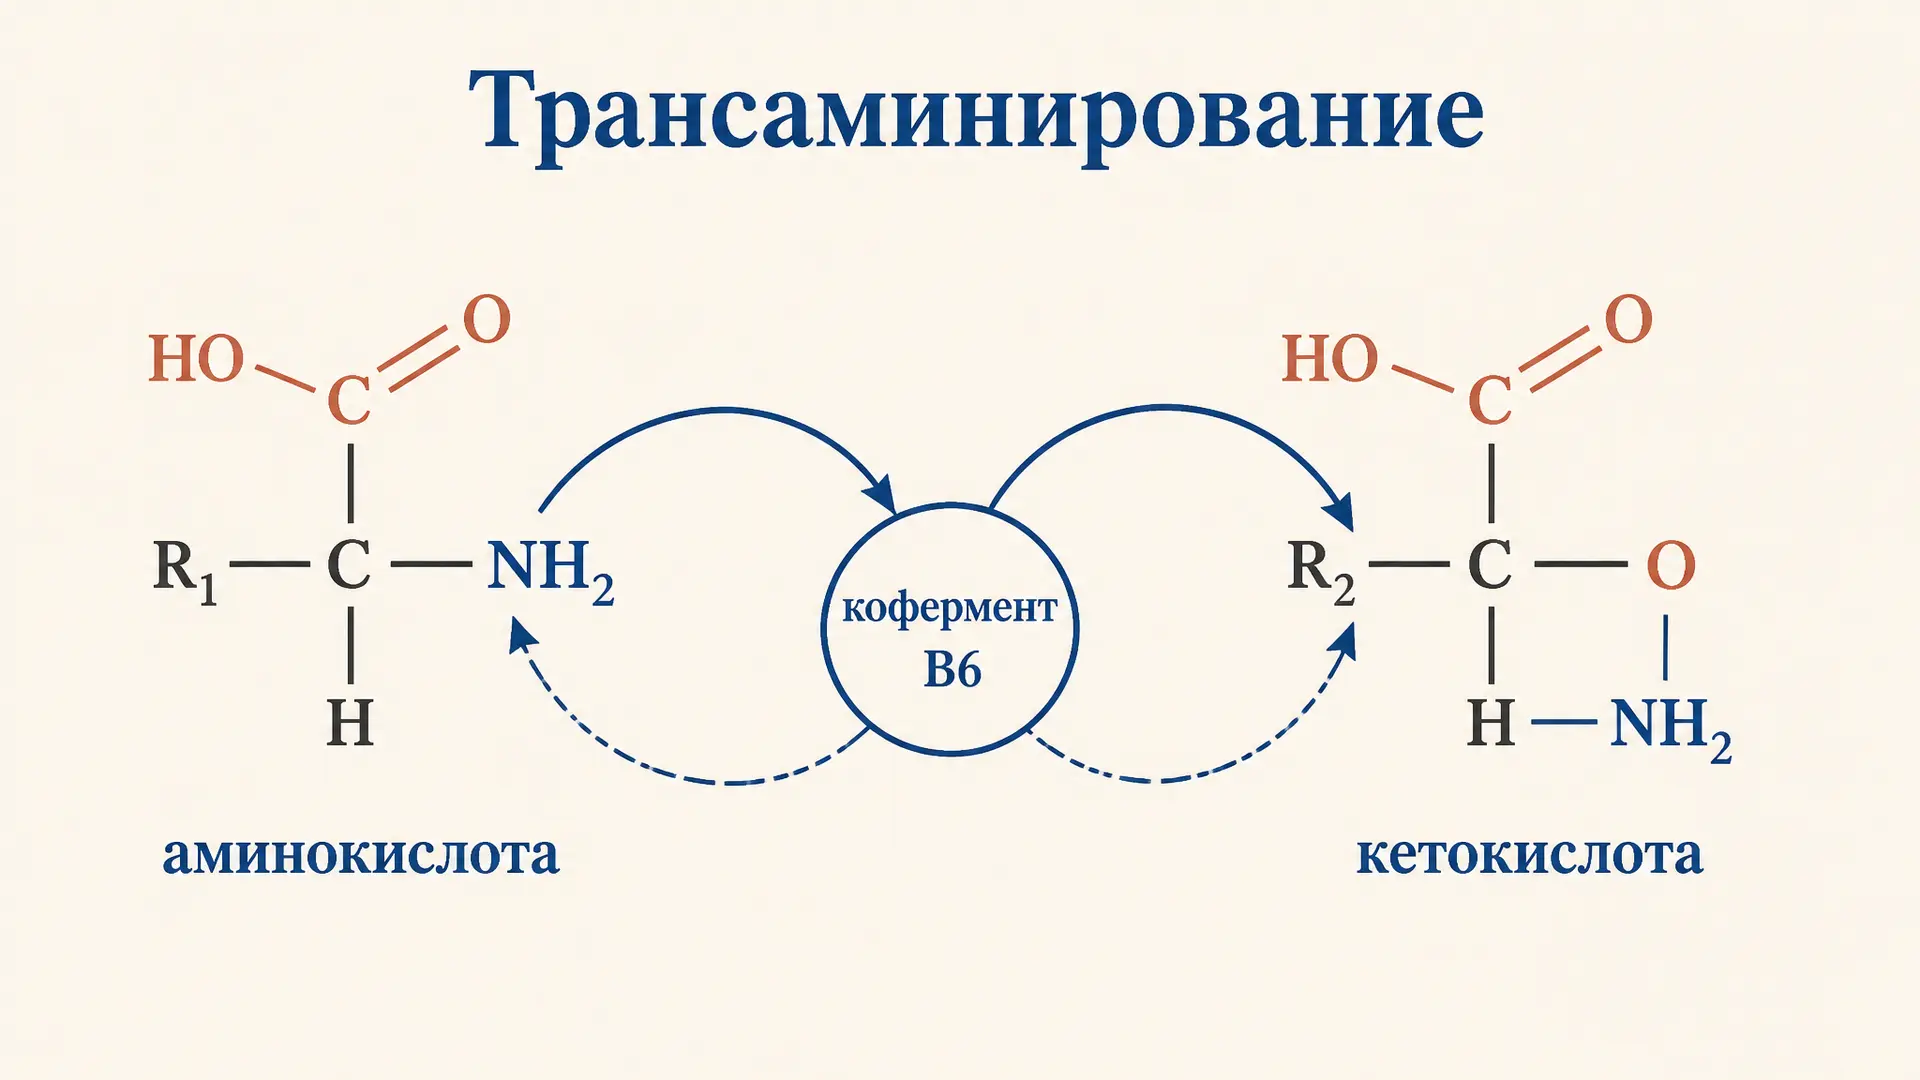
Трансаминирование аминокислот: механизм реакции
Механизм трансаминирования аминокислот: роль пиридоксальфосфата, пинг-понг кинетика, альдимин и кетимин, ключевые ферменты АЛТ и АСТ и сбор азота на глутамате.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Биосинтез жирных кислот: синтез пальмитата
Биосинтез жирных кислот в цитоплазме: цитратный челнок, ацетил-КоА-карбоксилаза, семь циклов синтазы, расход АТФ и НАДФН, регуляция липогенеза и сравнение с бета-окислением.
Гниение белков в кишечнике: продукты и защита
Гниение белков в кишечнике: как бактерии толстой кишки превращают аминокислоты в фенолы, индолы, амины и сернистые соединения и как их обезвреживает организм.