Обмен метионина: цикл SAM и гомоцистеин
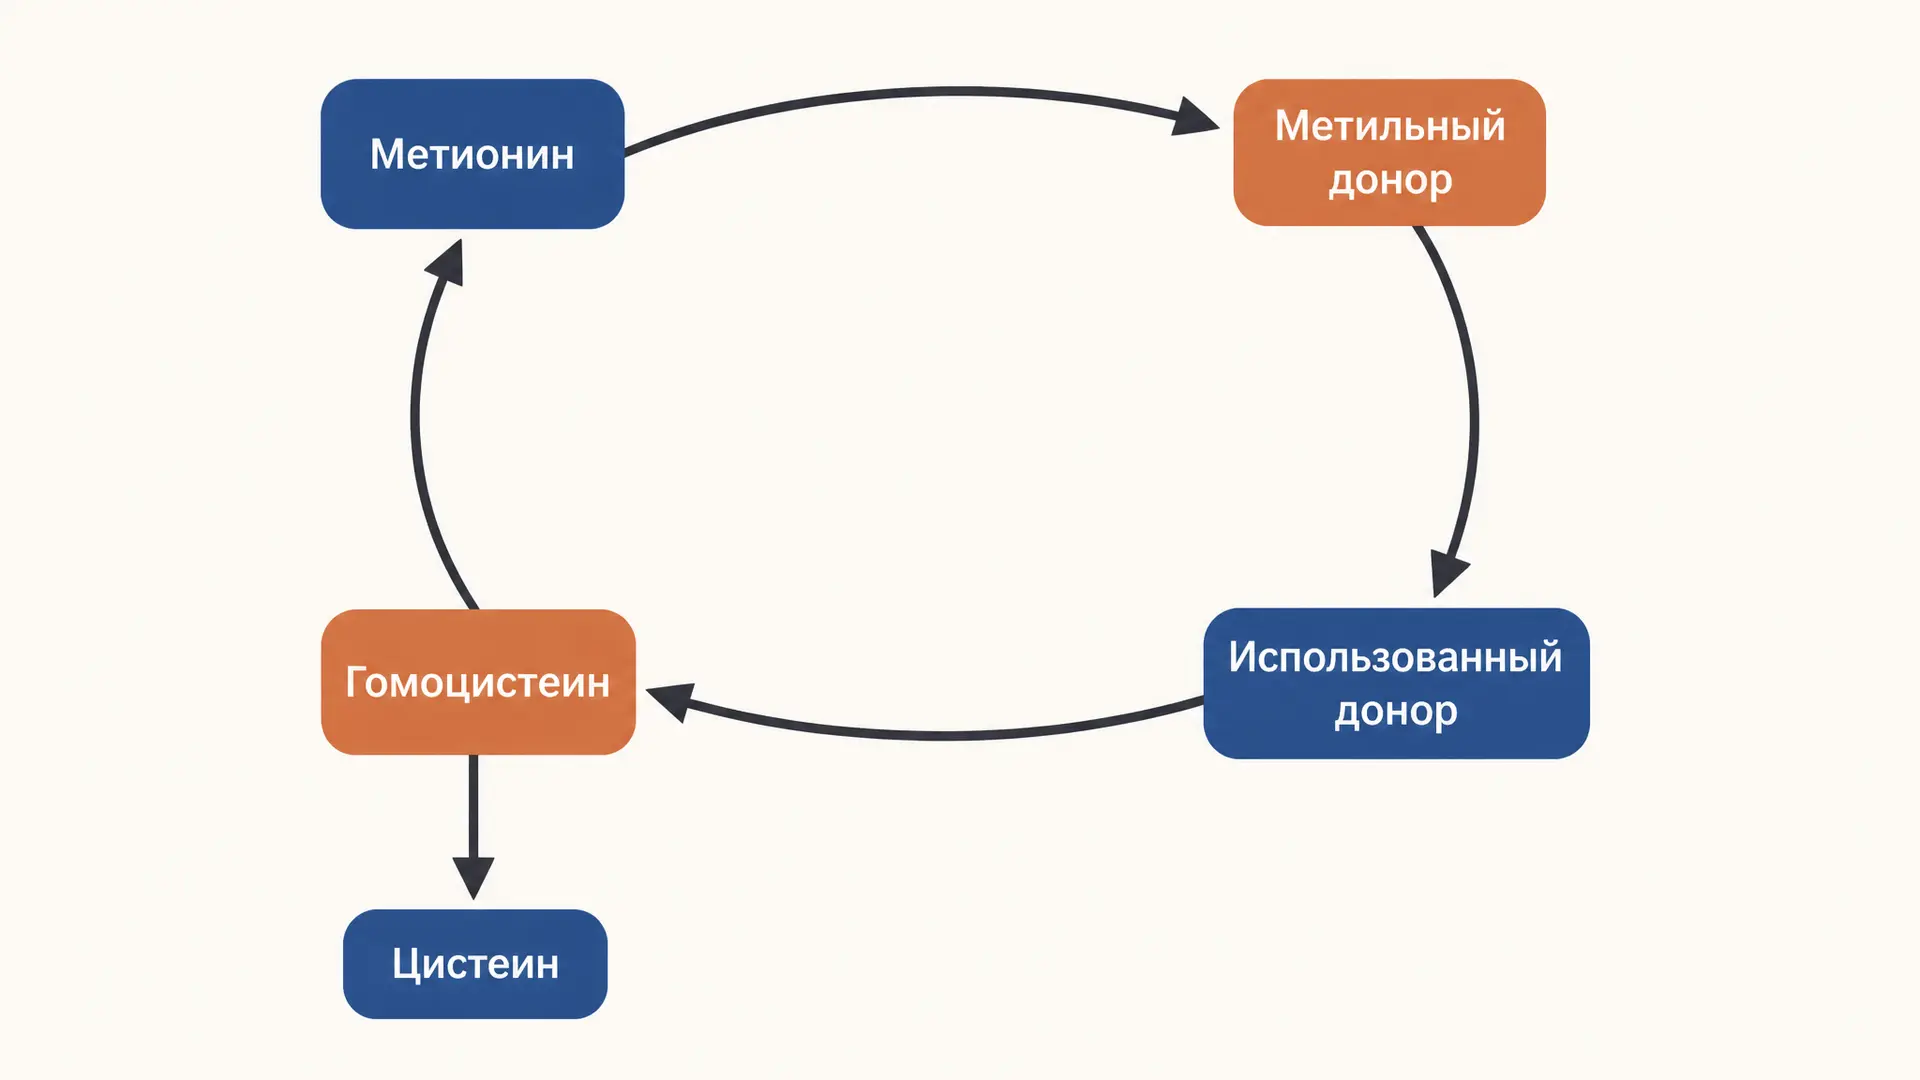
Метионин - незаменимая серосодержащая аминокислота, но в обмене он важен не только как звено белка. Клетка активирует метионин и получает S-аденозилметионин, или SAM: это донор метильных групп для множества реакций. После отдачи метила путь неизбежно приходит к гомоцистеину. Здесь развилка: вернуть метионин в цикл или вывести серу в синтез цистеина. Такая карта связывает коферменты, эпигенетику и наследственные ферментные блоки, но не является схемой самодиагностики.
Полезно смотреть на маршрут как на учёт двух ресурсов. Метиониновый цикл сохраняет возможность получать активированный метильный донор, а транссульфурирование направляет серу к новым соединениям. Поэтому одна и та же исходная аминокислота связывает синтез малых молекул, регуляцию генов и обмен антиоксидантной защиты. На экзамене обычно требуют названия промежуточных веществ и кофакторов; в клинической практике к этой схеме добавляют анализы, симптомы и поиск причины. Эти уровни ответа нельзя смешивать.
От метионина к активированному донору
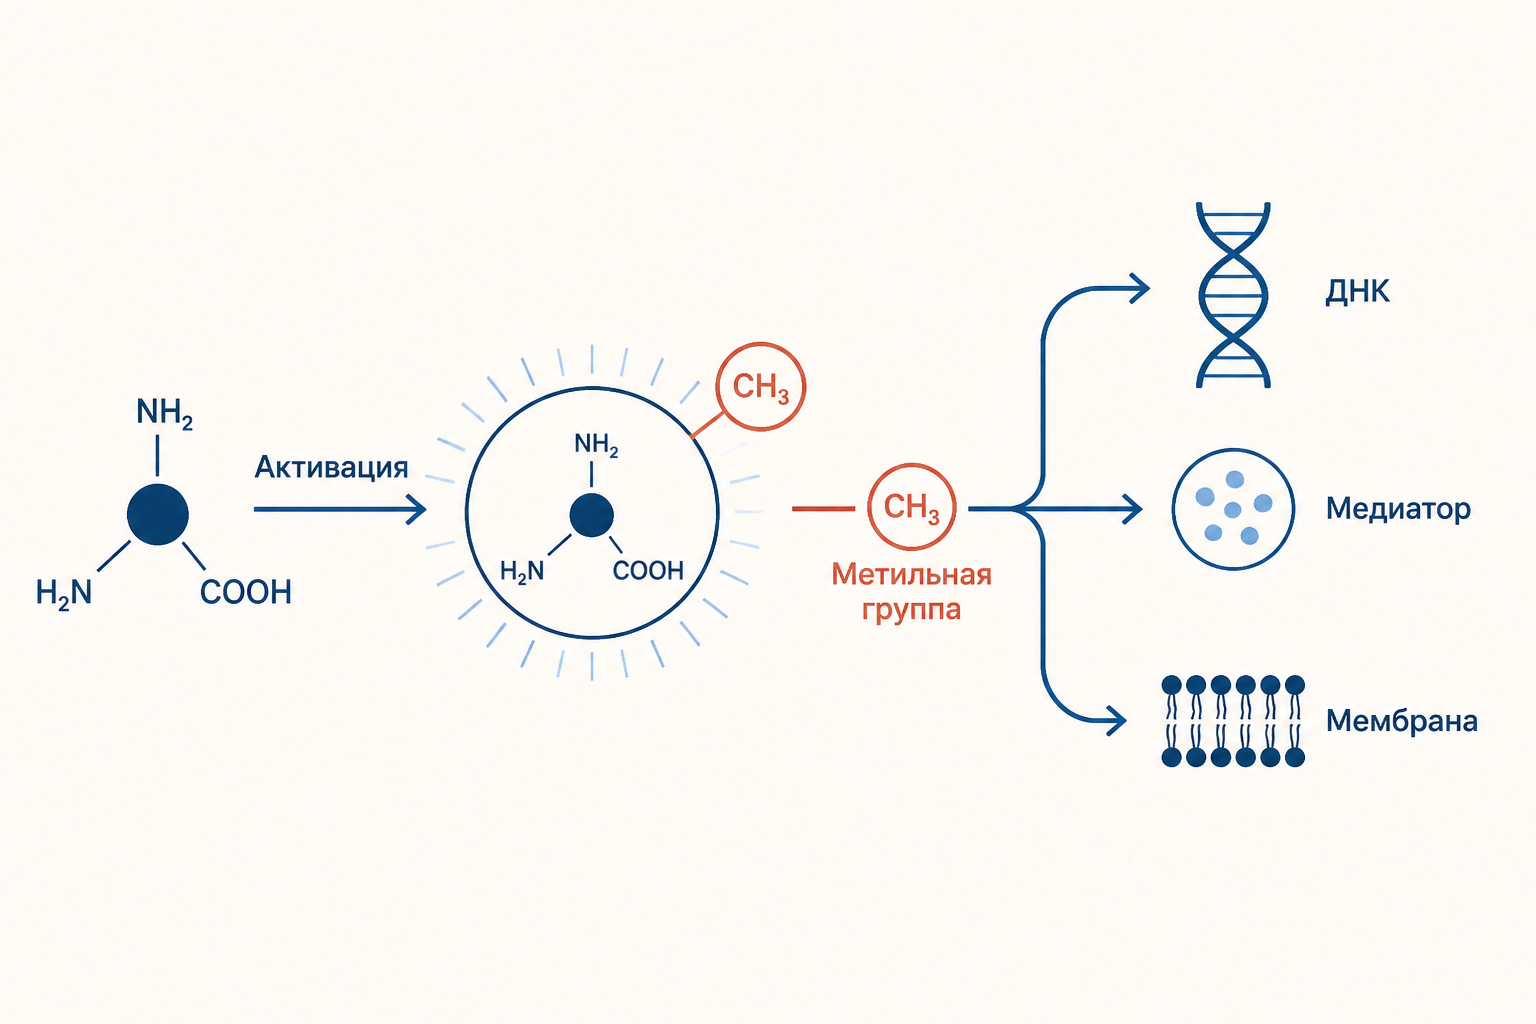
Первый шаг выполняет метионинаденозилтрансфераза: она соединяет метионин с АТФ и образует SAM. В этой реакции используется аденозильный фрагмент АТФ, а не просто его энергия. У атома серы возникает положительный заряд; поэтому метильная группа становится пригодной для переноса на другой субстрат. В учебной записи достаточно видеть направление:
SAM называют универсальным метильным донором не потому, что он метилирует всё сам, а потому, что его используют многочисленные метилтрансферазы. Это хороший пример различия между субстратом и ферментом: молекула переносит группу, а специфичность задаёт белок. Общие принципы работы таких помощников ферментов полезно повторить в статье о коферментах и кофакторах.
Куда SAM отдаёт метильную группу
Метильные группы SAM расходуются в разных химических контекстах. В синтезе креатина одна из реакций использует SAM; затем креатин участвует в буферной системе фосфагена, которую отдельно разбирает материал о креатинфосфатном пути ресинтеза АТФ. В мозговом веществе надпочечников метилирование норадреналина участвует в образовании адреналина. В печени метильные переносы участвуют в образовании фосфатидилхолина из фосфатидилэтаноламина.
Ещё одна важная группа реакций - метилирование нуклеиновых кислот. Например, ДНК-метилтрансферазы переносят метил на цитозин; это одна из химических основ регуляции экспрессии, а не изменение последовательности ДНК. Конкретно метилирование CpG и работа DNMT разобраны в статье о метилировании CpG-островков. Во всех этих случаях SAM превращается в S-аденозилгомоцистеин, или SAH.
Важно не перепутать SAM и SAH. Первый - исходный активированный донор; второй появляется после переноса и при накоплении способен тормозить ряд метилтрансфераз. Поэтому «высокий SAM» и «высокий SAH» не означают одно и то же для метилирования. SAH-гидролаза расщепляет SAH до аденозина и гомоцистеина, переводя путь к следующей развилке. Последовательность SAM → SAH → гомоцистеин подтверждается обзором обмена серосодержащих аминокислот в NCBI Bookshelf.
У цикла есть ещё регуляторный смысл. Метильные переносы и образование цистеина конкурируют за общий узел гомоцистеина, поэтому клетка должна соотносить сохранение метионина с оттоком серы. Это не механический переключатель «один витамин - одна стрелка»: активность ферментов, доступность субстратов и тканевый контекст меняют поток. На учебной схеме достаточно показать две ветви, но в реальной биохимии их связь объясняет, почему отдельный анализ нельзя трактовать в отрыве от других показателей.
Возврат в цикл: реметилирование гомоцистеина
Один из путей для гомоцистеина - снова стать метионином. В реакции метионинсинтазы метильную группу поставляет 5-метилтетрагидрофолат, а коферментной формой витамина B12 служит метилкобаламин. Смысл стрелки такой: углеродный фрагмент из фолатного обмена возвращает гомоцистеину метильную группу, и получается метионин. Это не «превращение B12 в метионин» и не прямой перенос метила с любого фолата.
Витамин B12 действительно нужен метионинсинтазе; при его дефиците концентрация гомоцистеина может повышаться, но один этот показатель не устанавливает причину. NIH прямо называет гомоцистеин одним из маркеров статуса B12, а не самостоятельным диагнозом в справочнике для специалистов. Для схемы важно различать три роли: 5-метил-ТГФ - донор метильной группы, метилкобаламин - кофермент, метионинсинтаза - фермент.
Выход из цикла: транссульфурирование в цистеин
Вторая судьба гомоцистеина - транссульфурирование. Цистатионин-бета-синтаза соединяет его с серином, образуя цистатионин; далее цистатионин-гамма-лиаза даёт цистеин и другие продукты. Обе реакции зависят от пиридоксальфосфата, коферментной формы витамина B6. Здесь сера, пришедшая с метионином, попадает в цистеин; ветвь уже не возвращает метионин в цикл.
Цистеин нужен не только как аминокислота для белков. Из него синтезируется, в частности, глутатион - внутриклеточное соединение с тиоловой группой, участвующее в поддержании окислительно-восстановительного равновесия. Поэтому транссульфурирование удобно понимать как выход серы из метильного цикла к другим серосодержащим молекулам. Однако стрелка к цистеину не означает, что всякий метионин обязательно проходит этот путь: часть молекул продолжает циркулировать через реметилирование.
ПЛФ в этой ветви работает иначе, чем в аминотрансферазах, но химически это тот же универсальный помощник реакций аминокислот. Чтобы не сводить витамин B6 только к одной реакции, сравните с разбором пиридоксальфосфата в трансаминировании. Слово «транссульфурирование» не означает перенос сульфат-иона: речь идёт о перестройке серосодержащих метаболитов через цистатионин.
Почему повышается гомоцистеин
Гипергомоцистеинемия - лабораторное описание повышенного гомоцистеина в крови, а не название одного заболевания. Она возможна при нарушениях реметилирования, дефиците B12 или фолата, снижении функции почек, влиянии лекарств и врождённых дефектах ферментов. Поэтому фраза «гомоцистеин высокий, значит не хватает B6» биохимически неверна: сначала нужно отличить ветви и причины.
Повышенный гомоцистеин связывают с сосудистым риском, но из такой ассоциации нельзя выводить, что любому человеку поможет самостоятельный приём витаминов. Причины и тактика зависят от клинической ситуации; руководство по CBS-дефициту отдельно перечисляет разные генетические, нутритивные и почечные причины повышения показателя. В статье это повод запомнить метаболическую логику, а не назначать лечение. Клиническое руководство по CBS-дефициту описывает и эту неоднородность причин, и риск тромбоэмболических осложнений при заболевании.
Гомоцистинурия и ферментный блок CBS
Классическая гомоцистинурия чаще всего связана с дефицитом цистатионин-бета-синтазы, CBS. Если первая реакция транссульфурирования ограничена, гомоцистеин не направляется нормально в цистатионин; часть его возвращается к метионину. Поэтому для CBS-дефицита характерна комбинация повышенного общего гомоцистеина и часто повышенного метионина, но конкретную интерпретацию выполняют специализированные лаборатории и врачи.
Название «гомоцистинурия» исторически относится к обнаружению избытка гомоцистина в моче; сейчас для оценки часто используют общий гомоцистеин в плазме. Не всякая гомоцистинурия - CBS-дефицит: нарушения метаболизма кобаламина и реметилирования тоже затрагивают этот узел. Генетическую классификацию и различие причин аккуратно формулирует GeneReviews о гомоцистинурии вследствие дефицита CBS.
Как нарисовать цикл на экзамене
Начните с кольца из четырёх подписей: метионин → SAM → SAH → гомоцистеин → метионин. Над первой стрелкой отметьте АТФ и метионинаденозилтрансферазу. Над переходом SAM → SAH поставьте «метилтрансфераза, перенос CH3». Возврат от гомоцистеина к метионину подпишите «метионинсинтаза, B12, 5-метил-ТГФ». Затем от гомоцистеина отведите отдельную ветвь: серин + CBS, ПЛФ → цистатионин → цистеин.
Эта запись сразу предотвращает три путаницы: SAM не равен метионину, SAH не является донором метила, а B6 нужен не для реметилирования, а для ферментов транссульфурирования. Если в задаче спрашивают о метильной метке ДНК, проведите стрелку от SAM; если о синтезе цистеина - от гомоцистеина через CBS. Схема отражает метаболические связи, но не заменяет анализы или клинические решения.
Частые ошибки
- Считать метионин прямым донором метила. Донор в большинстве таких реакций - активированная форма SAM.
- Менять местами SAM и SAH. SAM стоит до переноса метила, SAH образуется после него.
- Приписывать B6 реметилированию. Для метионинсинтазы важны 5-метил-ТГФ и метилкобаламин; ПЛФ нужен в транссульфурировании.
- Называть любой высокий гомоцистеин гомоцистинурией CBS-типа. Причин много, и лабораторная цифра сама по себе не устанавливает диагноз.
FAQ
Зачем клетке снова превращать гомоцистеин в метионин?
Реметилирование восстанавливает метионин, из которого вновь может образоваться SAM. Так поддерживается цикл активированных метильных групп.
Почему SAH важен, если он уже отдал метильную группу?
Он показывает, что перенос состоялся; при накоплении SAH способен подавлять часть метилтрансфераз, поэтому его быстро направляют к гомоцистеину.
Можно ли по гомоцистеину самостоятельно определить дефицит витамина?
Нет. Показатель зависит от нескольких путей и состояний; его оценивают вместе с другими данными и клиническим контекстом.
Коротко
Метионин активируется до SAM, который отдаёт метильные группы и становится SAH, а затем гомоцистеином. Гомоцистеин либо реметилируется в метионин с участием 5-метил-ТГФ и B12, либо через B6-зависимое транссульфурирование идёт к цистеину. Положение блока объясняет различие между повышением гомоцистеина вообще и классической гомоцистинурией при дефиците CBS.
Читайте также
Пиридоксальфосфат: витамин B6 в трансаминировании
Роль пиридоксальфосфата (витамин B6) в трансаминировании: механизм электронной ловушки, альдимин и кетимин, пинг-понг кинетика, ферменты АЛТ и АСТ, частые ошибки.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.