Кальмодулин: кальциевый переключатель клетки
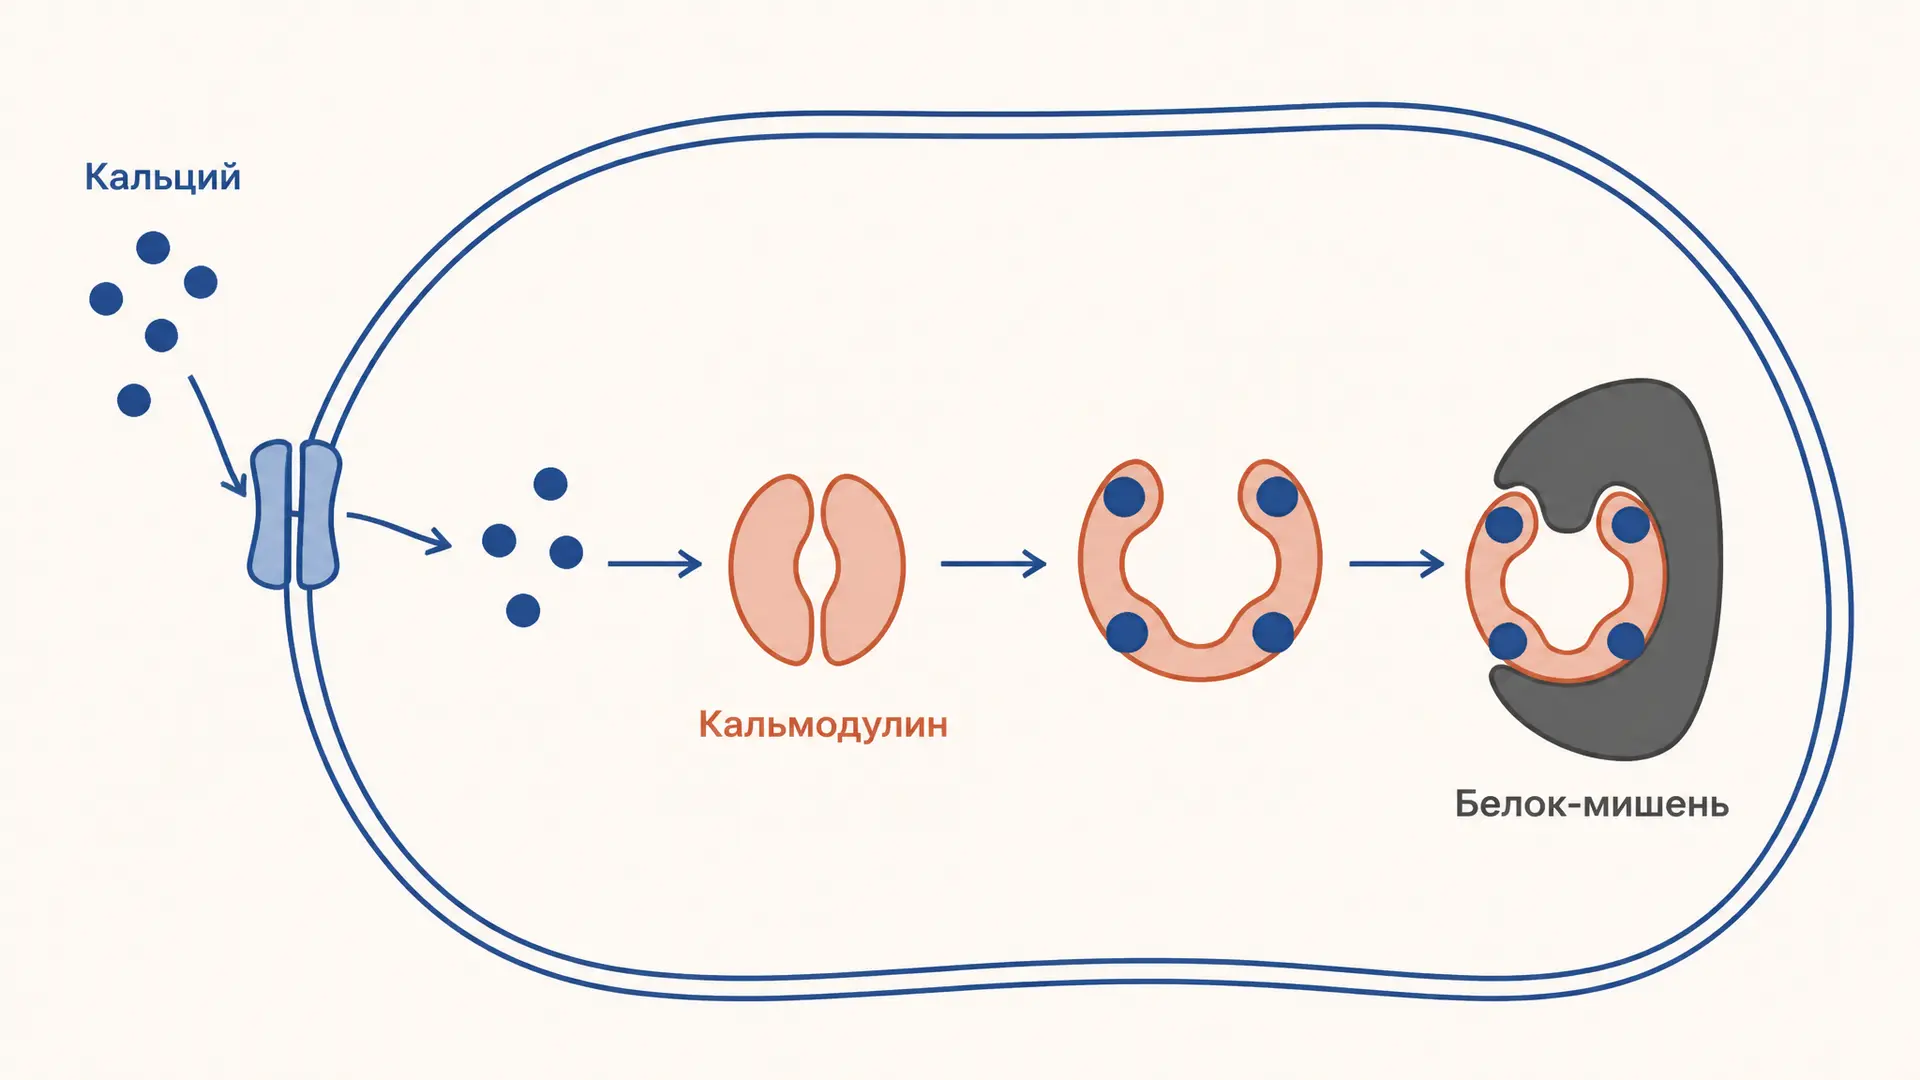
Кальмодулин, или CaM, помогает клетке превратить краткое изменение концентрации свободного кальция в конкретное действие. Сам ион слишком мал, чтобы «сказать» ферменту, что именно делать. Его считывает белок-сенсор: он связывает кальций, меняет форму и находит подходящую мишень. Так одна и та же кальциевая вспышка может ускорить фосфорилирование, изменить активность фосфатазы, включить синтез оксида азота или запустить сокращение гладкой мышцы.
Кальций как короткий внутриклеточный сигнал
В покоящейся клетке концентрация свободного цитозольного обычно поддерживается примерно около моль/л. Насосы и обменники выводят ион наружу, а эндоплазматический или саркоплазматический ретикулум удерживает запас внутри себя. После открытия каналов или высвобождения из внутриклеточного депо уровень свободного кальция локально и временно возрастает. Важно именно слово «свободного»: большая часть общего кальция клетки связана, и не вся она доступна сенсорам.
Поэтому сигнал кодируется не только высотой подъёма, но и его длительностью, частотой и местом возникновения. В нейроне повторяющиеся кальциевые импульсы могут быть связаны с долговременной потенциацией, а в мышечном волокне быстрый выход кальция запускает иной аппарат. Кальмодулин удобен как универсальный декодер: он присутствует во множестве клеток и может отвечать на кратковременные изменения Ca²⁺, не становясь самостоятельным ферментом.
Строение: 148 аминокислот и четыре EF-hand
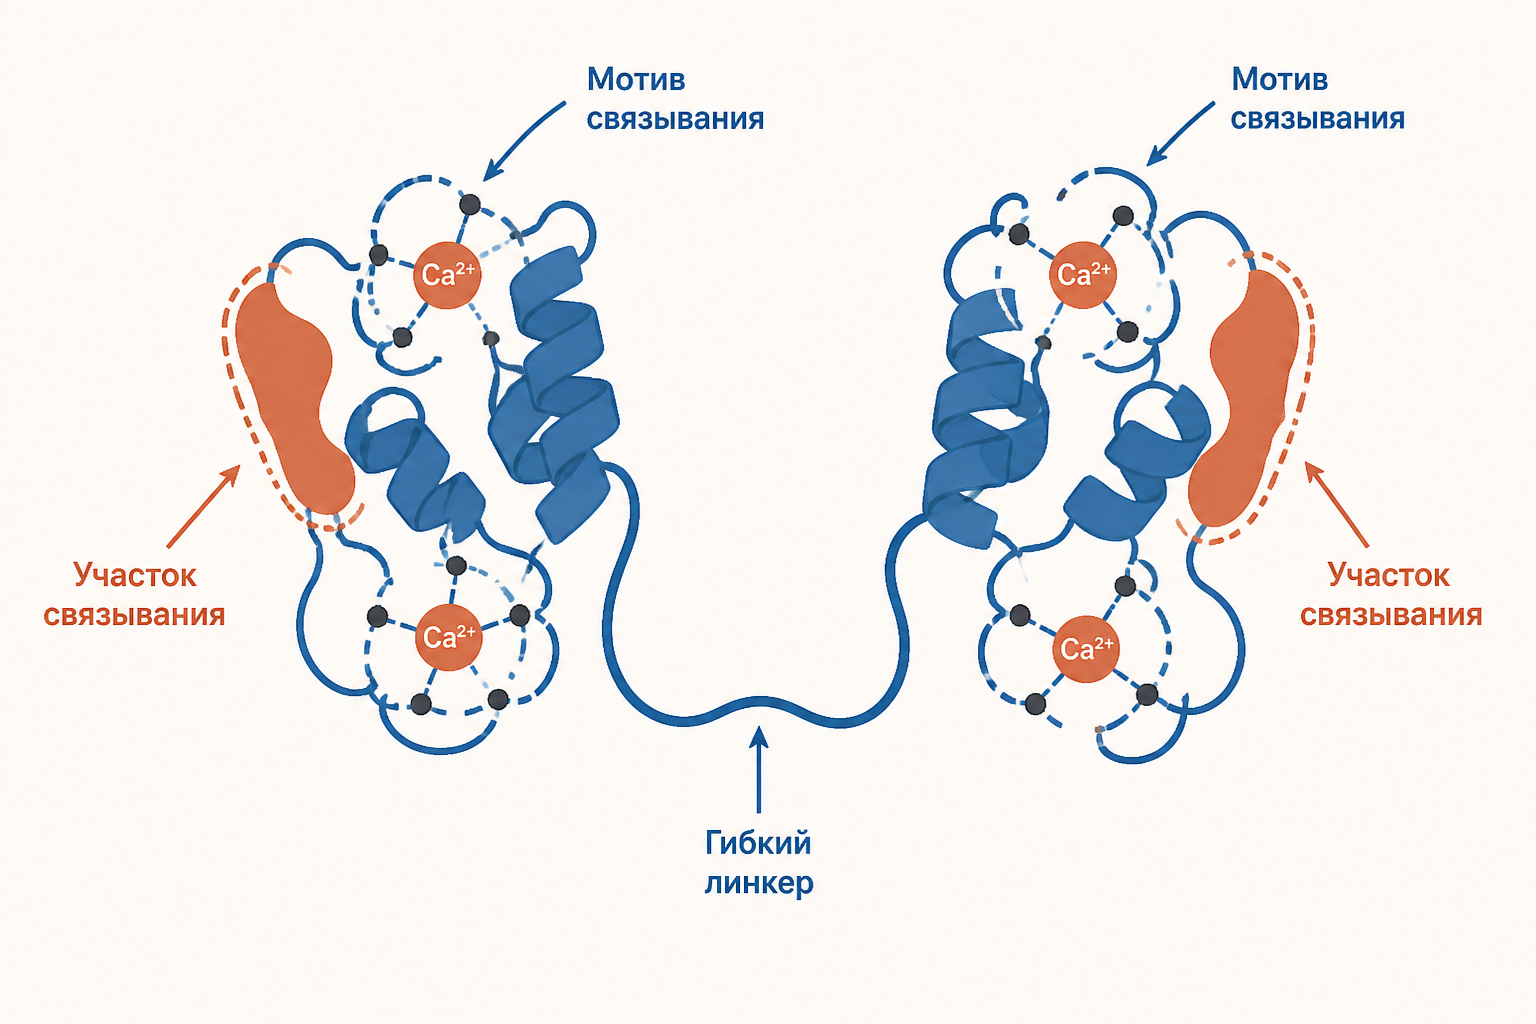
Кальмодулин человека - небольшой кислый белок из 148 аминокислот. В нём четыре кальций-связывающих мотива EF-hand: по два в N-концевой и C-концевой долях. Каждый мотив имеет архитектуру «спираль-петля-спираль»; кислородсодержащие группы аминокислот петли координируют . Две доли соединяет подвижный центральный линкер, поэтому белок способен изгибаться и охватывать разные белковые участки.
EF-hand обычно работают парами. Связывание кальция перестраивает взаимное положение спиралей в каждой доле: из более закрытого состояния открывается гидрофобная поверхность. Именно она распознаёт короткие амфифильные участки белков-мишеней. Структурные исследования показывают, что кальмодулин не просто «приклеивается» к партнёру: его две доли могут обхватывать связывающий фрагмент с разных сторон. Обзор конформационных состояний CaM описывает этот переход как открытие EF-hand-доменов и экспонирование гидрофобных площадок в экспериментальных работах по структуре белка.
Схема EF-hand не означает, что все кальций-связывающие белки действуют одинаково. У кальмодулина конформационный сдвиг делает доступными поверхности для партнёров, тогда как белок-буфер прежде всего влияет на форму и длительность кальциевого импульса. Сопоставление кальмодулина с другими EF-hand-белками показывает, что именно различия в перестройке домена определяют роль сенсора или модулятора сигнала в обзоре семейства EF-hand. Поэтому строение нужно связывать не с запоминанием одного термина, а с задачей белка: распознать кальций и передать информацию конкретной мишени.
От связывания иона к выбору мишени
Упрощённая цепочка выглядит так:
Но у этой схемы нет единственного универсального порога. Разные EF-hand и разные партнёры меняют аффинность друг друга; C-концевая и N-концевая доли отвечают не совершенно одинаково. Поэтому нельзя корректно утверждать, что CaM всегда ждёт ровно четыре иона и лишь затем включается. В конкретном микродомене часть комплексов может уже быть связана с мишенью, а сама мишень меняет равновесие кальциевого связывания. Это свойство помогает белку различать паттерны сигнала, а не только фиксировать максимальную концентрацию.
В отличие от буферных белков кальмодулин прежде всего сенсор и преобразователь сигнала. Он связывает десятки партнёров, но эффект определяется не названием CaM, а типом клетки, локализацией и набором доступных мишеней. В частности, Ca²⁺/CaM регулирует ионные каналы, ферменты и элементы транскрипционного ответа.
CaM-киназы, фосфодиэстераза и кальциневрин
Кальций-кальмодулин-зависимые протеинкиназы, или CaM-киназы, получают от комплекса Ca²⁺/CaM сигнал к фосфорилированию субстратов. У CaMKII автотормозящий участок в покое закрывает каталитическую область; связывание Ca²⁺/CaM снимает это торможение. В нейронах CaMKII участвует в перестройке синаптических ответов, что связывает её с механизмами пластичности, но не означает, что всякая кальциевая вспышка автоматически создаёт память.
Классическая мишень, с которой начинали исследование кальмодулина, - циклическая нуклеотид-фосфодиэстераза. Такие ферменты завершают сигнал циклических нуклеотидов, расщепляя их; в статье об аденилатциклазе и цАМФ разобран контекст cAMP и PDE. Кальмодулин также активирует кальциневрин, фосфатазу Ser/Thr-типа. Здесь результат обратен действию киназы по химической операции: фосфатаза снимает фосфат с белка. В иммунных клетках через кальциневрин регулируется NFAT, но детали ответа зависят от рецепторного сигнала и времени его действия.
NO-синтаза: пример зависимости от контекста
Некоторые изоформы NO-синтазы используют Ca²⁺/CaM как обязательный регуляторный элемент. Комплекс связывается с NOS и облегчает перенос электронов между её доменами, необходимый для синтеза оксида азота из L-аргинина. Для эндотелиальной NOS это связывает рост внутриклеточного кальция с образованием NO и последующим влиянием на тонус сосуда. Однако это не повод переносить механизм без оговорок на все клетки: индуцибельная NOS отличается способом регуляции и часто сохраняет прочно связанный кальмодулин.
Такое разнообразие - сильная сторона сенсора. Один белок сообщает «кальций вырос», а белок-мишень и клеточный контекст определяют, будет ли ответом фосфорилирование, дефосфорилирование, расщепление циклического нуклеотида или образование NO.
Гладкая мышца: кальмодулин включает MLCK
В гладких мышцах кальмодулин особенно нагляден. Ca²⁺/CaM активирует киназу лёгких цепей миозина, MLCK. Она фосфорилирует регуляторную лёгкую цепь миозина, после чего миозин эффективнее взаимодействует с актином и развивается сокращение. Последовательность не подменяет энергетику: для работы поперечных мостиков по-прежнему нужен АТФ; подробно сам цикл разобран в материале об актомиозиновом сокращении.
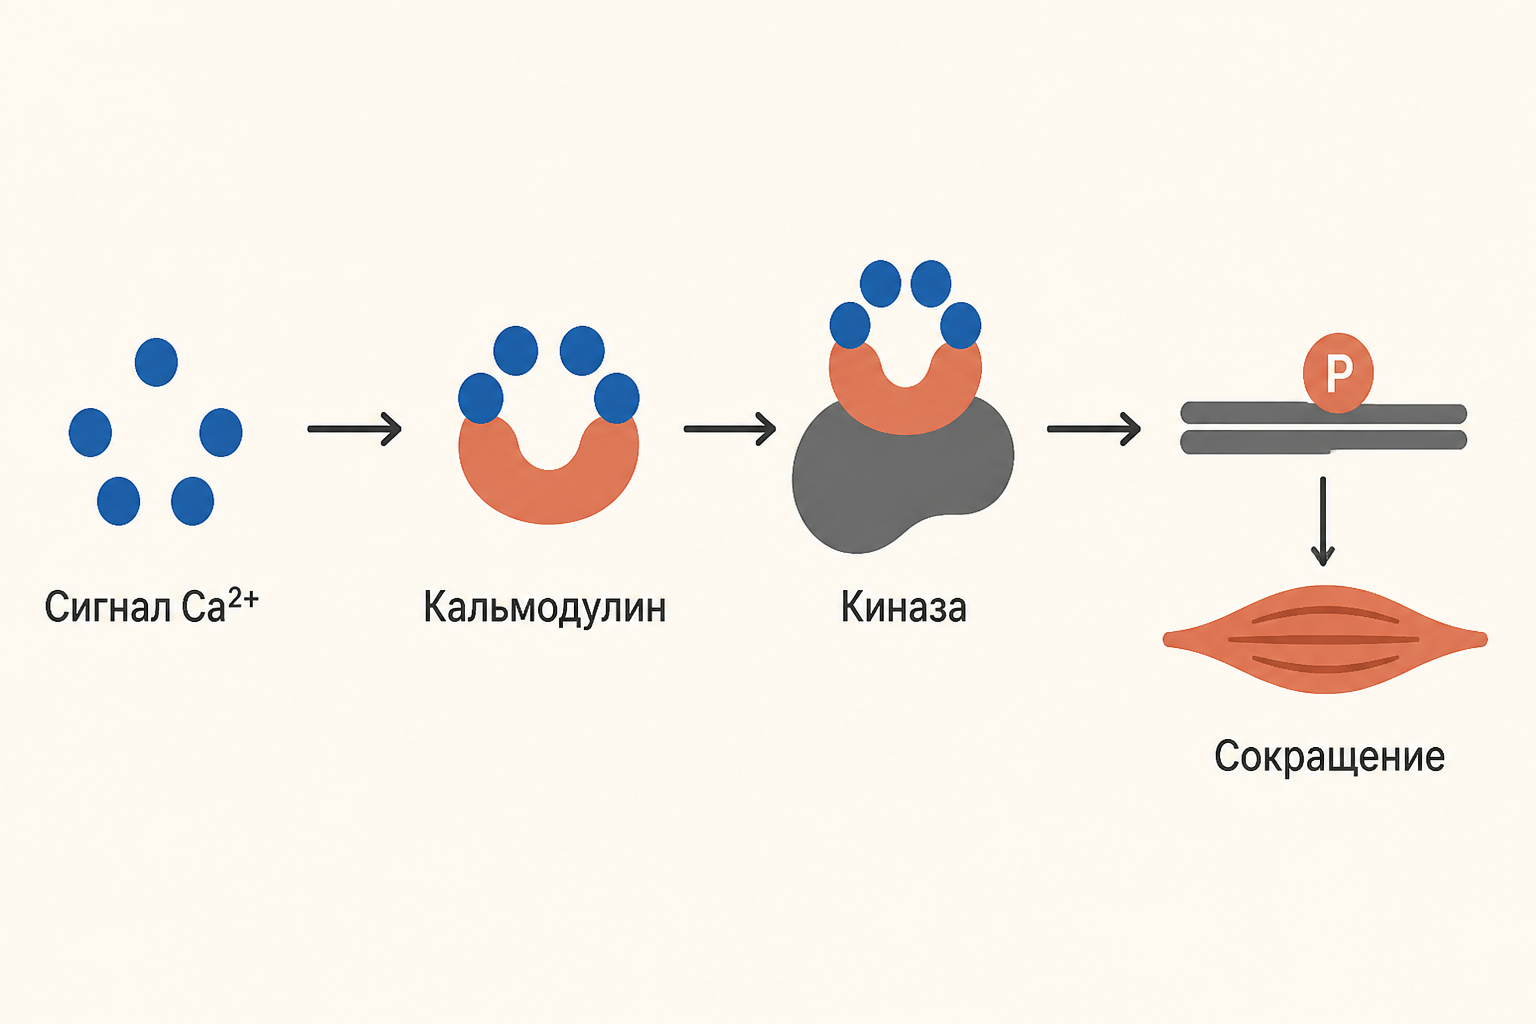
Путь можно записать как:
У гладкой мышцы нет такого же тропонинового комплекса на тонкой нити, как у скелетной и сердечной. Это и объясняет ключевое различие механизмов: CaM регулирует миозиновую сторону через MLCK, тогда как тропонин C вместе с тропомиозином открывает актиновые участки. Не стоит смешивать это с системной регуляцией кальция крови, которую обеспечивают гормоны и органы-мишени: это другой масштаб, описанный в статье о гормональной регуляции обмена кальция и фосфора.
Кальмодулин и тропонин C: сходство без тождества
Оба белка принадлежат к семейству EF-hand и меняют конформацию после связывания Ca²⁺. У обоих есть парные мотивы и гидрофобные поверхности для взаимодействия с партнёрами. Но тропонин C входит в устойчивый трёхкомпонентный комплекс тонкой нити и действует локально в саркомере. Кальмодулин - мобильный регулятор многих белков в разных тканях. Сравнение полезно для экзамена, но ответ «это один и тот же белок» неверен.
В поперечно-полосатой мышце Ca²⁺-связывание TnC смещает регуляторный комплекс и разрешает контакт актина с миозином; подробности этого переключателя есть в статье о кальции и тропонине. CaM же чаще связывает отдельный фермент или канал и меняет его активность. Общий эволюционный мотив не отменяет различия их мишеней и физиологических ролей.
Частые ошибки
- «Кальмодулин создаёт кальциевый сигнал». Он его считывает; источниками сигнала служат каналы и внутриклеточные депо, а окончание обеспечивают насосы, обменники и буферы.
- «Четыре EF-hand всегда заняты одновременно». Связывание зависит от локальной концентрации Ca²⁺, свойств долей и присутствия белка-мишени.
- «Кальмодулин и тропонин C взаимозаменяемы». Они родственны по мотивам, но встроены в разные белковые системы и запускают разные механизмы.
- «CaM-киназа и кальциневрин делают одно и то же». Первая фосфорилирует субстраты, второй снимает фосфат; итог зависит от конкретной мишени.
FAQ
Сколько ионов кальция может связать кальмодулин? Четыре канонических EF-hand дают четыре основных участка, но степень их заполнения и функциональный эффект зависят от условий и партнёра.
Почему кальмодулин называют универсальным сенсором? Он распространён в клетках и взаимодействует со многими белками, однако универсальность относится к приёму сигнала, а не к одному и тому же ответу во всех тканях.
Связан ли кальмодулин с сокращением скелетной мышцы? Главный регулятор тонкой нити там - тропонин C. Кальмодулин особенно важен для Ca²⁺-зависимой активации MLCK в гладкой мышце и для многих немышечных процессов.
Коротко
Кальмодулин - белок из 148 аминокислот с четырьмя мотивами EF-hand. Рост свободного Ca²⁺ меняет его конформацию, открывает поверхности связывания и позволяет регулировать мишени: CaM-киназы, фосфодиэстеразы, кальциневрин, NO-синтазы и MLCK. Его родство с тропонином C объясняет общий принцип кальциевого переключателя, но не делает их функциями одинаковыми.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
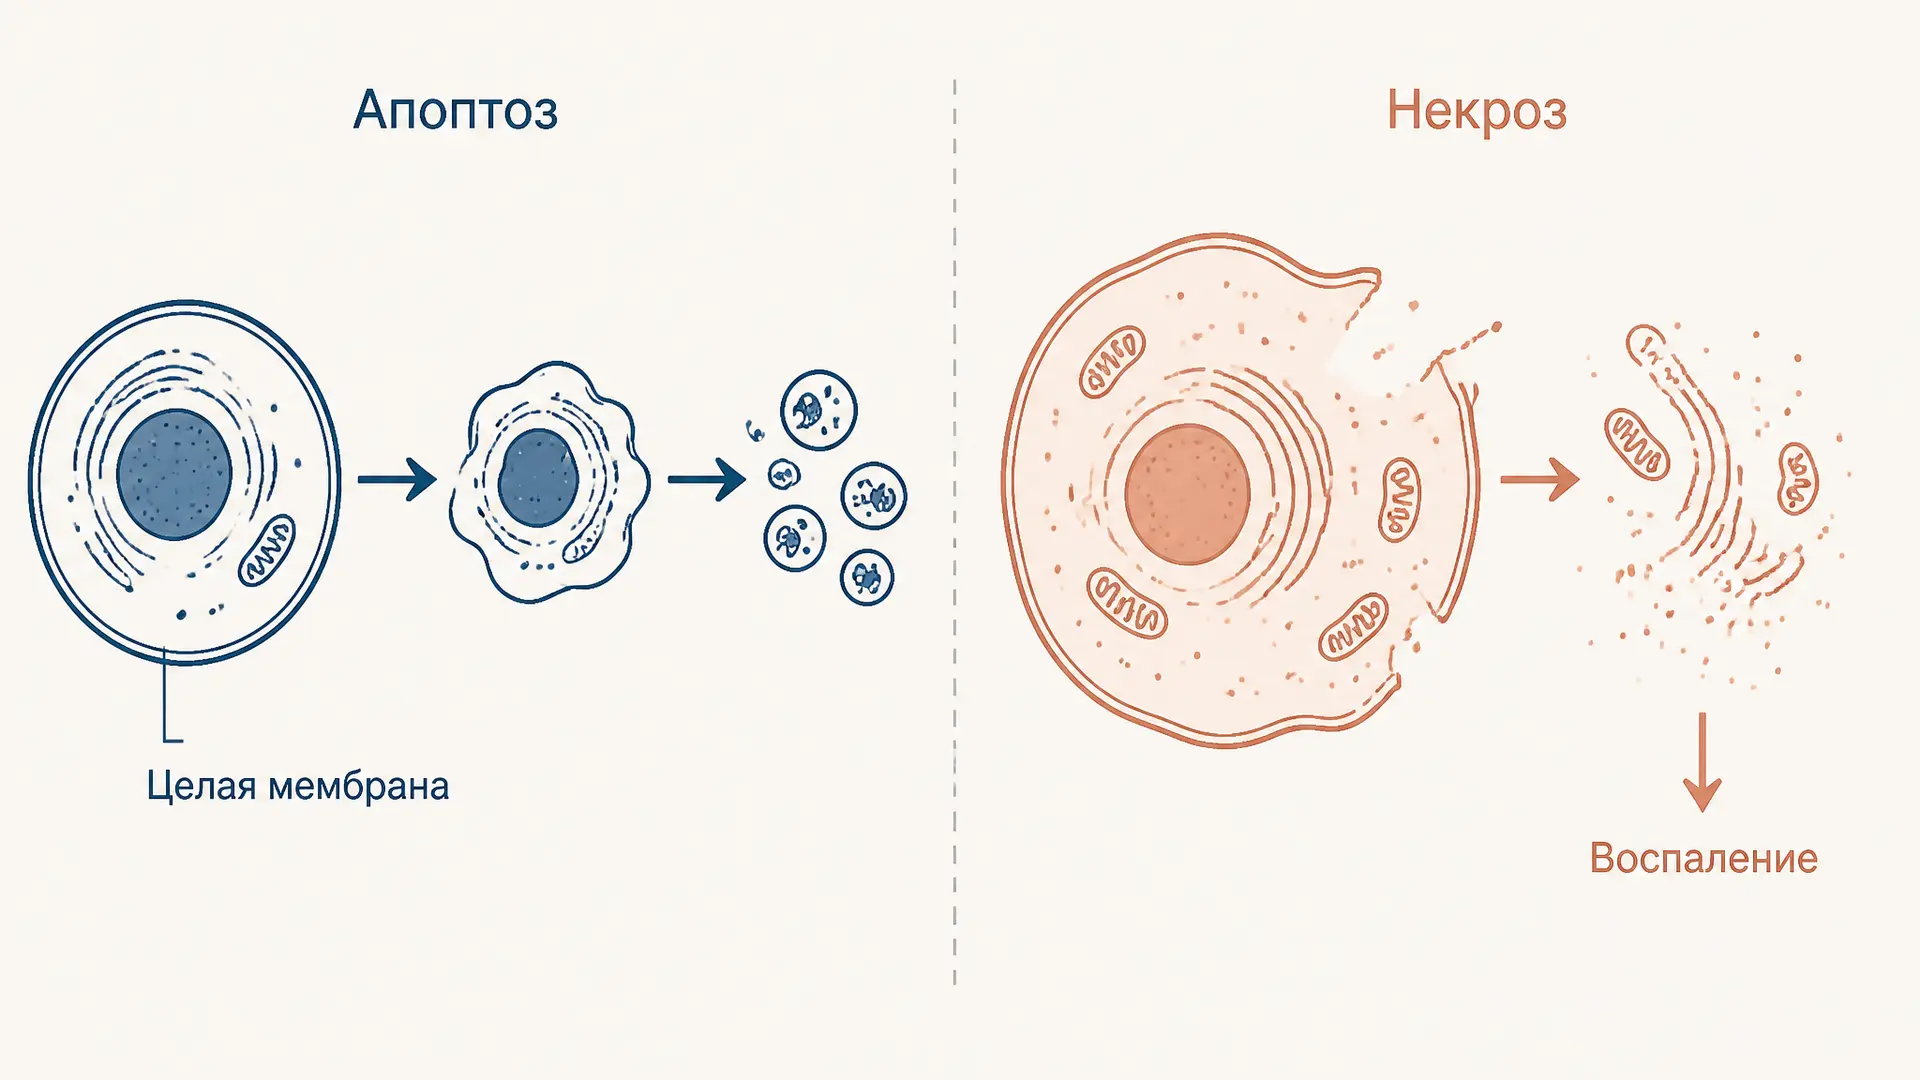
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
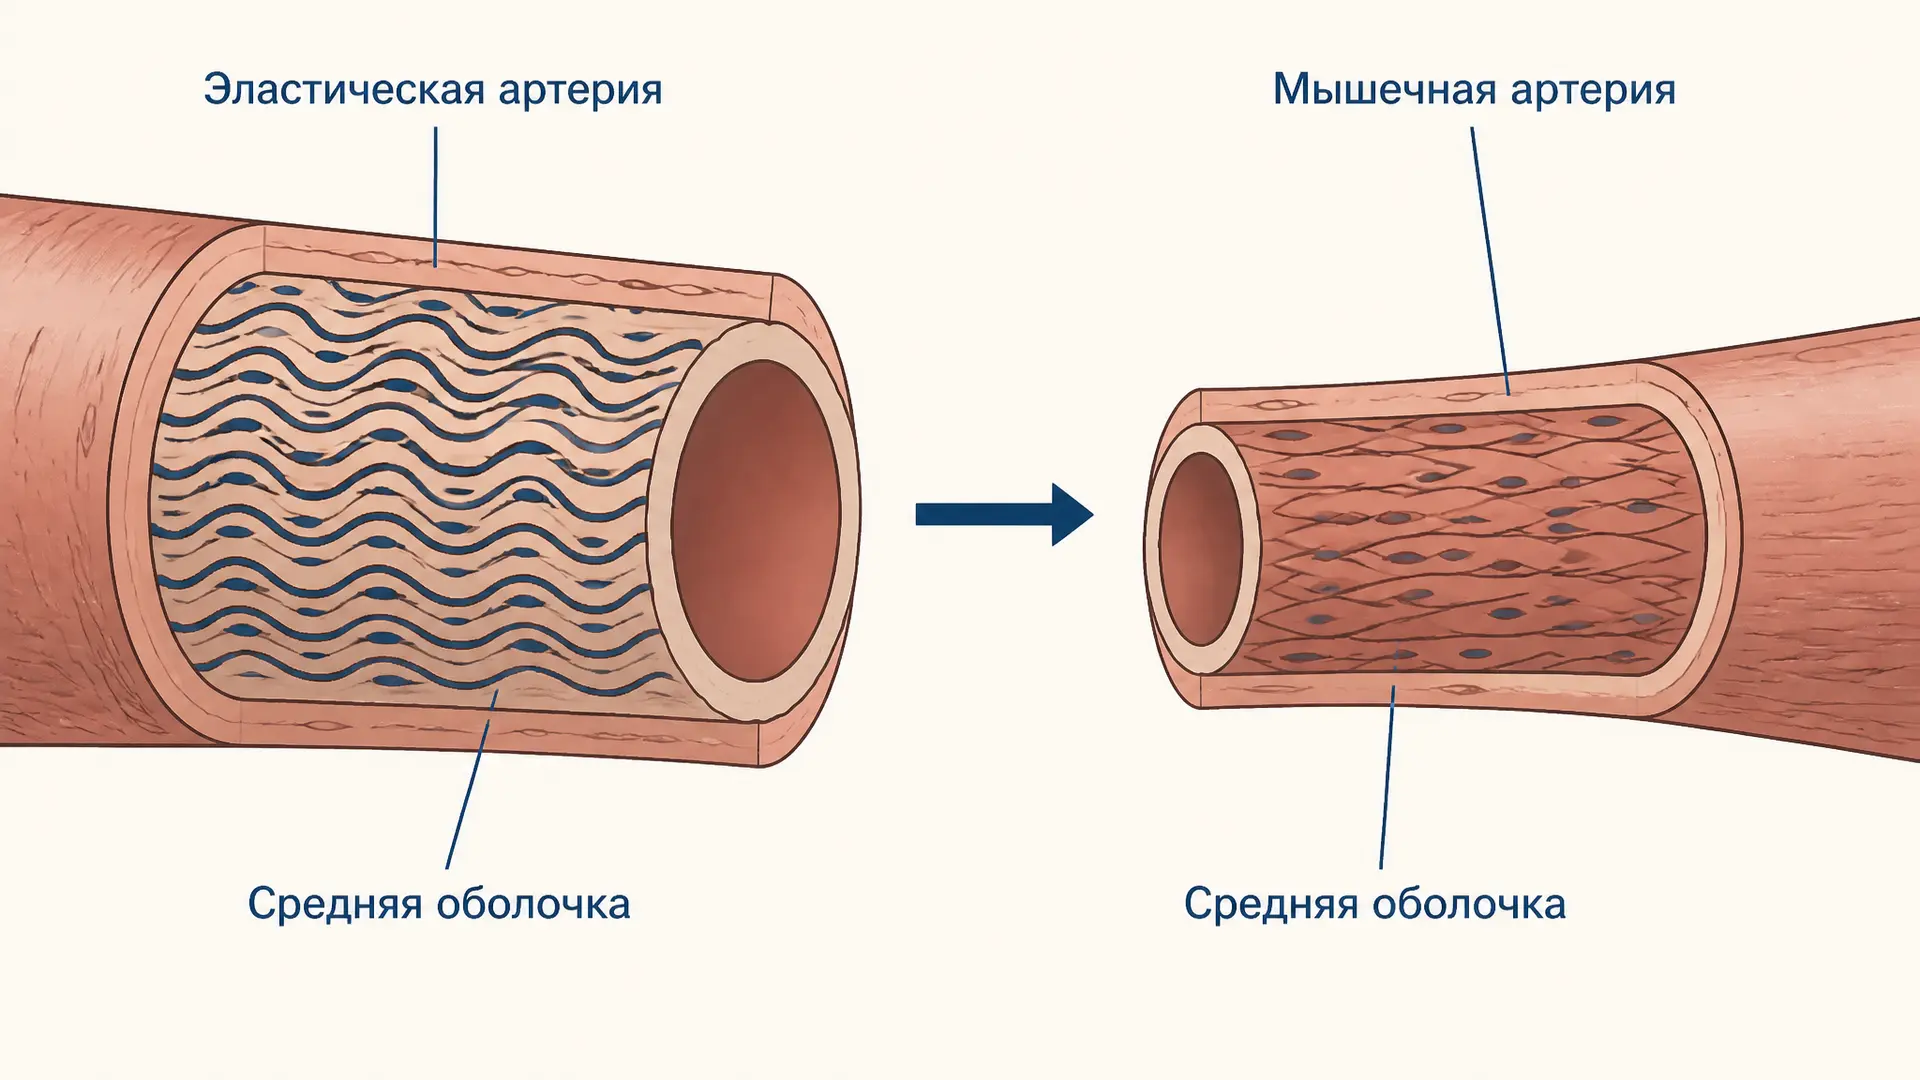
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.