Долговременная потенциация LTP: как крепнет синапс
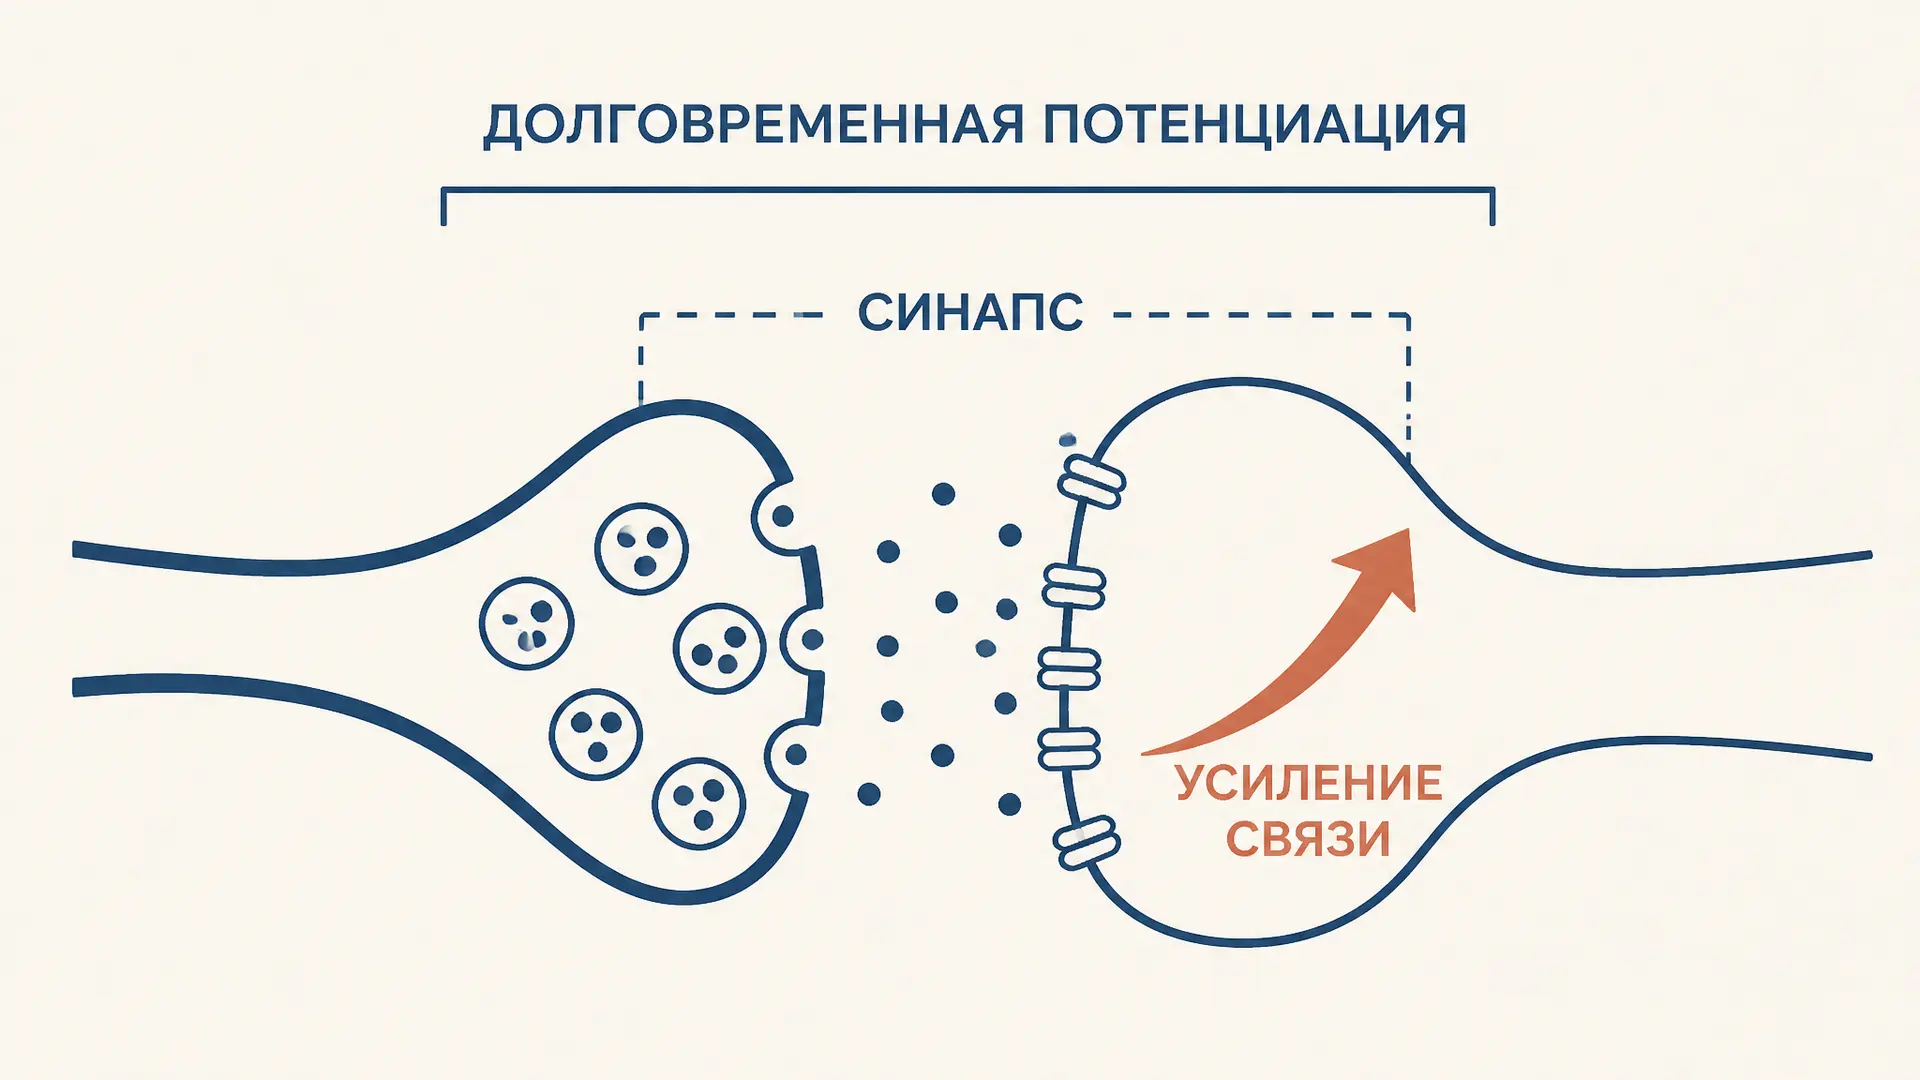
Долговременная потенциация, или LTP, - устойчивое усиление передачи в синапсе после определённого опыта его активации. Это не готовая «запись воспоминания» и не рост силы всего мозга: изменяется эффективность конкретных связей, которые получили подходящий паттерн сигналов. LTP стала одной из главных клеточных моделей обучения и памяти, потому что соединяет электрическое событие в синапсе с молекулярными и структурными изменениями, сохраняющимися от часов до более долгих сроков. Разберём классический гиппокампальный вариант и его границы.
Опыт Блисса и Лёмо
В 1973 году Тимоти Блисс и Терье Лёмо показали на зубчатой извилине гиппокампа кролика: короткая высокочастотная стимуляция входящих волокон надолго увеличивает ответ нейронов на последующие одиночные стимулы. До «тетануса» синапс отвечал одной величиной полевого потенциала, после - большей, хотя проверочный сигнал оставался тем же. Так и определяется LTP: меняется не сила раздражителя, а эффективность передачи.
Гиппокамп удобен для такого эксперимента, потому что его пути образуют узнаваемые цепи. В другой классической модели стимулируют коллатерали Шаффера, идущие от поля CA3 к пирамидным нейронам CA1. Но не следует превращать эту схему в универсальный механизм: LTP наблюдают в разных отделах мозга, а её условия и молекулярные участники различаются. Здесь речь идёт главным образом о NMDA-зависимой LTP в возбуждающем синапсе CA3–CA1.
Синапс до усиления
При обычной передаче пресинаптическое окончание выделяет глутамат. Он быстро активирует AMPA-рецепторы постсинаптической мембраны; через них проходит ток, создающий возбуждающий постсинаптический потенциал. Рядом находятся NMDA-рецепторы. Глутамат может связаться и с ними, но при мембранном потенциале покоя их канал преимущественно закрыт ионами магния.
Подробно о том, как возникает сам ВПСП, рассказывает статья про механизмы ВПСП и ТПСП. Для LTP достаточно удержать главный переход: один короткий вход обычно активирует AMPA-рецепторы, но не даёт NMDA-каналу пропустить заметный поток кальция. Сильная или согласованная активность нескольких входов меняет эту ситуацию.

NMDA-рецептор как детектор совпадений
Чтобы NMDA-рецептор проводил ионы, нужны одновременно два условия: глутамат в синаптической щели и достаточная деполяризация постсинаптической мембраны. Первое сообщает о пресинаптической активности, второе - о сильном постсинаптическом ответе, который часто складывается из нескольких почти одновременных входов. Поэтому NMDA-рецептор называют детектором совпадений.
При частой стимуляции ВПСП от AMPA-рецепторов суммируются. Мембрана деполяризуется, магниевый блок ослабевает, и через NMDA-каналы входит . Важен не просто факт входа кальция: амплитуда, длительность и локализация кальциевого сигнала запускают разные ферментные каскады. Упрощённая формула «кальций всегда означает LTP» неверна: при иных режимах активности и меньшем сигнале может развиваться долговременная депрессия, LTD.
Ранняя фаза: больше ответа на тот же сигнал
В ранней LTP кальций связывается с кальмодулином и активирует, среди прочего, CaMKII. Эта киназа меняет работу уже имеющихся AMPA-рецепторов и участвует во встраивании дополнительных AMPA-рецепторов в постсинаптическую мембрану. При следующем выбросе того же количества глутамата открывается больше каналов или они проводят эффективнее, поэтому ВПСП становится больше.

Эта логика объясняет, почему измеряют именно ответ на тестовый стимул. Синапс не обязан постоянно выделять больше медиатора; в распространённой модели CA1 значительная часть экспрессии LTP связана с постсинаптической чувствительностью. Однако вопрос о точном вкладе пре- и постсинаптических механизмов зависит от конкретного синапса и протокола, поэтому нельзя объявлять один механизм единственным для всей нервной системы.
Поздняя фаза: белки и перестройка контакта
Ранняя фаза может удерживаться ограниченное время. Для более стойкой LTP требуются синтез белка и изменения экспрессии генов. Кальциевые и вторичные сигнальные каскады активируют транскрипционные факторы, включая CREB; появляются белки, поддерживающие рецепторный состав, цитоскелет и структуру дендритного шипика. Шипик может увеличиваться, а синаптический контакт стабилизироваться.
Это не означает, что каждое воспоминание хранится в одной «укрупнившейся кнопке». Память включает сети, разные виды пластичности и работу множества областей. Статья о видах долговременной памяти разбирает уровень систем и поведения; LTP находится ниже - на уровне изменения силы конкретного соединения. Связь между ними убедительна, но не тождественна.
Три свойства LTP
Классические свойства делают LTP особенно подходящей для модели ассоциативного обучения.
- Специфичность входа. Усиливаются прежде всего активные синапсы, а не все контакты нейрона подряд.
- Кооперативность. Нескольким слабым входам легче вместе деполяризовать клетку до снятия магниевого блока, чем каждому по отдельности.
- Ассоциативность. Слабый вход может усилиться, если он активен одновременно с сильным входом, который обеспечил постсинаптическую деполяризацию.
Последнее свойство близко правилу Хебба: связь между одновременно активными клетками может укрепляться. Но известная фраза «нейроны, которые возбуждаются вместе, связываются вместе» - мнемоника, а не точное правило. Нужны время, тип синапса, состояние сети и биохимические условия; в современных моделях важен даже порядок пресинаптического и постсинаптического спайков.
LTD и баланс пластичности
Синапс должен уметь не только усиливаться. При некоторых режимах активности развивается LTD: передача ослабевает, а AMPA-рецепторы могут терять фосфорилирование и удаляться из мембраны эндоцитозом. Для многих NMDA-зависимых форм важна меньшая или иначе организованная кальциевая сигнализация, которая включает фосфатазы, а не киназы.

Баланс LTP и LTD не даёт сети бесконечно наращивать все веса. Он помогает выделять значимые совпадения, ослаблять ненужные связи и сохранять диапазон для новых изменений. В мозжечке, например, особенно известны формы LTD; нельзя механически переносить гиппокампальную схему на весь мозг.
Как LTP исследуют и почему это не доказательство памяти
LTP измеряют на срезах мозга, в живых животных и клеточных культурах, сравнивая ответ до и после индукции. Регистрацию токов и потенциалов можно вести методом пэтч-кламп, а полевые потенциалы позволяют наблюдать ответ популяции нейронов. Блокаторы NMDA-рецепторов, генетические изменения и оптические методы помогают проверять причинность отдельных этапов.
У LTP есть сильные основания считаться клеточным механизмом некоторых форм обучения: она длится, зависит от опыта, специфична и использует молекулярные пути, нужные для памяти. Но сам факт LTP в лабораторном срезе ещё не доказывает, что найдено полное биологическое содержание конкретного воспоминания. Поведение зависит от внимания, сна, эмоций, системной консолидации и множества пластических процессов. Корректный вывод: LTP - важная модель и вероятный компонент памяти, а не её исчерпывающее объяснение.
Частые ошибки
- Называть LTP памятью. LTP - изменение синаптической эффективности; память - явление уровня поведения и сетей.
- Считать NMDA-рецептор обычным «кальциевым краном». Для его проводимости нужны и глутамат, и деполяризация, снимающая магниевый блок.
- Сводить LTP к росту пресинаптического выброса. В CA1 важны постсинаптические AMPA-рецепторы, но механизмы зависят от синапса.
- Забывать о LTD. Пластичная сеть требует и усиления, и ослабления связей.
FAQ
Сколько длится долговременная потенциация? В эксперименте эффект может сохраняться часами, днями и дольше, в зависимости от протокола и системы. Раннюю и позднюю фазы различают по потребности в синтезе белка.
Почему магний блокирует NMDA-рецептор? При потенциале покоя ион занимает пору канала. Деполяризация уменьшает этот блок, поэтому рецептор одновременно чувствителен к медиатору и состоянию мембраны.
Всегда ли обучение вызывает LTP? Нет. Обучение включает разные типы пластичности, включая LTD, изменения торможения, структурные и системные процессы. LTP - одна из наиболее изученных моделей.
Коротко
LTP - устойчивое усиление синапса после определённой активности. В классической гиппокампальной модели глутамат активирует AMPA-рецепторы, сильная деполяризация снимает магниевый блок NMDA-рецептора, а вход запускает CaMKII и встраивание AMPA-рецепторов. Поздняя фаза требует синтеза белка и перестройки контакта. Специфичность, кооперативность и ассоциативность связывают LTP с правилом Хебба, а LTD обеспечивает противоположное направление пластичности. Это важный клеточный механизм памяти, но не вся память целиком.
Читайте также
Круг Папеца лимбической системы: схема и звенья
Круг Папеца лимбической системы: из каких структур состоит контур памяти и эмоций, в каком порядке идут звенья от гиппокампа к таламусу и как запомнить схему к экзамену.
Абсолютно неупругий удар: сохранение импульса
Как найти скорость тел после абсолютно неупругого удара, применить закон сохранения импульса и вычислить потерю кинетической энергии на понятных примерах с формулами.
Абсолютное и избыточное давление: формулы и вакуум
Абсолютное и избыточное давление, разрежение и вакуум: как выбрать начало отсчёта, перевести показания манометра и решить задачи с примерами в килопаскалях.
АЦП последовательного приближения: схема и принцип работы
Разберите схему АЦП последовательного приближения: как компаратор, ЦАП и регистр определяют код по битам, как вычислить шаг квантования и оценить погрешность.
Аддитивная и мультипликативная погрешность
Аддитивная и мультипликативная погрешность прибора: формулы сдвига нуля и ошибки масштаба, пример расчёта показания и поправки, калибровка прибора и пределы линейной модели.
Адиабатический процесс: уравнение Пуассона и расчёт
Уравнение Пуассона для адиабатического процесса: вывод через первое начало термодинамики, связь давления, объёма и температуры, пример и границы применения.