Метод пэтч-кламп: как записать ток одного ионного канала
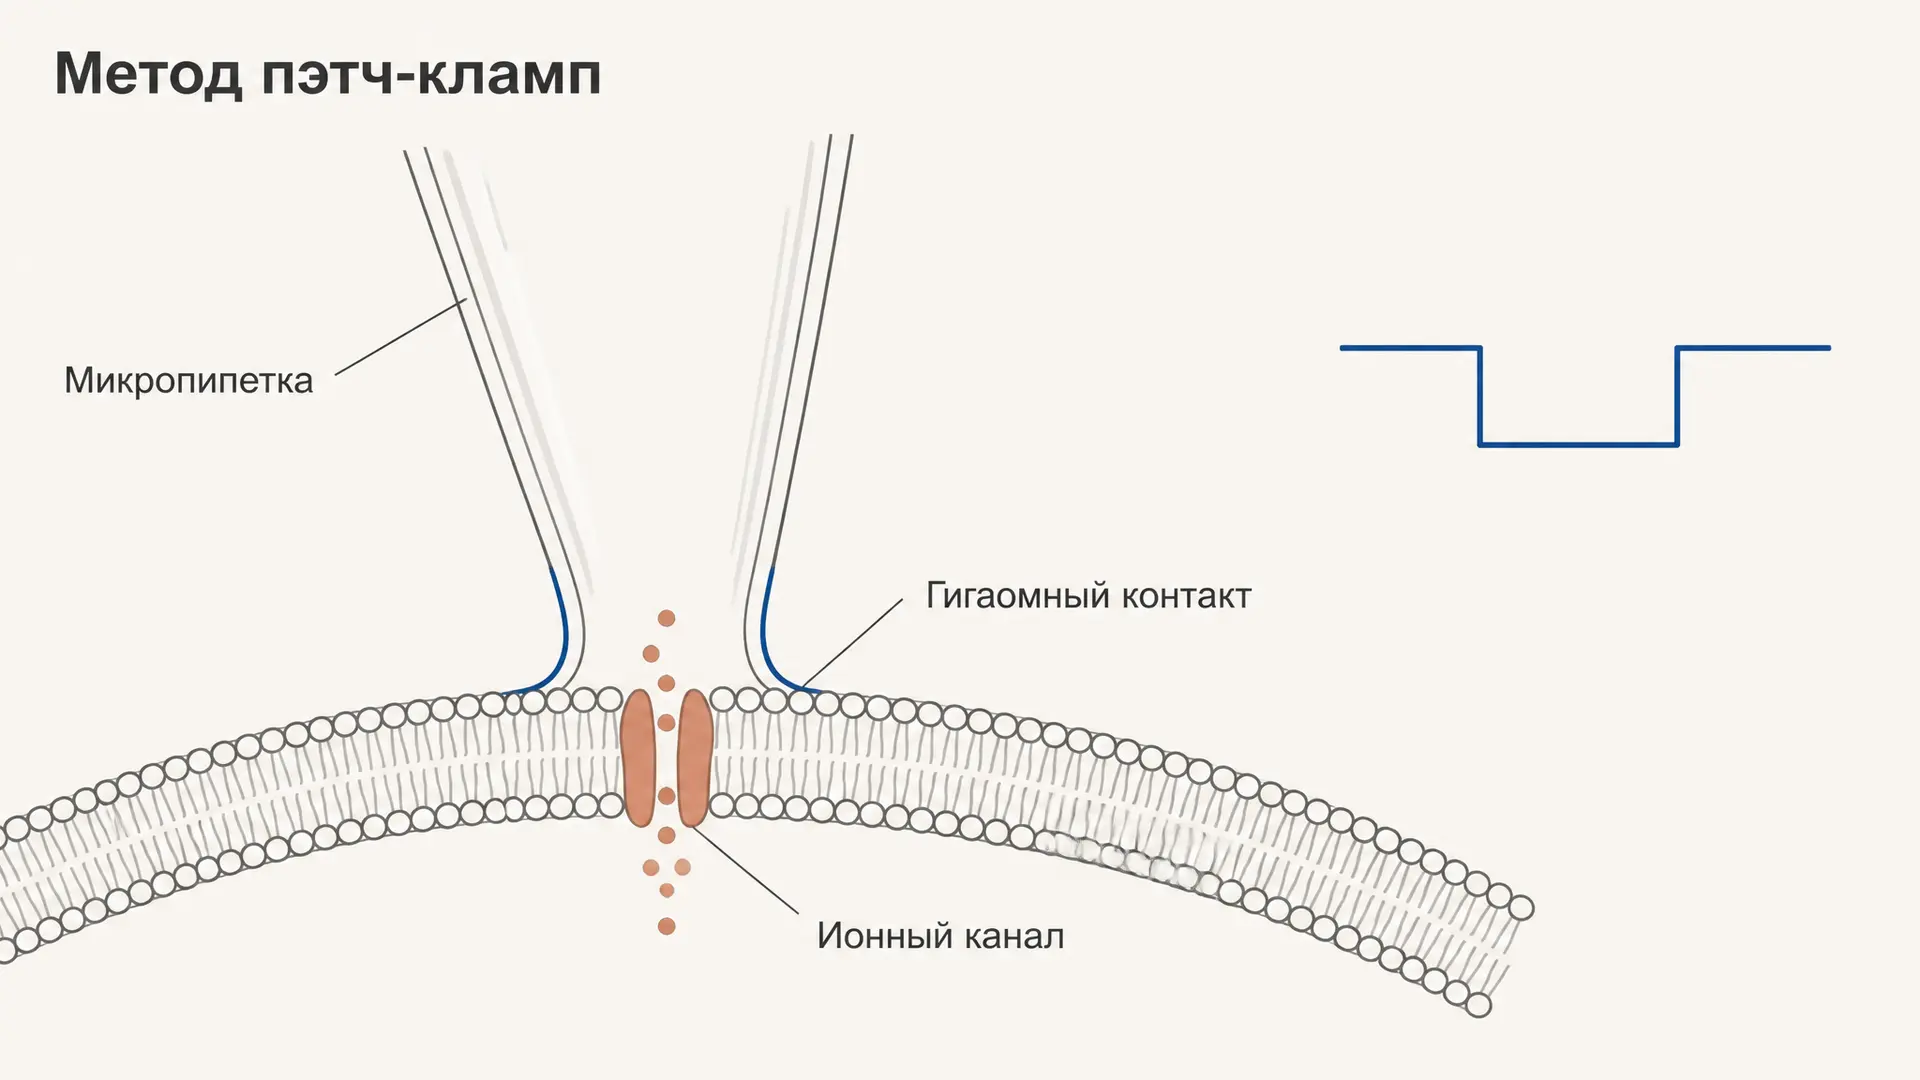
Метод пэтч-кламп (от английского patch clamp, «фиксация участка») позволяет увидеть работу одной белковой молекулы в реальном времени: стеклянная микропипетка присасывается к мембране клетки, изолирует крошечный участок с одним или несколькими ионными каналами, и усилитель регистрирует ток в единицы пикоампер. Метод придумали Эрвин Неер и Берт Закман в 1976 году, а в 1991 году он принёс им Нобелевскую премию по физиологии и медицине. Ниже разберём, откуда берётся гигаомный контакт, чем отличаются четыре конфигурации записи и что именно измеряют. Калькулятор сразу под этим абзацем считает ток одиночного канала, ток целой клетки и шум контакта, а заодно рисует модельную запись со ступеньками открытия.
Что такое метод пэтч-кламп
До 1976 года электрофизиология умела мерить только суммарный ток тысяч каналов. Классическая фиксация потенциала на гигантском аксоне кальмара (как её использовали Ходжкин и Хаксли, разобрано в статье про модель Ходжкина-Хаксли) требовала вводить в клетку проволочный электрод и давала макроскопический ток. Что каналы открываются дискретно, по принципу «всё или ничего», оставалось гипотезой.
Неер и Закман прижали к мембране денервированного мышечного волокна лягушки пипетку с кончиком около микрометра и впервые записали прямоугольные ступеньки тока через каналы, активируемые ацетилхолином. Сопротивление контакта тогда составляло десятки мегаом, и шум почти скрывал сигнал. Прорыв случился в 1980-1981 годах: группа Неера обнаружила, что лёгкий отсос на чистой мембране даёт контакт в гигаомы, и описала четыре конфигурации записи, которыми пользуются до сих пор.
Суть метода в одной фразе: электрически изолировать маленький участок мембраны и держать на нём заданный потенциал (или ток), измеряя то, что через него проходит.
Микропипетка и гигаомный контакт
Пипетку вытягивают из боросиликатного стекла на специальном пуллере, кончик оплавляют, чтобы края стали гладкими. Диаметр отверстия около 1 мкм, сопротивление заполненной пипетки обычно 2-10 МОм. Внутри раствор, имитирующий цитоплазму или межклеточную жидкость, и хлорсеребряный электрод.
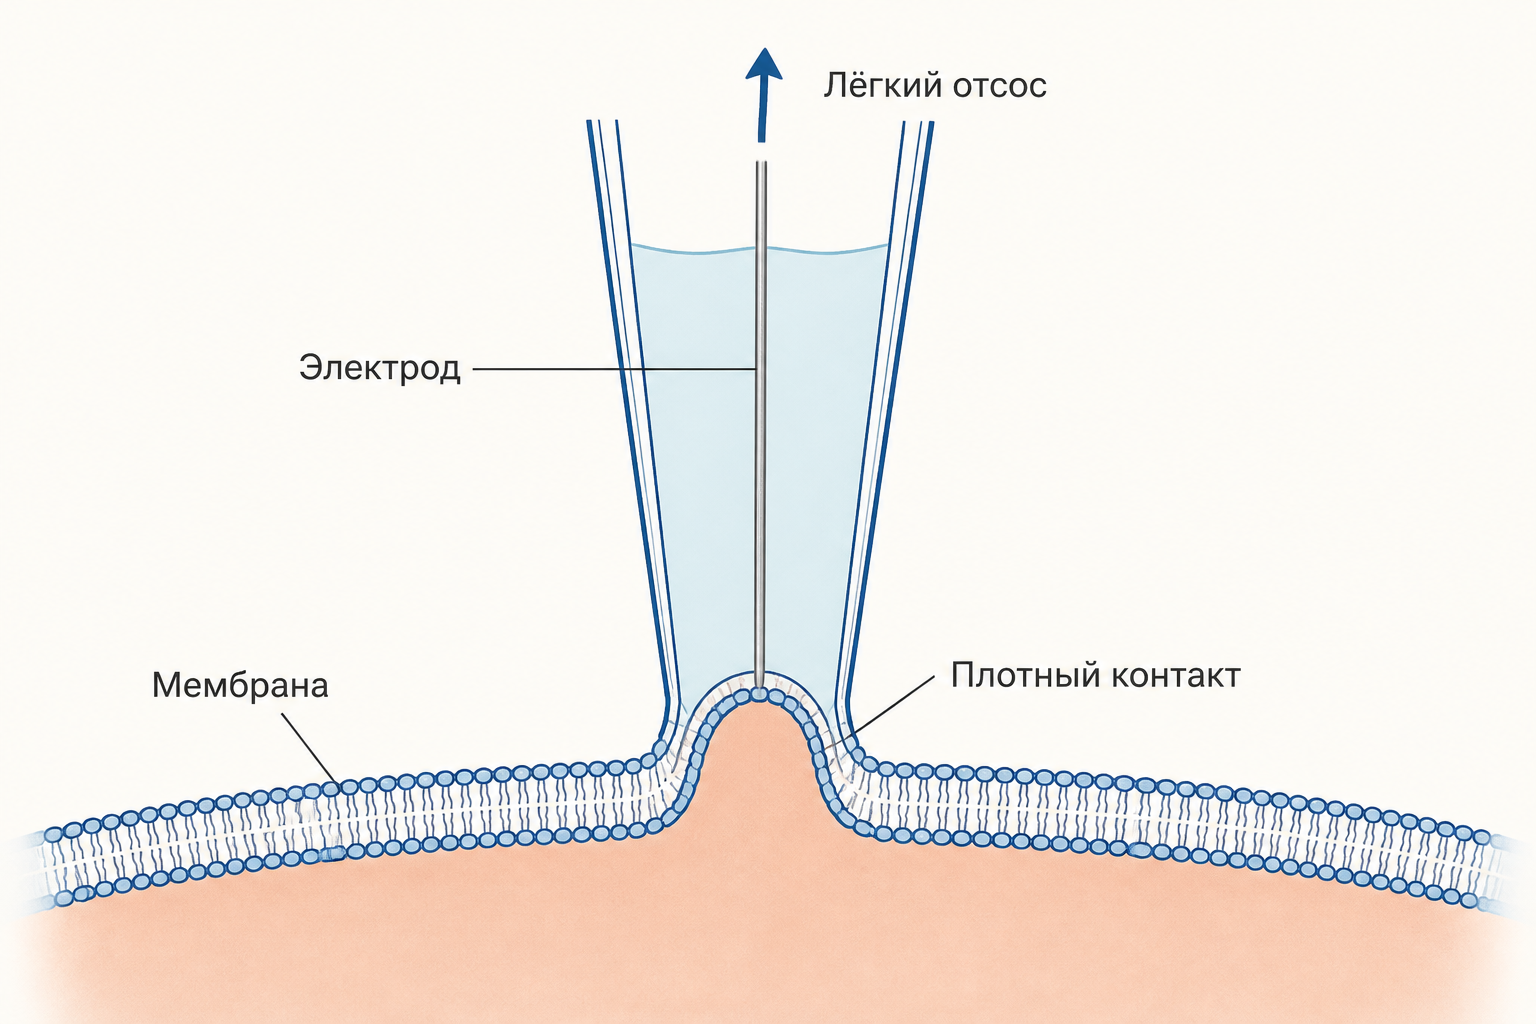
Пипетку подводят к клетке, касаются мембраны и слегка подсасывают. Липиды прилипают к стеклу, и сопротивление между раствором пипетки и ванной скачком вырастает до 1-100 ГОм. Это и есть гигаомный контакт (gigaseal). Он решает две задачи сразу: механически фиксирует участок и не даёт току утекать в обход канала.
Зачем именно гигаомы, видно из формулы теплового шума сопротивления:
где постоянная Больцмана, температура, полоса пропускания фильтра, сопротивление контакта. При 22 °C и полосе 1 кГц контакт в 10 ГОм даёт пА, в 1 ГОм примерно 0,128 пА, а рыхлый контакт в 0,1 ГОм уже 0,40 пА. Если ток канала 2,8 пА, отношение сигнал/шум падает с 69 до 7. Это нижняя граница: реальный шум выше за счёт усилителя и ёмкости пипетки, но зависимость от сохраняется. Переключите сопротивление контакта в калькуляторе, и ступеньки на модельной записи начнут тонуть в шуме.
Четыре конфигурации: cell-attached, whole-cell, inside-out, outside-out
Из одного и того же контакта получают четыре режима записи. Переход между ними делается отсосом или отведением пипетки.
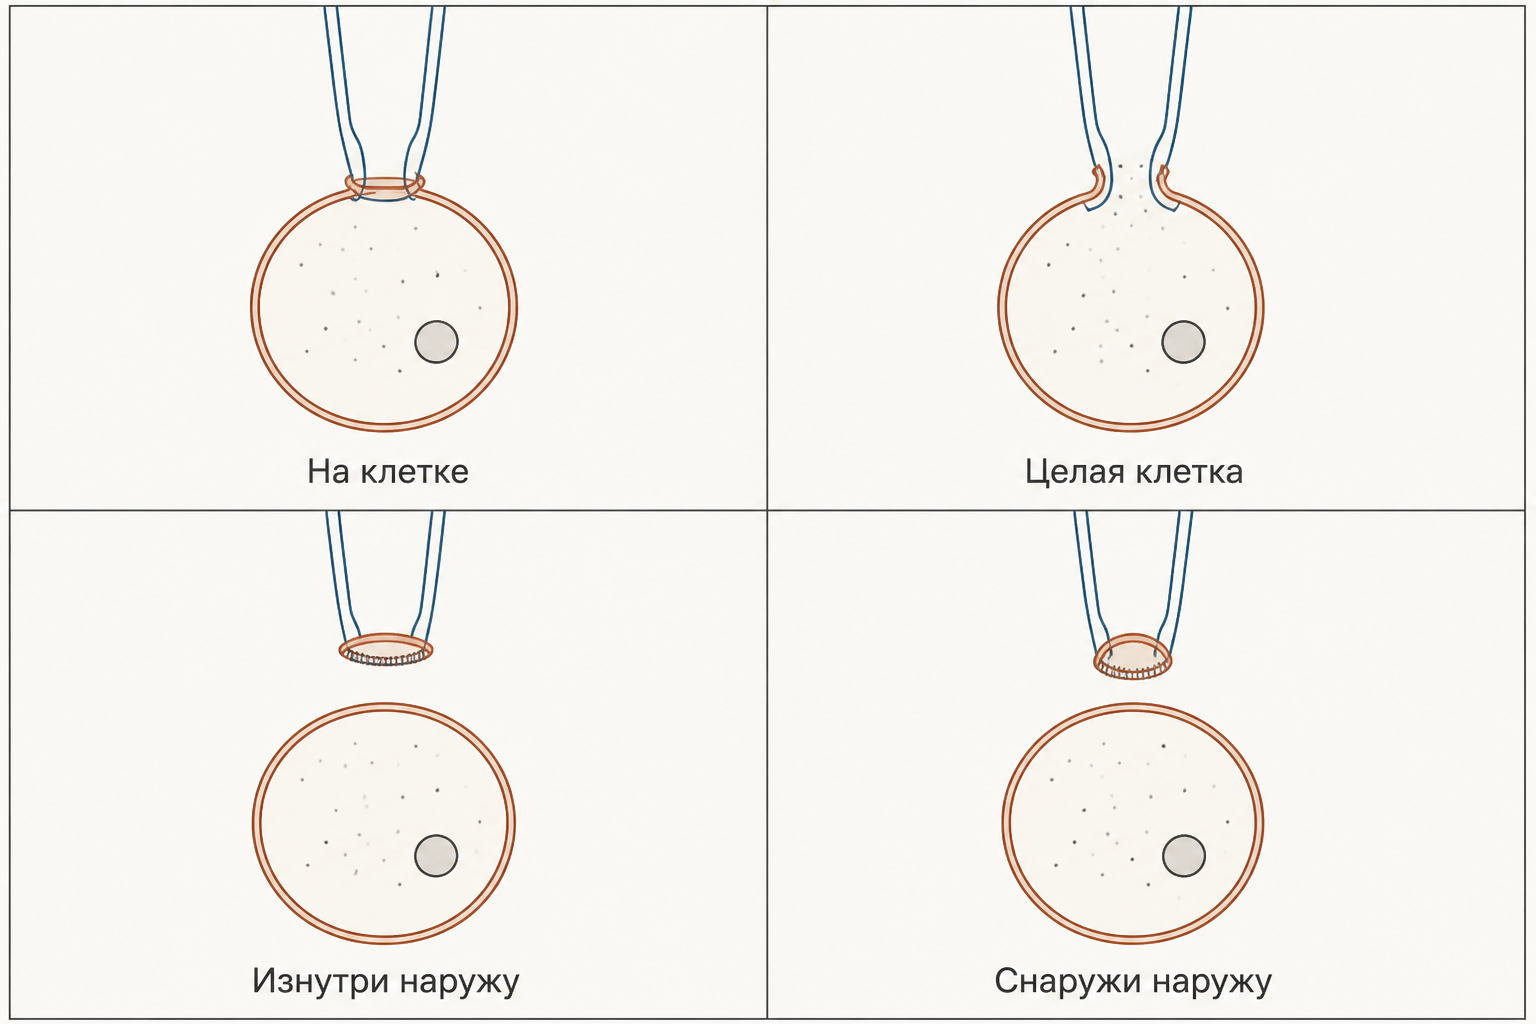
- Cell-attached (на клетке). Пипетка просто присосана, мембрана цела. Записываются токи каналов под кончиком, а внутренняя среда клетки не нарушена. Минус: мембранный потенциал клетки неизвестен точно, задаётся только разность относительно него.
- Whole-cell (целая клетка). Коротким импульсом отсоса участок под кончиком прорывают, и пипетка сообщается с цитоплазмой. Регистрируется суммарный ток всех каналов клетки. Раствор пипетки за минуты вымывает содержимое цитоплазмы (диализ).
- Inside-out (изнутри наружу). Из режима cell-attached пипетку резко отводят, и участок мембраны отрывается внутренней стороной к раствору ванны. Удобно менять внутриклеточные факторы: кальций, АТФ, вторичные посредники.
- Outside-out (снаружи наружу). Из режима whole-cell пипетку медленно отводят, мембрана смыкается на кончике внешней стороной к ванне. Удобно подавать лиганды и лекарства снаружи.
| Конфигурация | Какая сторона к ванне | Что регистрируют | Типичная задача |
|---|---|---|---|
| Cell-attached | клетка цела | одиночные каналы | каналы в естественной среде |
| Whole-cell | внешняя сторона клетки | ток всей клетки | потенциал действия, фармакология |
| Inside-out | внутренняя | одиночные каналы | регуляция изнутри |
| Outside-out | внешняя | одиночные каналы | действие медиаторов и блокаторов |
Отдельно стоит перфорированный пэтч: в пипетку добавляют антибиотик (нистатин, амфотерицин, грамицидин), который делает в участке мембраны мелкие поры. Электрический доступ как в whole-cell, но крупные молекулы цитоплазмы не вымываются.
Фиксация напряжения и фиксация тока
Усилитель пэтч-кламп работает в двух режимах. При фиксации напряжения (voltage clamp) цепь обратной связи держит потенциал на заданном уровне и подаёт ровно такой ток, какой протекает через каналы. Этот компенсирующий ток и записывают. Так снимают ступеньки одиночных каналов и вольт-амперные кривые.
При фиксации тока (current clamp) задают инжектируемый ток (часто нулевой) и записывают мембранный потенциал. В режиме whole-cell это прямой способ увидеть потенциал покоя и потенциалы действия нейрона, в том числе в срезах мозга. Проверить, согласуется ли измеренный потенциал покоя с ионными градиентами, можно по уравнению Голдмана-Ходжкина-Катца.
Токи одиночных каналов: проводимость и вероятность открытия
Запись одиночного канала выглядит как телеграфный сигнал: ток скачет между нулём (канал закрыт) и постоянным уровнем (канал открыт). Из такой записи извлекают три величины.
Проводимость. Амплитуда ступеньки подчиняется закону Ома с поправкой на движущую силу:
где проводимость одиночного канала, потенциал фиксации, потенциал реверсии, при котором ток меняет знак. Если при мВ и мВ ступенька равна пА, то нС, то есть 40 пС. Проводимости каналов лежат в диапазоне от единиц до сотен пикосименс. Наклон вольт-амперной прямой в калькуляторе и есть , а точка пересечения с нулём показывает и, значит, селективность канала (сравните с потенциалом Нернста из статьи про потенциал покоя).
Вероятность открытия равна доле времени, которую канал проводит в открытом состоянии. По ней судят, как на канал действуют потенциал, лиганд или лекарство.
Кинетика: гистограммы времён открытого и закрытого состояний показывают, сколько состояний у канала и с какими скоростями он между ними переходит.
Микро- и макроуровень связывает простое соотношение:
При каналов, и пА ток целой клетки равен пА. Именно поэтому один метод отвечает на вопросы обоих уровней. Как три состояния натриевого канала проявляются в таких записях, разобрано в статье про потенциал-зависимые натриевые каналы.
Короткая запись даёт шумную оценку вероятности открытия. Для надёжного значения P_o нужны сотни открытий, а при нескольких каналах в участке их число оценивают по одновременным наложениям ступенек.
Кроме токов, в режиме whole-cell измеряют ёмкость мембраны: при слиянии секреторных пузырьков с мембраной она растёт скачками по несколько фемтофарад. Так Неер изучал экзоцитоз.
Автоматический пэтч-кламп в фармакологии
Ручная запись требует микроскопа, манипулятора и опытного оператора, за день получается несколько десятков клеток. Для скрининга лекарств этого мало, поэтому появились автоматические установки. Вместо пипетки в них плоский чип с отверстием около микрометра: клетки из суспензии подсасываются к отверстиям, и контакт формируется без участия человека, параллельно в десятках или сотнях лунок.
Главное применение связано с безопасностью. Блокада калиевого канала hERG удлиняет интервал QT и может вызвать опасную аритмию, поэтому каждый кандидат в лекарства проверяют на этот канал. Автоматический пэтч-кламп также применяют для поиска блокаторов натриевых каналов при боли и эпилепсии и для исследования мутаций при каналопатиях.
Ограничения метода
- Последовательное сопротивление. В whole-cell ток идёт через кончик пипетки с сопротивлением доступа , и реальный потенциал отличается от командного на . При токе 840 пА и МОм ошибка составляет 8,4 мВ, поэтому компенсируют электроникой.
- Пространственная фиксация. В нейроне с длинными дендритами потенциал удаётся удержать только рядом с сомой, быстрые токи на периферии искажаются.
- Диализ и затухание токов. Вымывание цитоплазмы уносит регуляторные молекулы, и токи ослабевают за минуты.
- Инвазивность и доступность. Нужна чистая мембрана, крупные ткани требуют срезов или диссоциации клеток, запись в живом организме возможна, но трудна.
- Производительность. Ручной метод медленный, автоматический теряет гибкость выбора конкретной клетки.
Частые ошибки
- Путать пэтч-кламп с классической фиксацией потенциала: в методе Ходжкина-Хаксли электрод вводили внутрь аксона, здесь пипетка прилегает снаружи и изолирует участок.
- Считать, что гигаомный контакт нужен для прочности. Главное в нём электрическая изоляция и низкий шум.
- Писать закон Ома без движущей силы: верно только при .
- Путать inside-out и outside-out: название говорит, какая сторона мембраны обращена к ванне.
- Забывать, что в cell-attached известен лишь потенциал относительно покоя клетки.
FAQ
Кто изобрёл метод пэтч-кламп? Эрвин Неер и Берт Закман, первая публикация 1976 года. В 1991 году они получили Нобелевскую премию по физиологии и медицине за открытия, касающиеся функции одиночных ионных каналов.
Какой ток регистрируют в пэтч-кламп? Токи одиночных каналов составляют доли и единицы пикоампер, иногда до двадцати. Ток целой клетки обычно от сотен пикоампер до нескольких наноампер.
Чем whole-cell отличается от cell-attached? В cell-attached мембрана цела и регистрируются каналы только под кончиком. В whole-cell участок прорван, пипетка сообщается с цитоплазмой, и записывается ток всей клетки или её потенциал.
Коротко
Метод пэтч-кламп изолирует микропипеткой участок мембраны за счёт гигаомного контакта, который снижает шум до сотых долей пикоампера и делает видимыми токи одиночных каналов. Четыре конфигурации (cell-attached, whole-cell, inside-out, outside-out) выбирают в зависимости от того, к какой стороне мембраны нужен доступ и что регистрируется: одиночные каналы или вся клетка. В режиме фиксации напряжения меряют ток, в режиме фиксации тока меряют потенциал. Из записей получают проводимость по формуле , вероятность открытия и кинетику, а соотношение связывает их с током клетки. Автоматический пэтч-кламп стал стандартом проверки лекарств на канал hERG. Главные ограничения метода: ошибка последовательного сопротивления, неполная пространственная фиксация и диализ цитоплазмы.
Читайте также
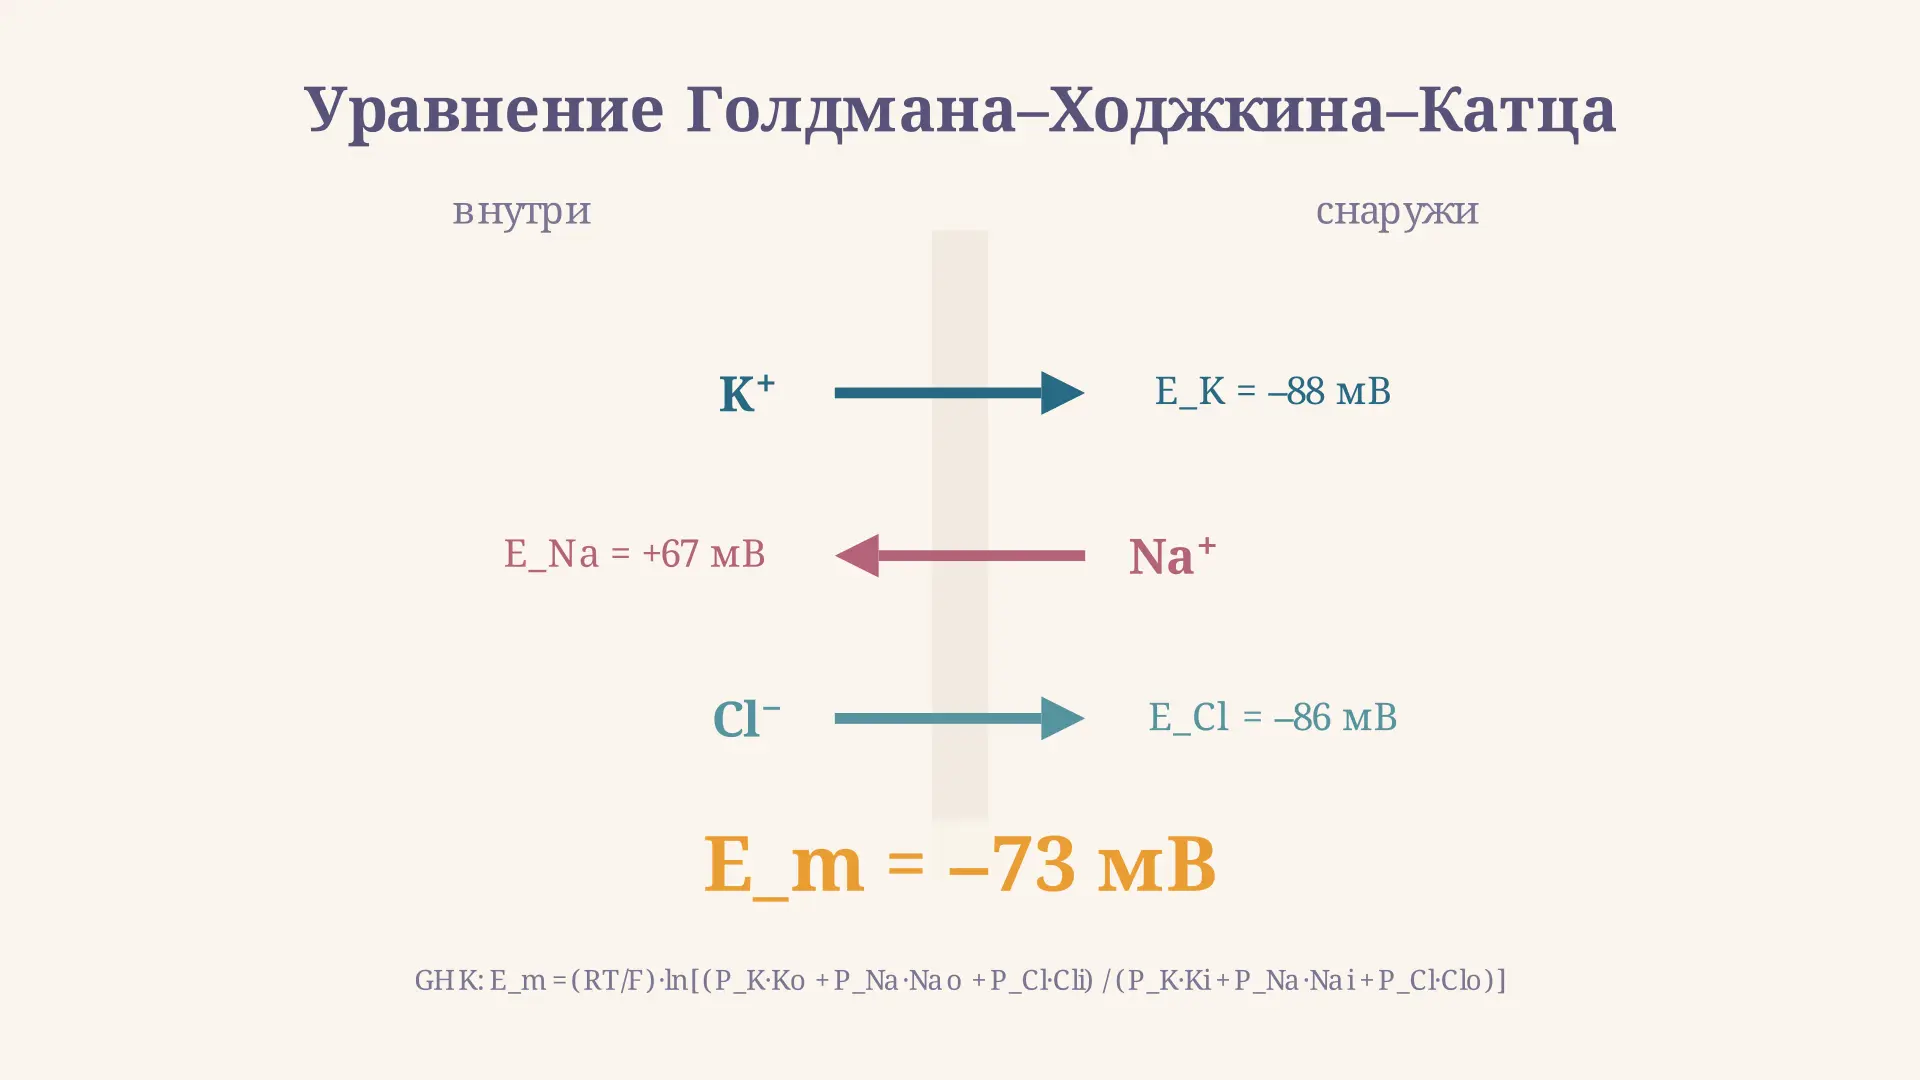
Уравнение Голдмана-Ходжкина-Катца: потенциал покоя
Уравнение GHK объясняет потенциал покоя нейрона через проницаемости K+, Na+, Cl- и их концентрации. Разбираем вывод, формулу, числовые примеры и типичные ошибки студентов.
Облегчённая диффузия: переносчики и каналы мембраны
Облегчённая диффузия: как белки-переносчики и ионные каналы ускоряют пассивный транспорт через мембрану, отличие от простой диффузии и активного транспорта, насыщение, специфичность.
Потенциал действия кардиомиоцита: фаза плато
Разбор фазы плато в потенциале действия кардиомиоцита: какие ионные токи её держат, зачем нужно плато сердцу, чем оно отличается от нейрона и как решать задачи.
Потенциал покоя: происхождение и уравнение Нернста
Потенциал покоя клетки - как он возникает, чем определяется и как рассчитать по уравнению Нернста. Физиология мембранного потенциала от ионных каналов до формулы.
Рецепторный потенциал: сенсорный сигнал клетки
Что такое рецепторный потенциал в сенсорной системе: чем он отличается от потенциала действия, как стимул переходит в ионный ток и кодируется частотой импульсов.
Синдром Романо-Уорда: причины, ЭКГ и наследование
Синдром Романо-Уорда: что это за форма удлинённого QT, какие гены и ионные каналы вовлечены, как читать ЭКГ, чем отличается от синдрома Джервелла и как наследуется.