Модель Ходжкина-Хаксли: уравнения, схема и расчёт ПД
В 1952 году Алан Ходжкин и Эндрю Хаксли опубликовали в Journal of Physiology серию из пяти статей, последняя из которых свела нервный импульс к системе из четырёх дифференциальных уравнений. Модель Ходжкина-Хаксли до сих пор служит отправной точкой вычислительной нейронауки: из неё сами собой получаются порог, форма потенциала действия, рефрактерность и скорость проведения, а почти все последующие модели нейронов либо упрощают её, либо уточняют. Ниже калькулятор решает эту систему численно прямо в браузере: кривая потенциала не нарисована, а рассчитана из уравнений.
Откуда взялась модель: гигантский аксон кальмара
Работа началась с удачного объекта. У кальмара Loligo есть аксон, управляющий реактивным выбросом воды из мантии, толщиной около 0,5 мм, у крупных особей до 1 мм. Для сравнения, аксоны млекопитающих в сотни раз тоньше. В такой аксон можно вдоль оси ввести серебряную проволоку и измерять потенциал изнутри.
В 1939 году Ходжкин и Хаксли впервые записали потенциал действия внутриклеточным электродом и увидели овершут: на пике внутренняя сторона мембраны становится положительной. Господствовавшая тогда гипотеза Бернштейна предсказывала лишь «пробой» мембраны до нуля, и овершут её опроверг. Война прервала опыты, и продолжение пришлось на 1945-1952 годы в морской лаборатории Плимута.
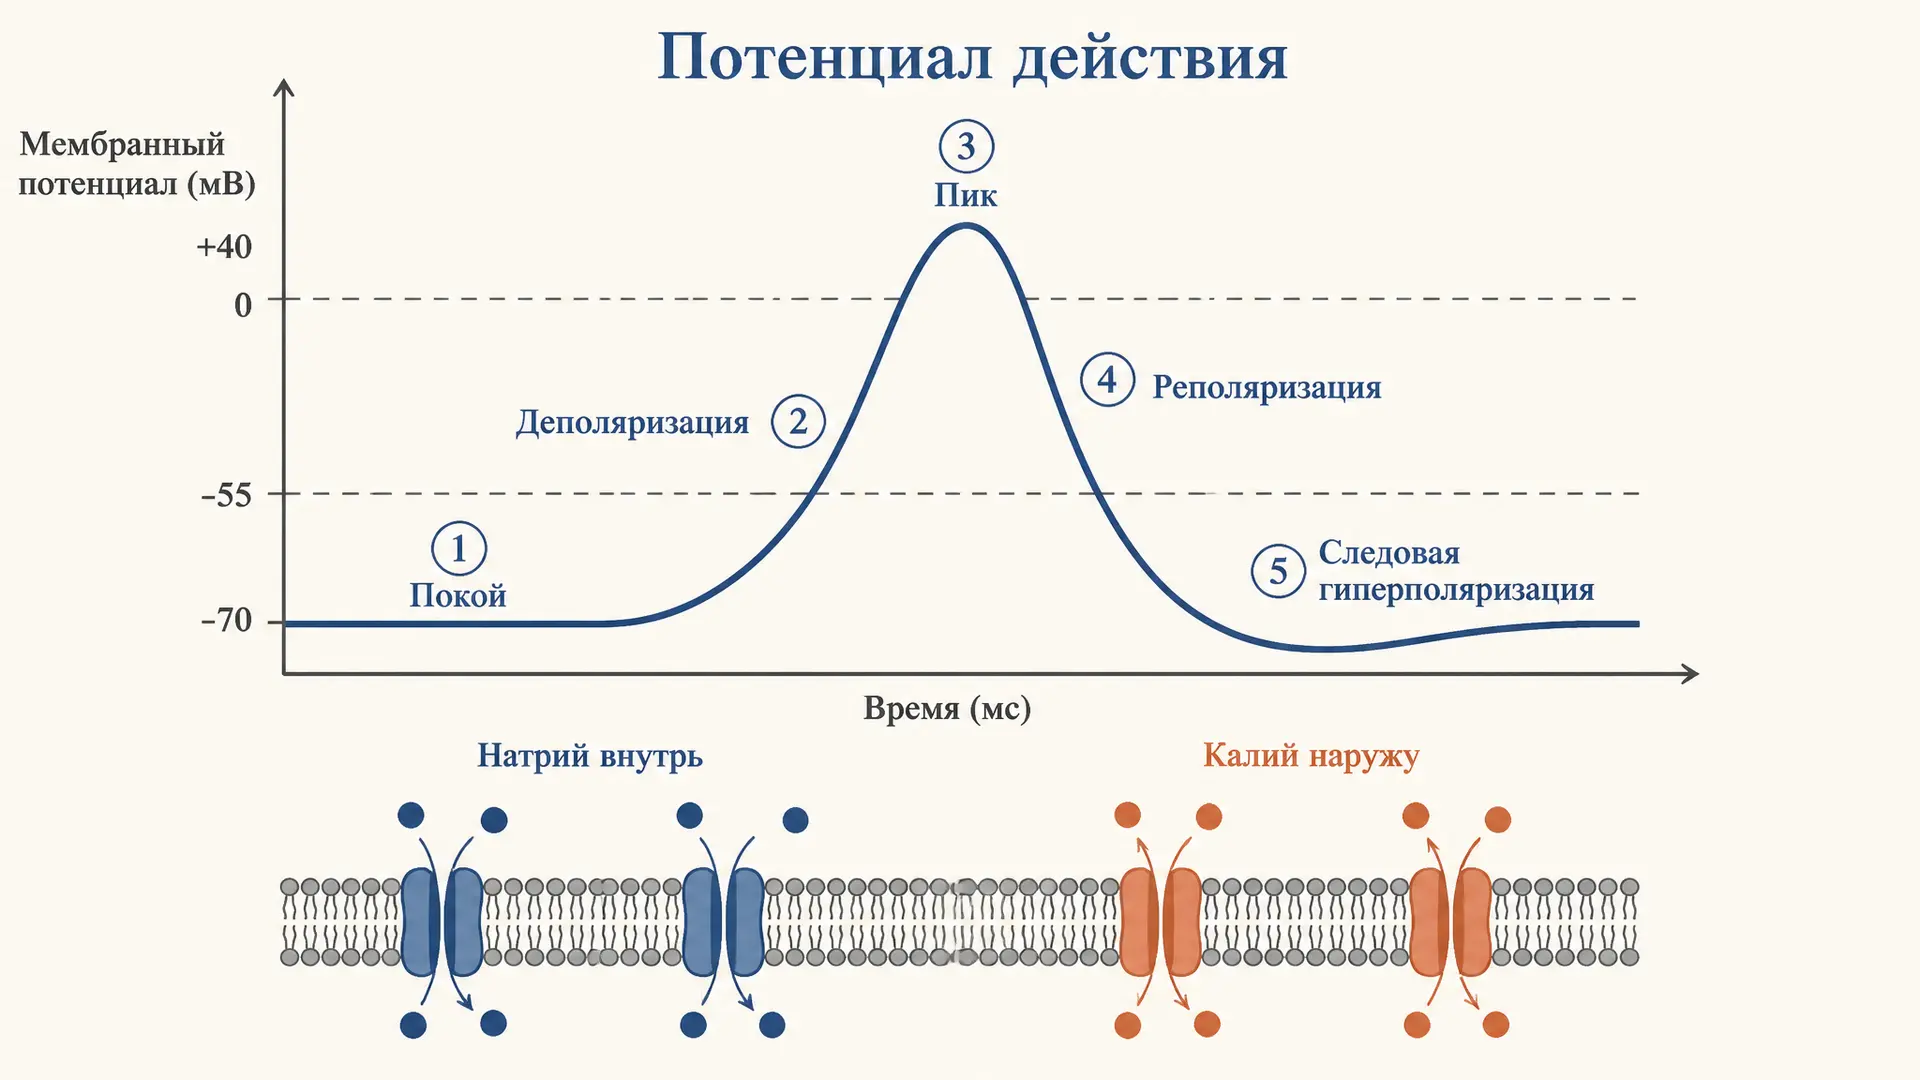
Цель была не в том, чтобы описать фазы импульса (их качественный разбор есть в статье про фазы потенциала действия и ионные механизмы), а в том, чтобы измерить, как проводимость мембраны для каждого иона зависит от напряжения и времени. Для этого понадобился новый прибор.
Фиксация потенциала: как разделили токи
Метод фиксации потенциала (voltage clamp) предложили Кеннет Коул и Джордж Мармонт в 1947-1949 годах, а Ходжкин, Хаксли и Бернард Катц довели его до количественных измерений. Один электрод измеряет потенциал внутри аксона, усилитель сравнивает его с командным значением и через второй электрод впрыскивает ровно столько тока, сколько нужно, чтобы удержать потенциал неизменным.
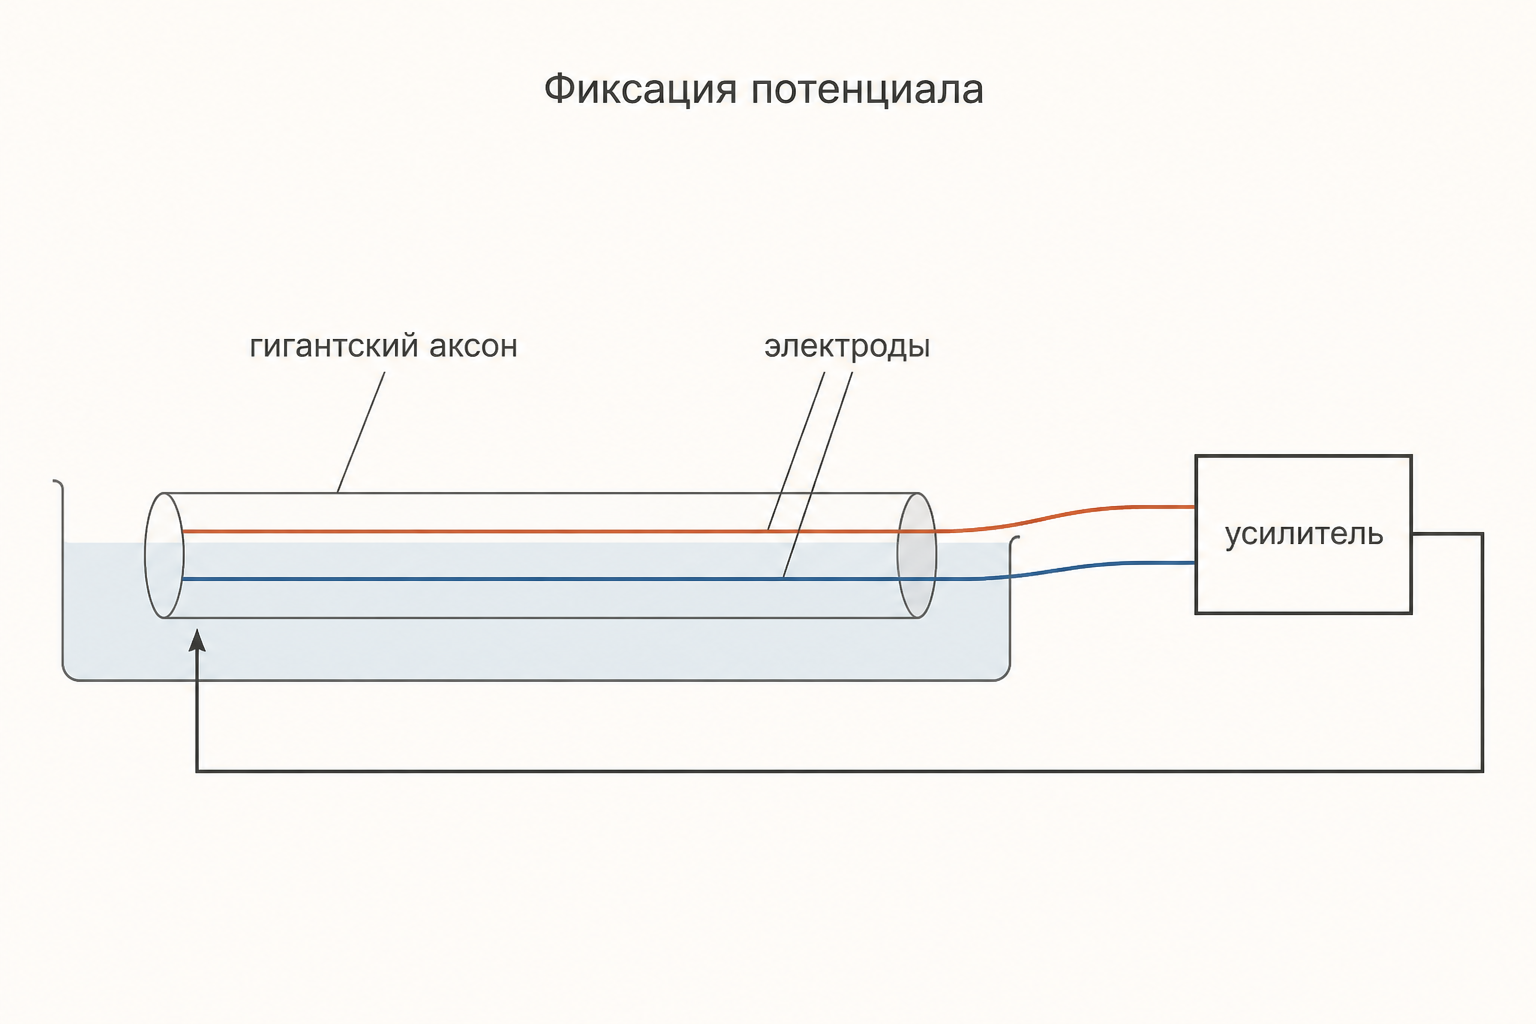
Смысл приёма в том, что при постоянном ёмкостный ток равен нулю, и впрыскиваемый ток совпадает с суммарным ионным. Скачок с -65 до 0 мВ давал ранний входящий ток и поздний выходящий. Когда натрий в наружном растворе заменяли холином, ранний ток исчезал, и оставался чистый калиевый. Вычитание одной записи из другой давало натриевый ток во времени, а деление на движущую силу давало проводимость .
Результат оказался принципиальным. Калиевая проводимость растёт с S-образной задержкой и держится, пока мембрана деполяризована. Натриевая растёт быстро, но спадает даже при сохранённой деполяризации. Это спадание назвали инактивацией.
Мембрана как электрическая схема
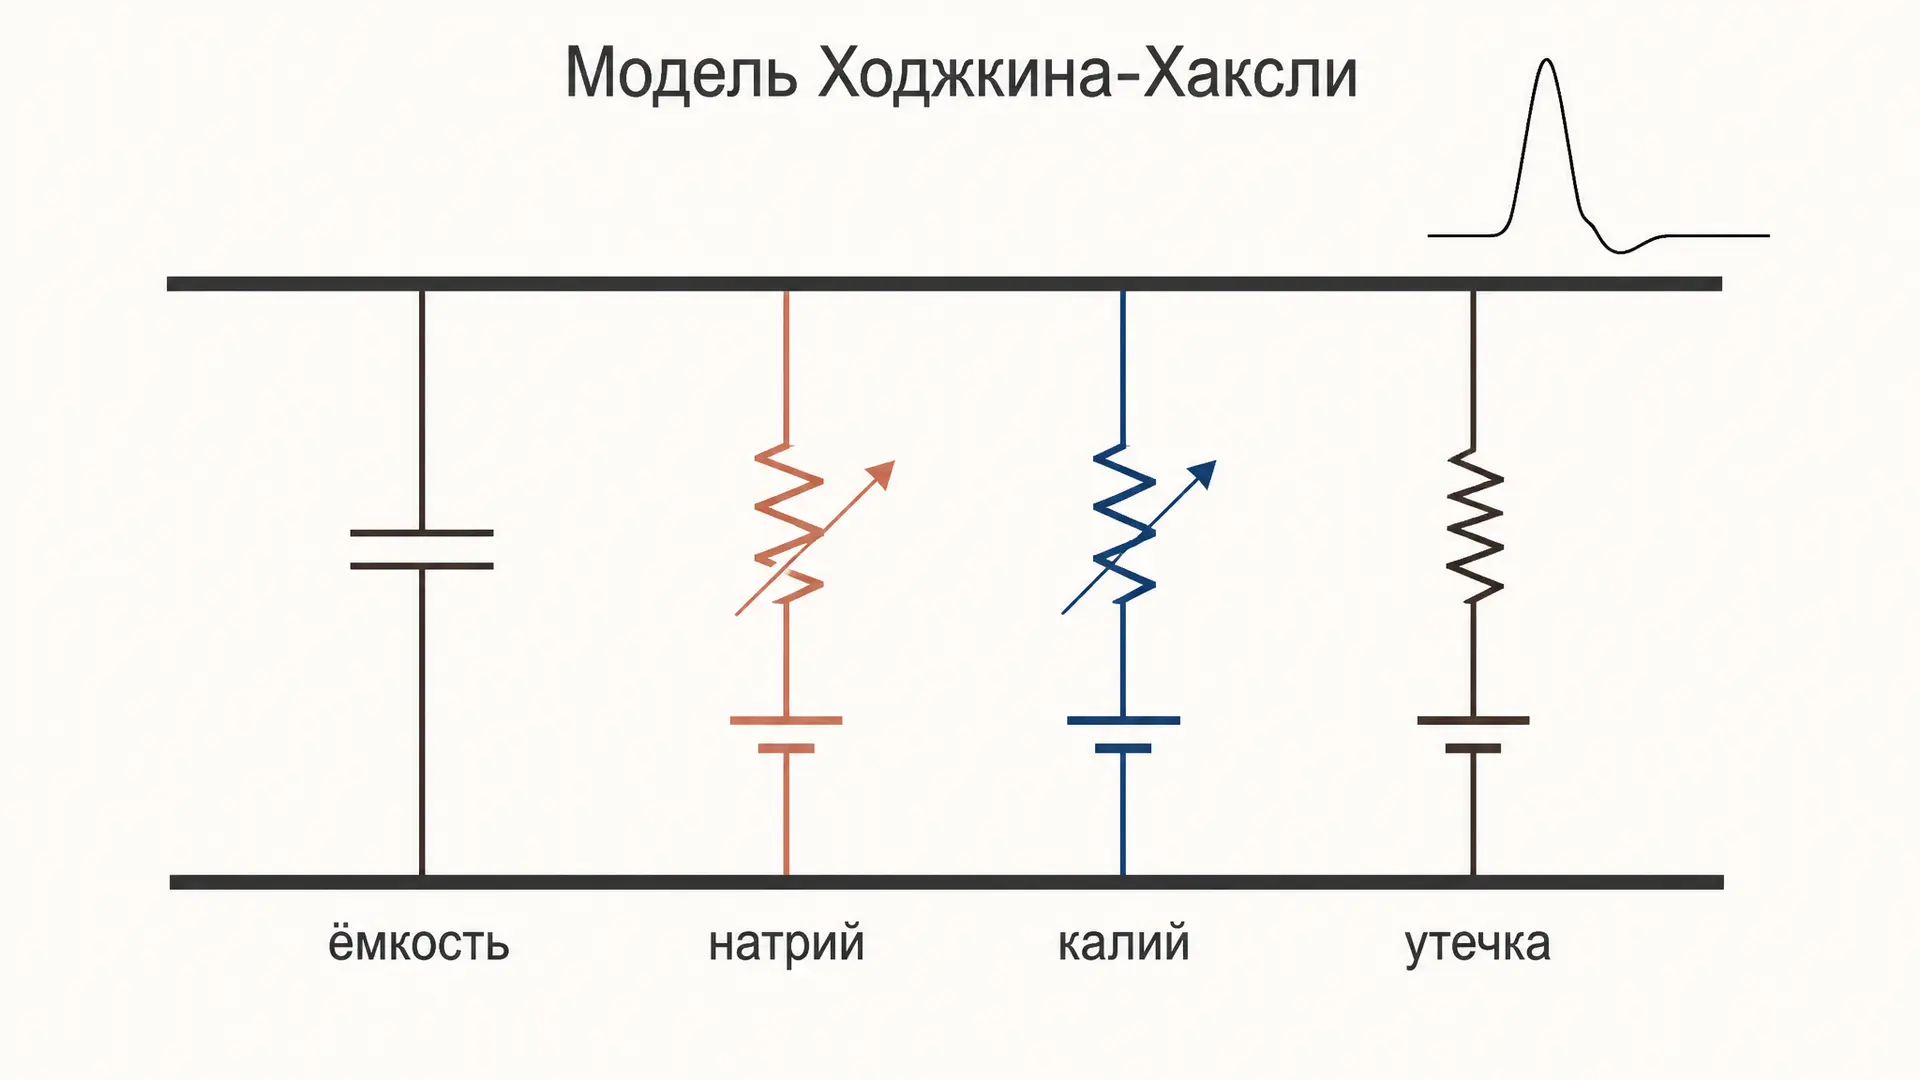
Ходжкин и Хаксли представили участок мембраны как электрическую цепь. Липидный бислой работает как конденсатор ёмкостью около 1 мкФ/см². Параллельно ему идут три ветви: натриевая, калиевая и ветвь утечки. Каждая ветвь состоит из проводимости и батареи, напряжение которой равно равновесному потенциалу иона. Откуда берутся эти потенциалы и почему покой близок к калиевому, разобрано в статье про уравнение Голдмана-Ходжкина-Катца.
По закону Кирхгофа сумма токов через мембрану равна току стимула:
| Параметр | Значение |
|---|---|
| 1 мкФ/см² | |
| 120 мСм/см² | |
| 36 мСм/см² | |
| 0,3 мСм/см² | |
| +50 мВ | |
| -77 мВ | |
| -54,4 мВ |
Это современная запись с покоем -65 мВ. В оригинале 1952 года отсчитывали от покоя и деполяризацию считали отрицательной, поэтому формулы из первоисточника со знаками учебников смешивать нельзя. Все константы получены при 6,3 °C. Для другой температуры скорости умножают на .
Воротные переменные m, h и n
Проводимость каждой ветви равна максимальной, умноженной на долю открытых каналов. Ходжкин и Хаксли предположили, что натриевый путь открыт, когда в нужном положении стоят три активирующие частицы и одна инактивирующая , отсюда множитель . Калиевому пути нужны четыре частицы , отсюда . Каждая переменная подчиняется одному и тому же кинетическому уравнению:
Здесь и задают скорости перехода частицы в «разрешающее» положение и обратно, и обе зависят от напряжения.
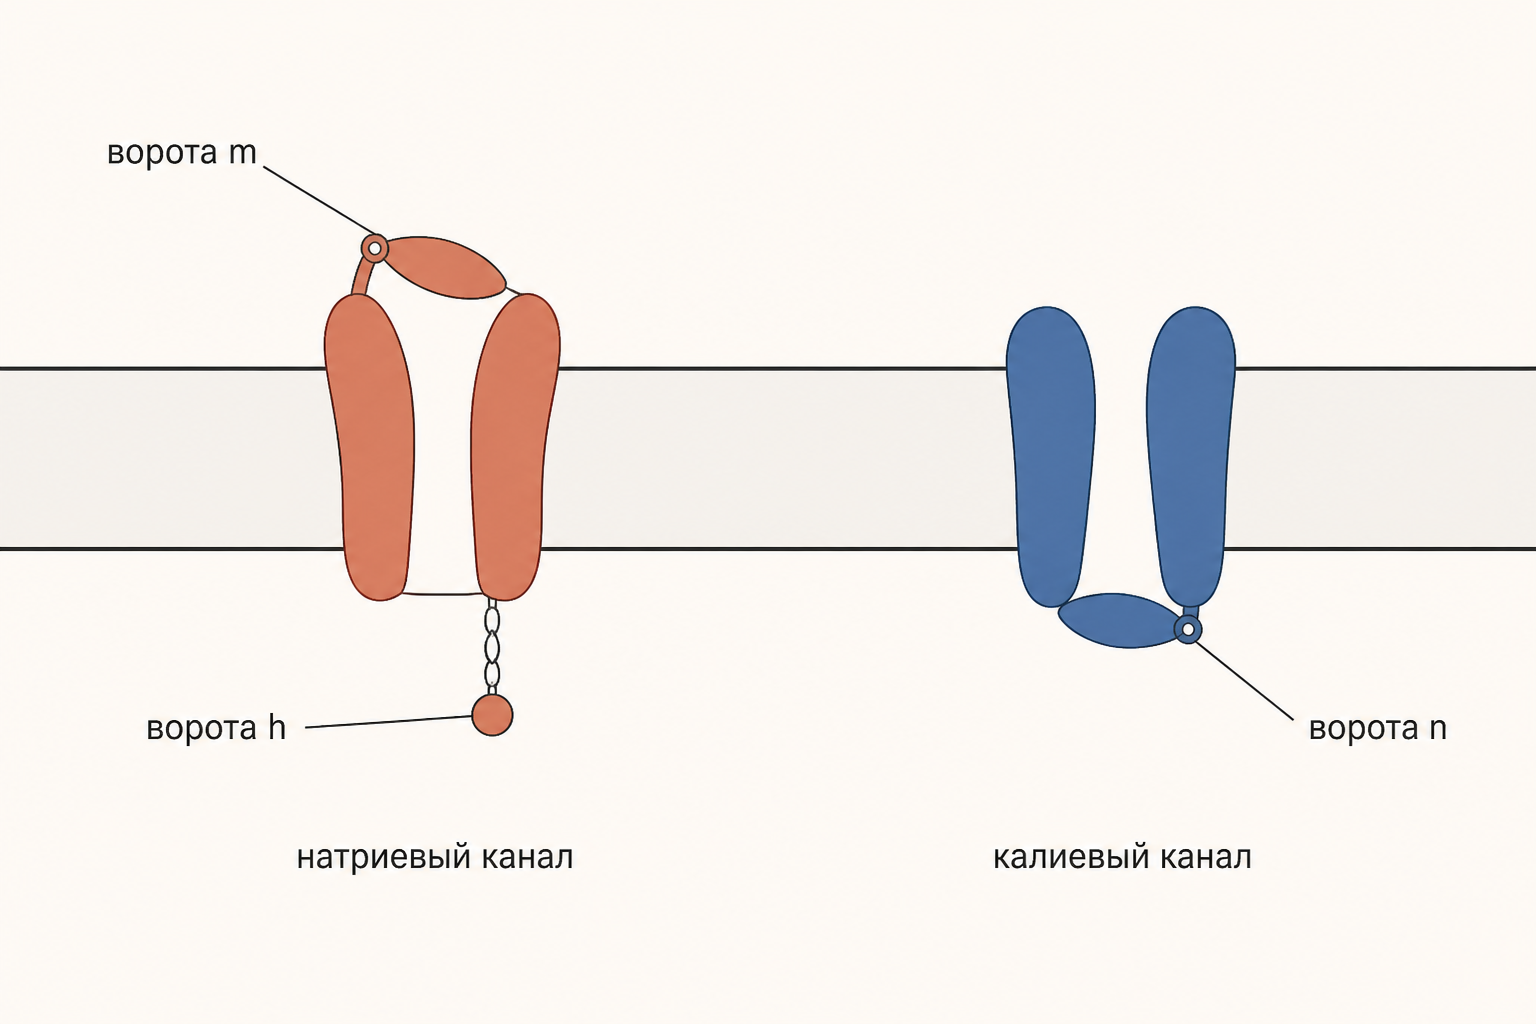
Показатели 3 и 4 подобраны по форме нарастания тока, а не выведены из структуры белка. Реальные сенсоры напряжения нашли десятилетия спустя, об их устройстве рассказывает статья про потенциал-зависимые натриевые каналы.
При -65 мВ стационарные значения равны , , . Отсюда покоящаяся калиевая проводимость около 0,37 мСм/см², а натриевая около 0,01 мСм/см², примерно в 35 раз меньше. Поэтому покой и лежит у калиевого потенциала. Ключ ко всей модели дают постоянные времени: при -65 мВ мс, мс, мс. Активация натрия на порядок быстрее инактивации и калиевого тока.
Как из уравнений получается потенциал действия
Калькулятор выше интегрирует систему явным методом Эйлера с шагом 0,01 мс: , и так же для , , . Возьмём стимул 10 мкА/см² длительностью 1 мс.
Деполяризация поднимает , и за доли миллисекунды догоняет её. Натриевый ток деполяризует мембрану ещё сильнее, это положительная обратная связь. Пик +39,3 мВ наступает через 2,5 мс после начала стимула и не доходит до мВ, потому что уже работают калиевый ток и утечка. К этому моменту близка к 0,99, но медленная падает до 0,08, а поднимается до 0,77. Натриевый путь закрывается, калиевый открыт, и мембрана реполяризуется. Следовая гиперполяризация доходит до -76,2 мВ, почти до , а к покою потенциал возвращается лишь к 23-й миллисекунде, пока медленно закрываются калиевые каналы.
Пиковая натриевая проводимость составила 31,6 мСм/см², около четверти от 120. Произведение никогда не приближается к единице: когда уже высока, успевает упасть.
Порога в уравнениях нет, он возникает сам. Для импульса 1 мс граница лежит около 7 мкА/см² (в расчёте 6,95): чуть слабее стимул затухает, чуть сильнее даёт полный импульс по принципу «всё или ничего», но с задержкой. Пик у самого порога приходится на 5,8 мс после начала стимула против 2,5 мс при 10 мкА/см².
Хаксли в 1952 году считал распространяющийся импульс вручную на механическом арифмометре, работа заняла около трёх недель. Расчётная скорость проведения получилась 18,8 м/с при измеренной 21,2 м/с, и такое совпадение убедило физиологов.
Рефрактерность и блокада каналов в модели
Рефрактерность в модель тоже не закладывали. После импульса остаётся низкой, а высокой, и новый стимул должен перебороть оба эффекта. В калькуляторе второй стимул 10 мкА/см² срабатывает, только если начинается не раньше чем через 15 мс после первого. Для 20 мкА/см² хватает 11 мс, для 40 мкА/см² 8 мс. Даже импульс 150 мкА/см², в 20 с лишним раз выше порога, не срабатывает раньше 5 мс. Так численно выглядит переход от абсолютной к относительной рефрактерности, подробнее о клиническом смысле периодов в статье про рефрактерный период.
Ползунки доступных каналов имитируют фармакологию. Уменьшение натриевой проводимости действует как тетродотоксин: при 80 % импульс ещё есть (пик 34,6 мВ), при 70 % стимул 10 мкА/см² его уже не вызывает. Уменьшение калиевой проводимости работает как тетраэтиламмоний. При 60 % и ниже покой теряет устойчивость, и модель начинает разряжаться сама. При нуле мембрана застревает около -0,6 мВ с инактивированными натриевыми каналами.
Нобелевская премия и наследники модели
В 1963 году Ходжкин и Хаксли получили Нобелевскую премию по физиологии и медицине вместе с Джоном Экклсом, изучавшим синапсы. Предсказания модели позже подтвердились на уровне молекул: в 1973 году Армстронг и Безанилья зарегистрировали воротные токи, то есть движение самих сенсоров напряжения, а метод пэтч-кламп Неера и Закмана (1976) показал открывание одиночных каналов.
Наследники модели идут в двух направлениях.
- Упрощение. Модель ФицХью-Нагумо (1961-1962) сводит четыре переменные к двум: быструю, которая объединяет и , и медленную переменную восстановления, заменяющую и . На фазовой плоскости с двумя переменными порог и циклы видны геометрически. Модель Морриса-Лекара (1981) делает то же для кальциевых импульсов.
- Уточнение. Марковские модели описывают канал дискретными состояниями «закрыт, открыт, инактивирован» с вероятностями переходов. Они отражают сопряжение инактивации с активацией, которое схема независимых частиц передать не может. Сердечные модели от Денниса Нобла (1962) до современных выросли из того же каркаса, пример в статье про фазу плато кардиомиоцита.
Частые ошибки
- Считать , и реальными белковыми частицами. Это феноменологические переменные, показатели степени подобраны по кривым тока.
- Смешивать знаки оригинала 1952 года с современной записью, где покой -65 мВ, а деполяризация положительна.
- Думать, что пик импульса равен . В модели пик +39 мВ при мВ.
- Задавать порог как отдельный параметр. В модели его нет, он зависит от длительности стимула и текущих и .
- Брать слишком крупный шаг Эйлера. около 0,24 мс, и шаг должен быть намного меньше, иначе пик искажается.
FAQ
Почему Ходжкин и Хаксли работали именно с аксоном кальмара? Его диаметр около 0,5 мм позволял ввести внутрь проволочные электроды и равномерно фиксировать потенциал по длине. На тонких аксонах позвоночных технике 1940-х годов это было недоступно.
Чем модель Ходжкина-Хаксли отличается от уравнения Голдмана-Ходжкина-Катца? Уравнение GHK даёт стационарный потенциал по проницаемостям и концентрациям. Модель Ходжкина-Хаксли описывает, как проводимости меняются во времени и как из этого складывается импульс.
Можно ли применять модель к нейронам человека? Каркас тот же, но параметры другие: больше типов каналов, включая кальциевые, температура 37 °C и свои кинетики. Модели нейронов коры строят по схеме Ходжкина-Хаксли с десятком ионных токов.
Коротко
Модель Ходжкина-Хаксли описывает мембрану как конденсатор с тремя параллельными проводимостями, а натриевый и калиевый пути задаёт воротными переменными , и с зависящими от напряжения скоростями. Параметры измерены методом фиксации потенциала на гигантском аксоне кальмара. Численное решение четырёх уравнений даёт пик около +39 мВ, следовую гиперполяризацию до -76 мВ, порог около 7 мкА/см² для импульса 1 мс и рефрактерность. Работа принесла Нобелевскую премию 1963 года и стала основой всех последующих моделей нейрона.
Читайте также
Локальный ответ и критический уровень деполяризации
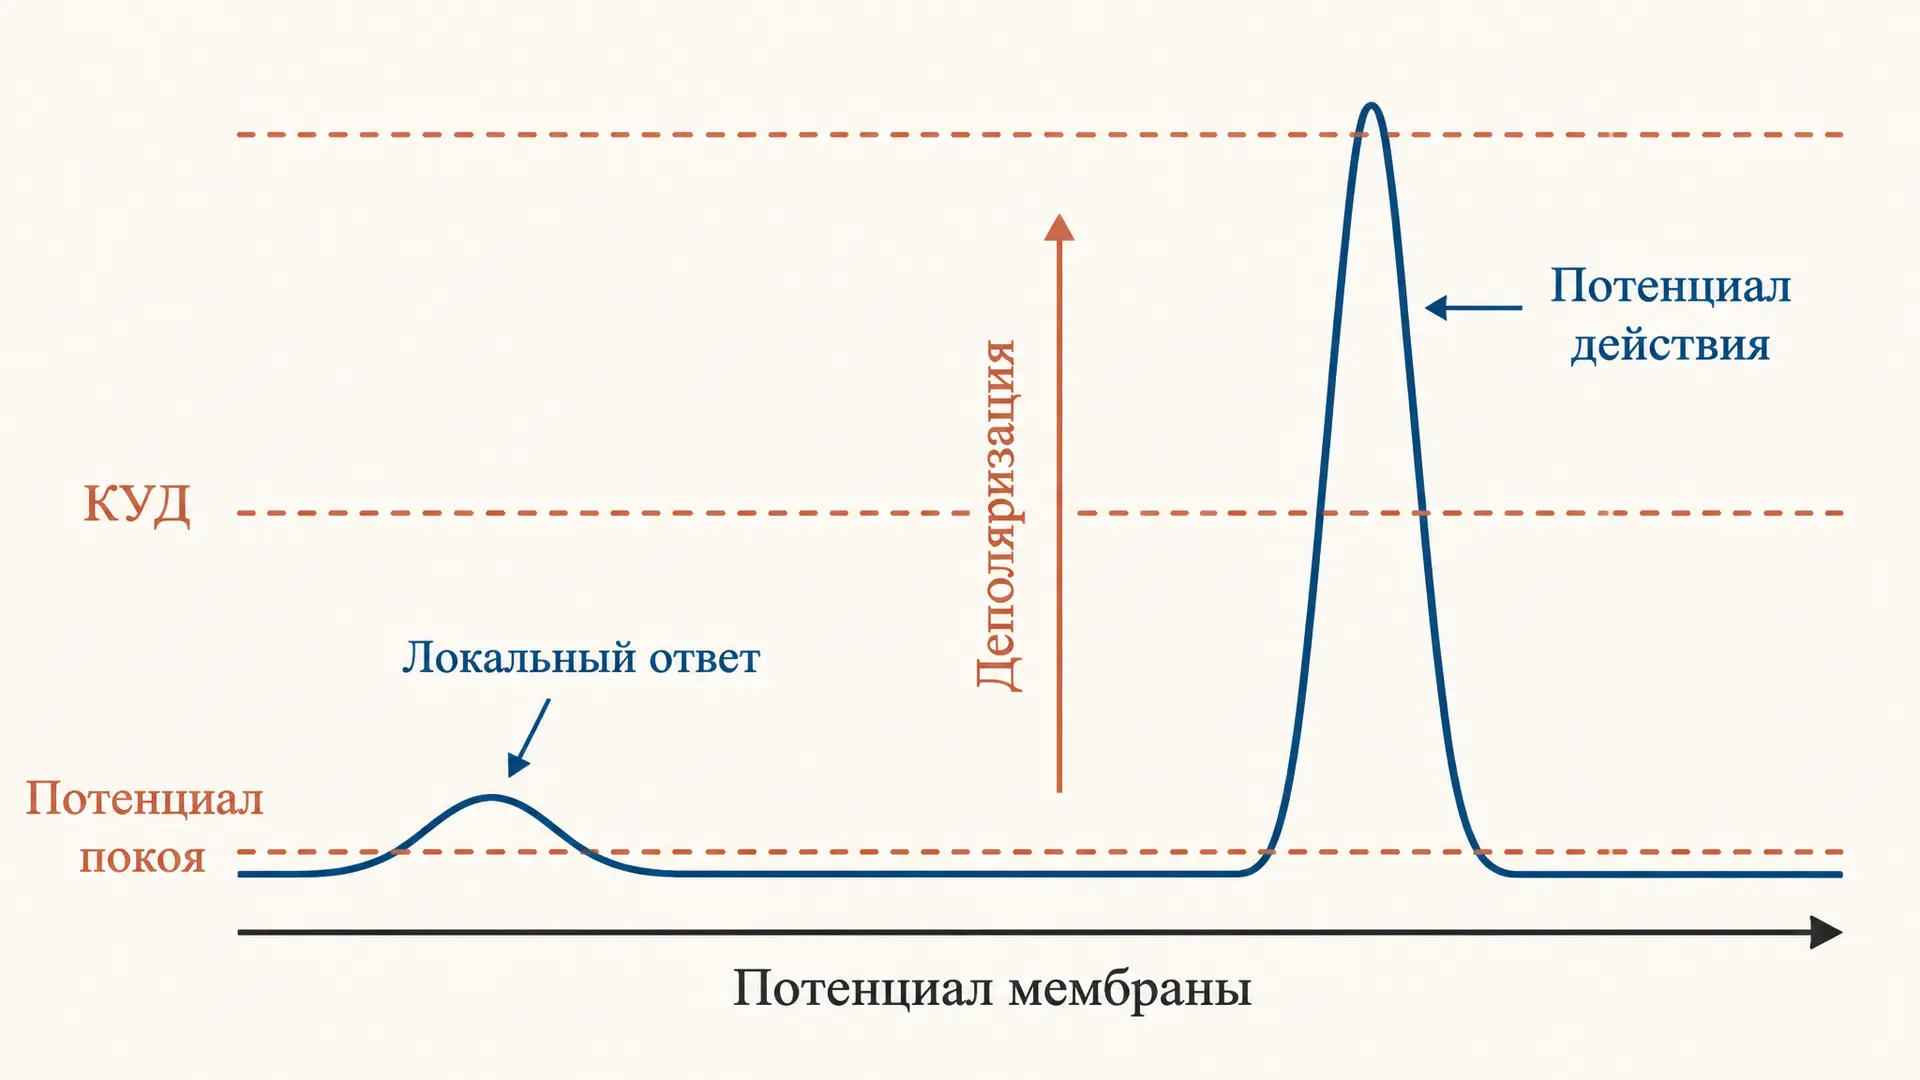
Что такое локальный ответ и критический уровень деполяризации, чем порог отличается от подпорогового сдвига, как считают КУД и почему возникает потенциал действия.
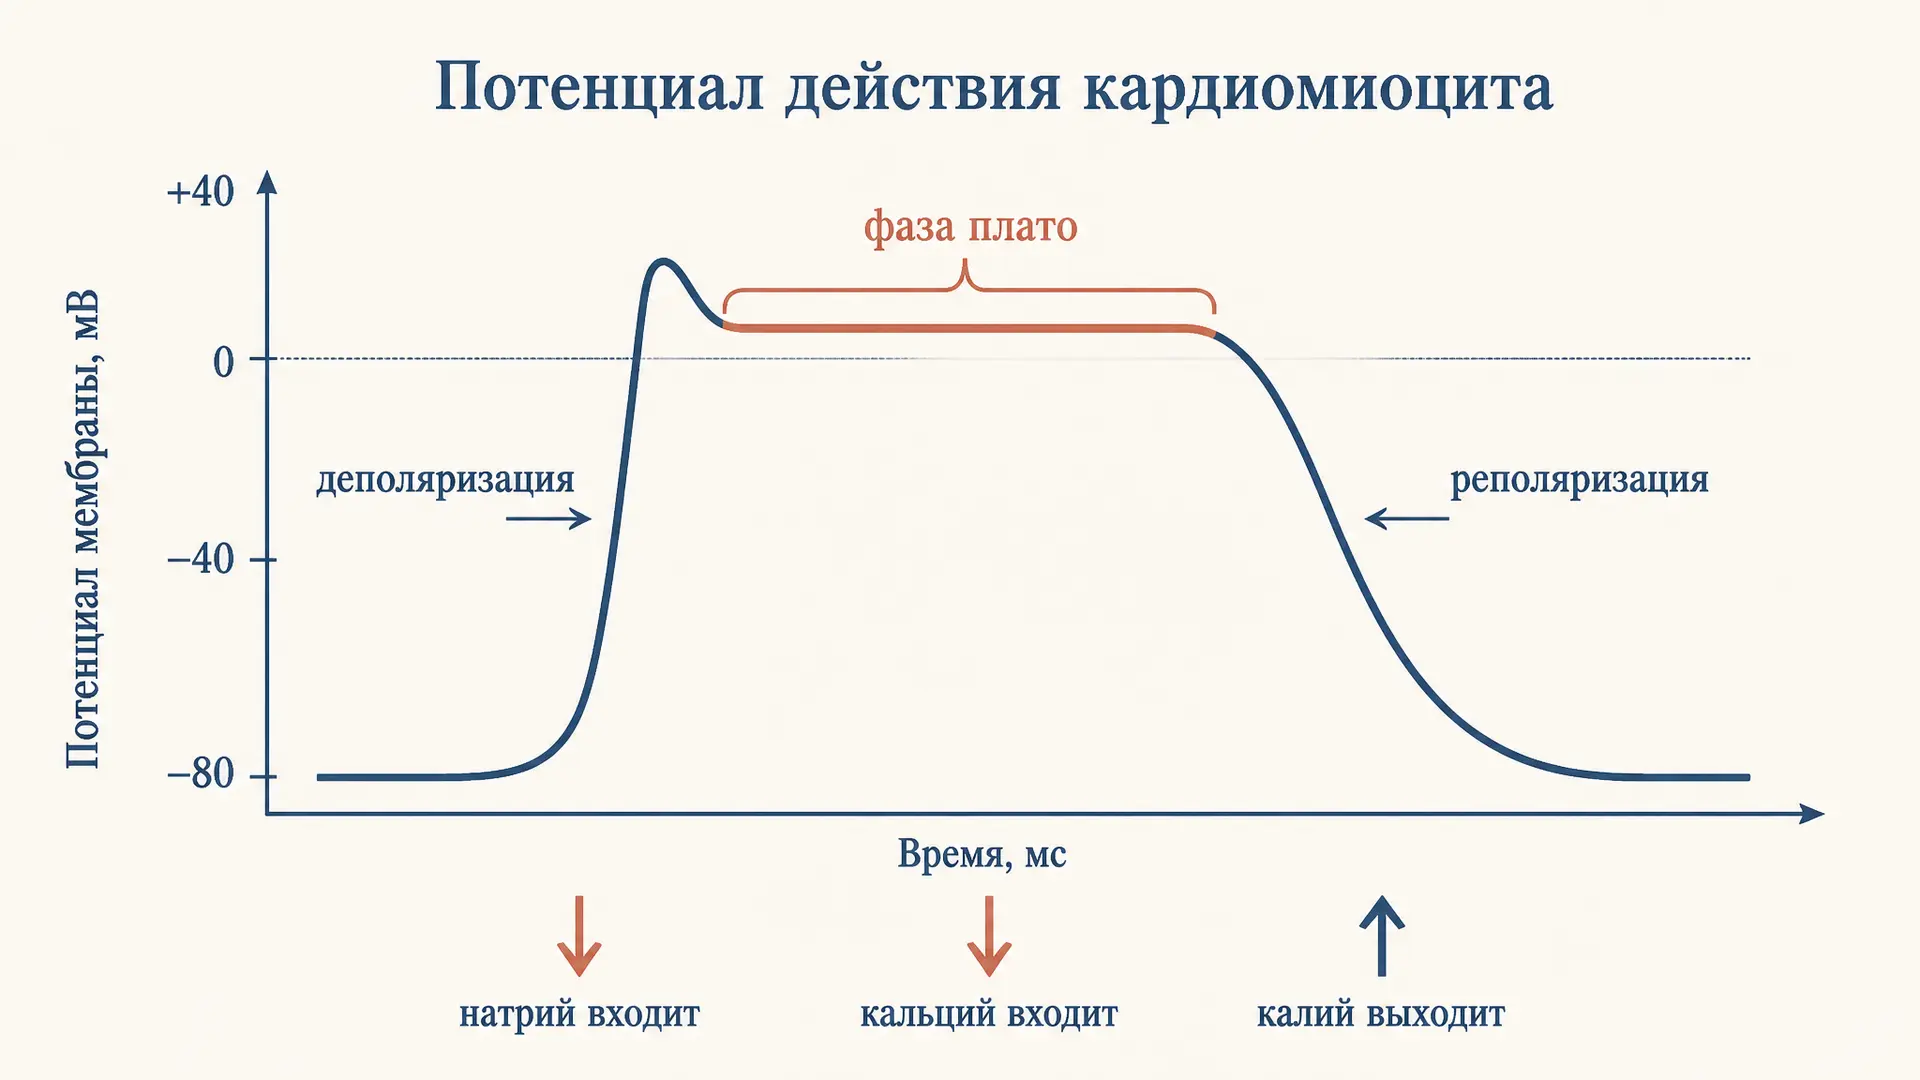
Потенциал действия кардиомиоцита: фаза плато
Разбор фазы плато в потенциале действия кардиомиоцита: какие ионные токи её держат, зачем нужно плато сердцу, чем оно отличается от нейрона и как решать задачи.
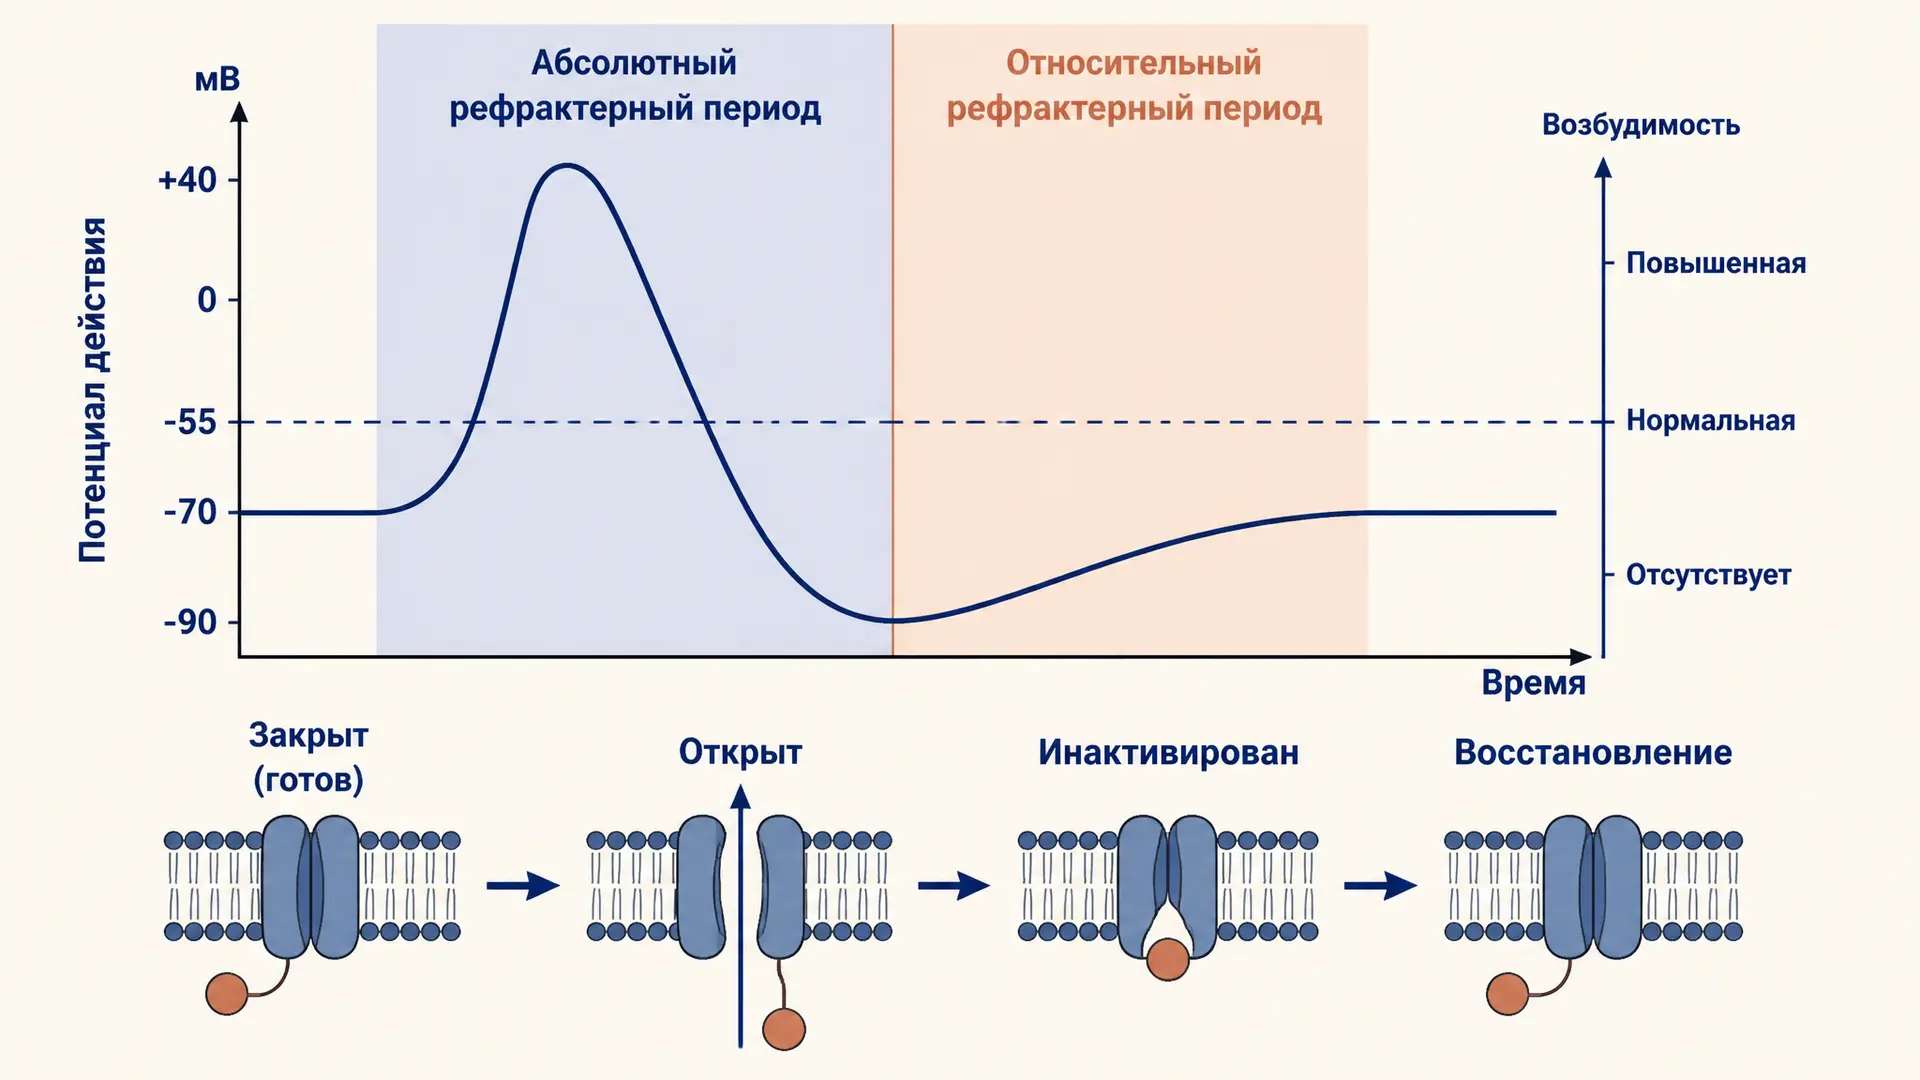
Рефрактерный период: абсолютный и относительный
Рефрактерный период абсолютный и относительный: механизм ионных каналов, длительность, отличия, роль в сердце и нейроне. Разбор с примерами и схемами.
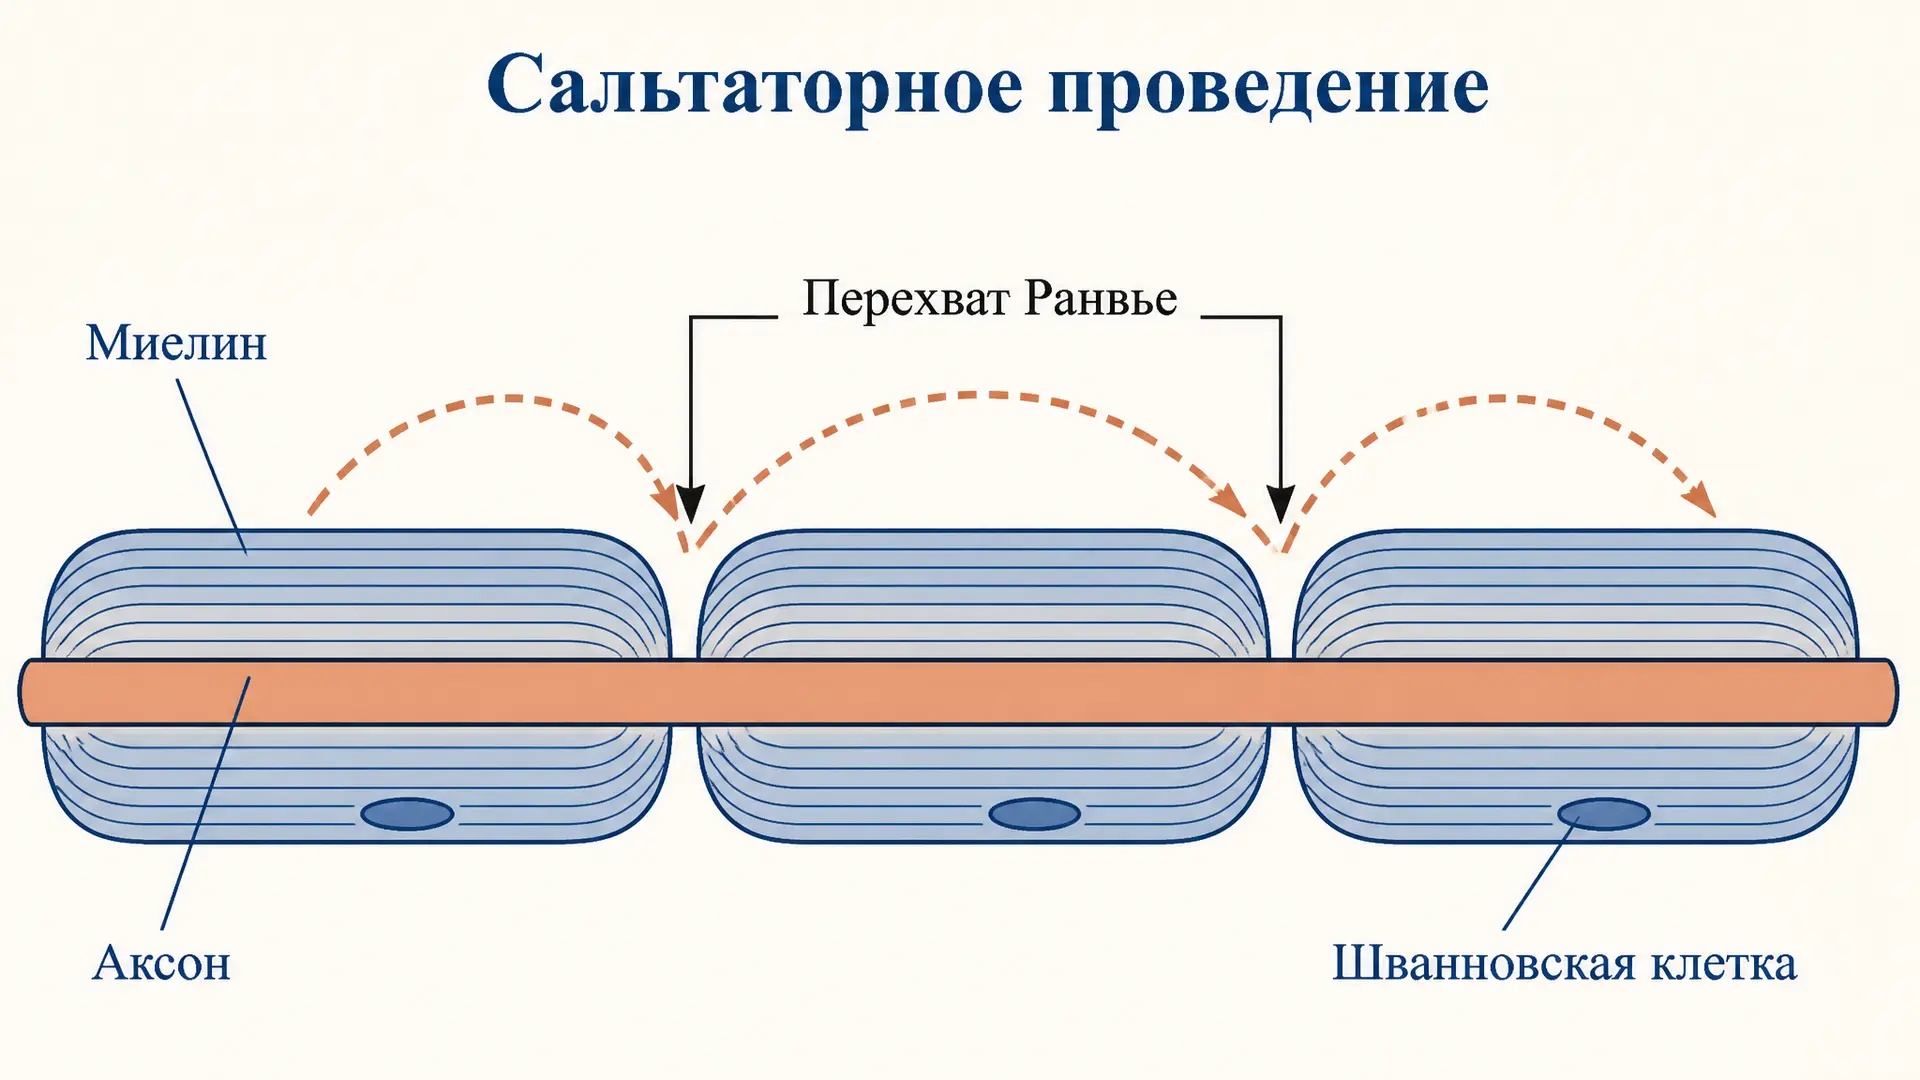
Сальтаторное проведение импульса: как миелин ускоряет нерв
Сальтаторное проведение импульса по миелинизированным волокнам: механизм перехвата Ранвье, роль миелина, скорость 70-120 м/с, отличие от безмиелинового волокна.
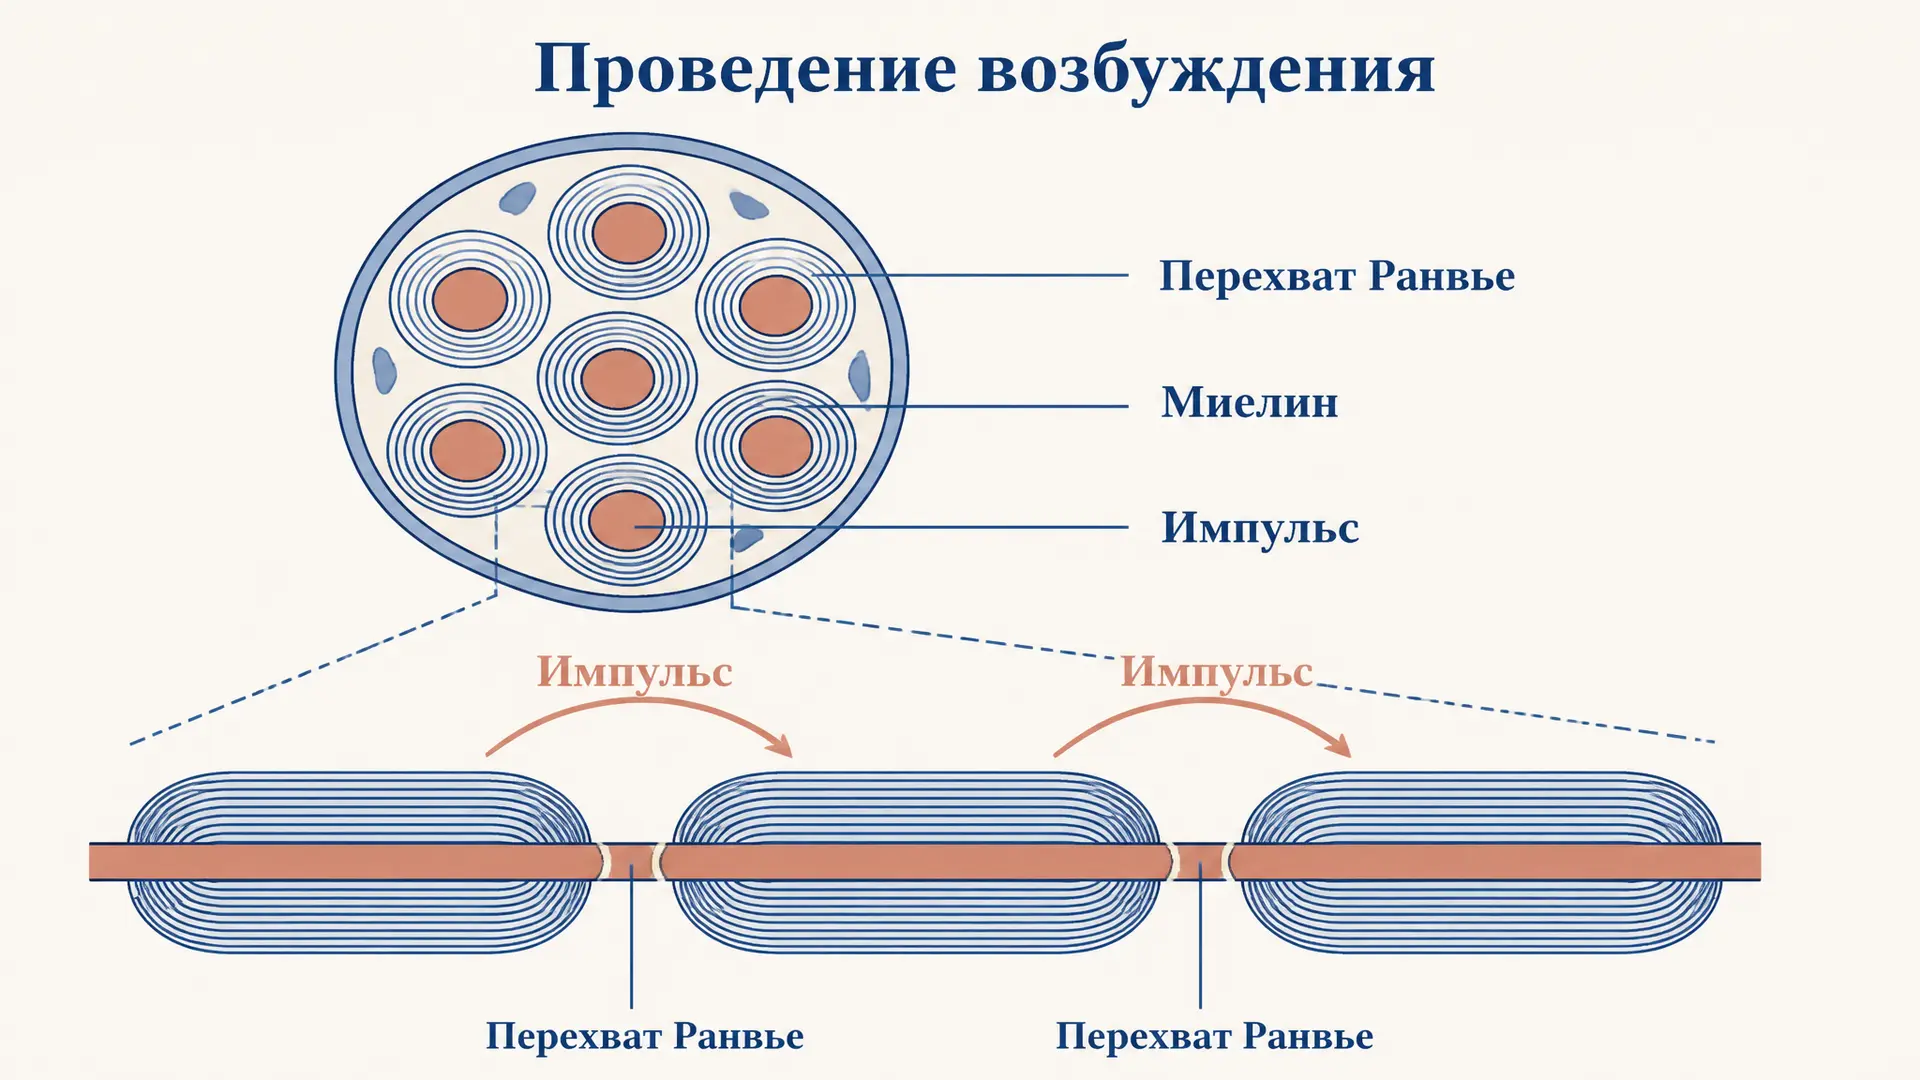
Законы проведения возбуждения по нервному волокну
Законы проведения возбуждения по нервному волокну: анатомическая целостность, двустороннее проведение, изолированность, нефатигабельность. Механизм и значение в физиологии.
Потенциал действия: фазы и ионные механизмы
Разбор фаз потенциала действия и ионных механизмов: покой, деполяризация, реполяризация, гиперполяризация, роль натриевых и калиевых каналов и насоса.