Ферроптоз: железозависимая гибель клетки
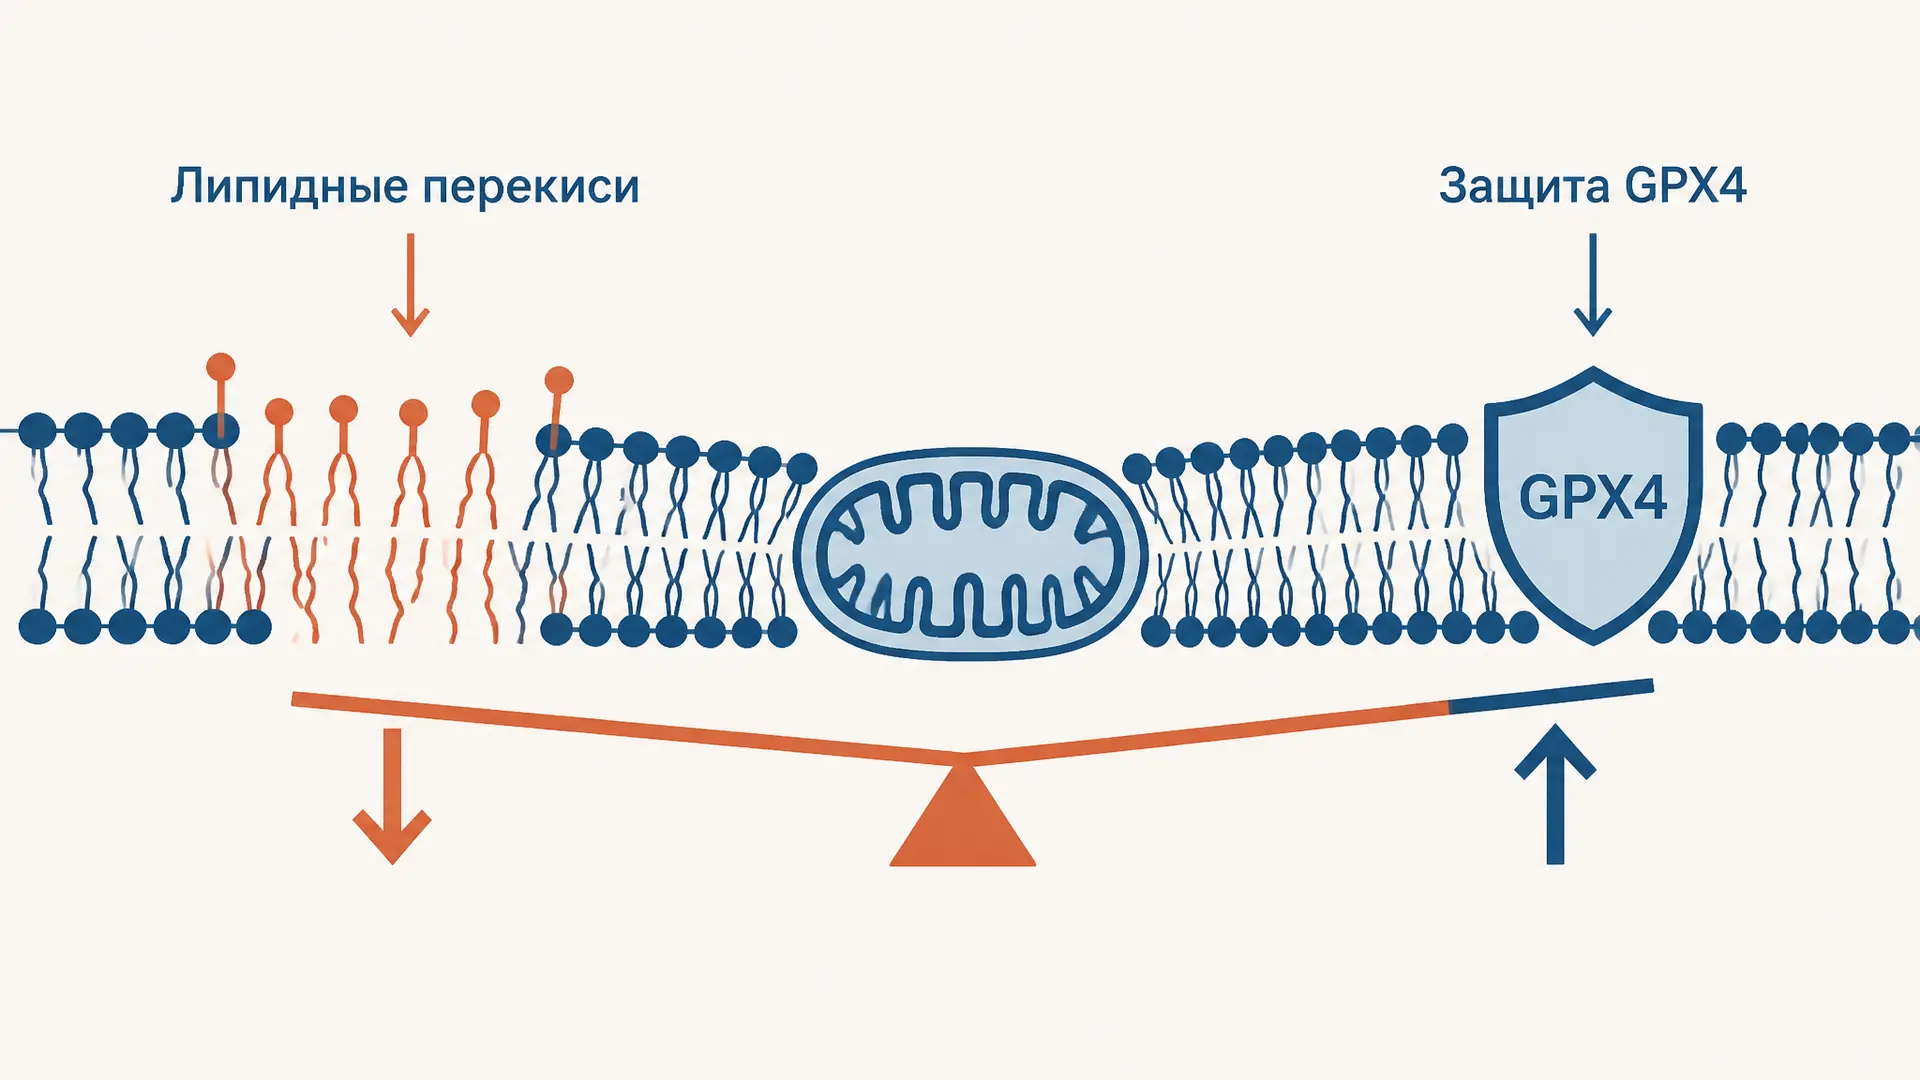
Ферроптоз - регулируемая гибель клетки, при которой критическим становится не повреждение ДНК и не разборка клетки на апоптотические тельца, а накопление перекисей мембранных липидов. Название предложили Скотт Диксон, Брент Стоквелл и соавторы в 2012 году: гибель зависела от железа и не была апоптозом в исходной работе. Удобная формула механизма такова: в мембране есть уязвимые полиненасыщенные фосфолипиды, железо ускоряет окислительные процессы, а защита GPX4 не успевает обезвредить перекиси. Ниже разберём эту цепочку, экспериментальные индукторы и то, почему ферроптоз интересен онкологии, но пока не является самостоятельным лечением.
Почему мишенью становятся фосфолипиды мембраны
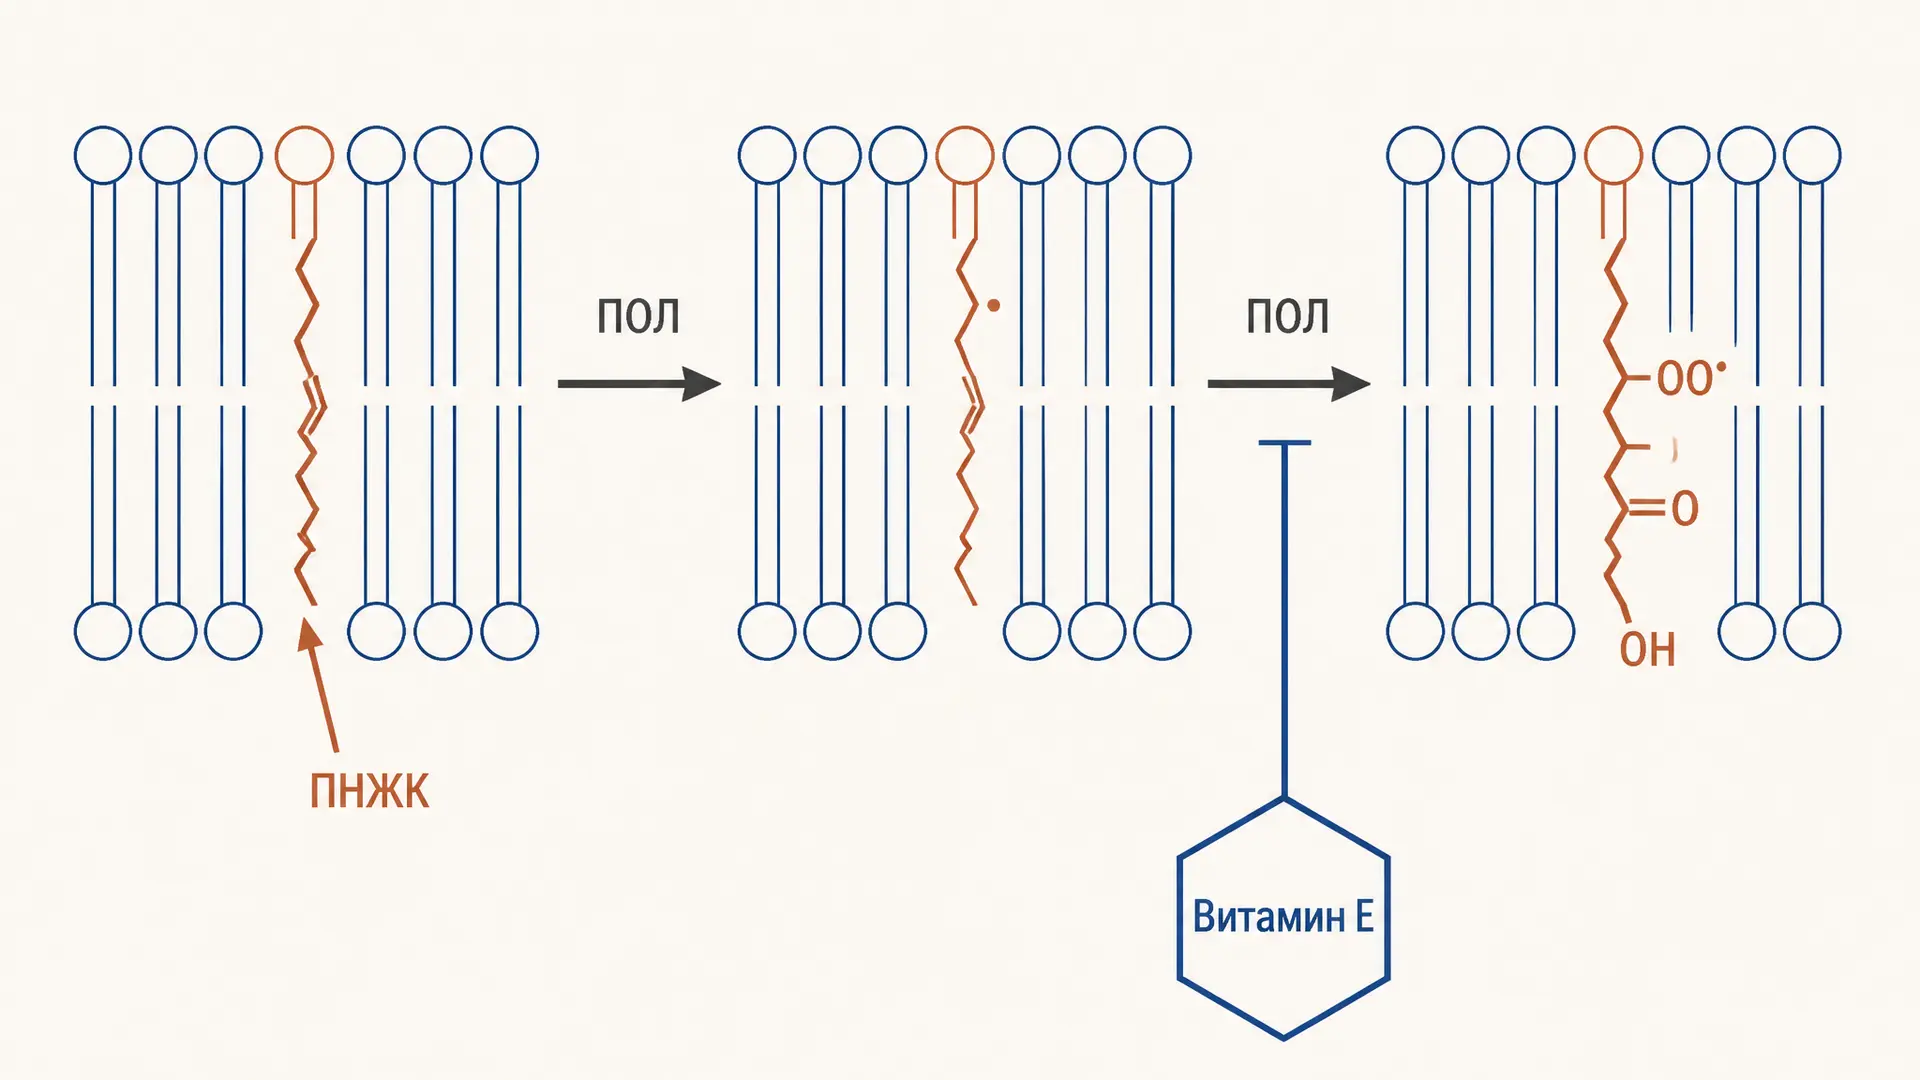
Липидный бислой - не однородная жировая плёнка. Его основу образуют фосфолипиды с полярной головкой и двумя гидрофобными хвостами; их строение полезно сначала сверить со структурной классификацией липидов. Особенно уязвимы хвосты полиненасыщенных жирных кислот: между двойными связями есть бис-аллильные атомы водорода, которые сравнительно легко отщепляются радикалом. Так появляется липидный радикал, он присоединяет кислород и запускает цепное образование липидных гидроперекисей.
Сама по себе небольшая окислительная модификация ещё не равна ферроптозу. Клетка постоянно ремонтирует мембраны и имеет несколько антиоксидантных контуров. Порог перехода к гибели достигается тогда, когда гидроперекиси фосфолипидов накапливаются быстрее, чем их удаётся восстановить. Мембрана теряет барьерную и организационную функцию, а повреждение распространяется на новые липидные молекулы. Поэтому ферроптоз точнее описывать как срыв контроля над липидными перекисями, а не как «смерть от любых АФК».
Железо: катализатор, а не единственная причина
Железо необходимо клетке для дыхательной цепи, ферментов и синтеза гема; его обычная биологическая роль разобрана в статье о геме и протопорфирине IX. Но лабильное двухвалентное железо способно участвовать в реакции Фентона:
Гидроксильный радикал очень реакционноспособен и может инициировать окисление липидов. Кроме того, железо нужно части ферментных и неферментных окислительных процессов, поддерживающих образование липидных перекисей. Отсюда важный экспериментальный признак: хелаторы железа, например дефероксамин, способны ослаблять ферроптоз в модельных системах. Это не означает, что избыток железа автоматически доказывает ферроптоз в ткани: нужно оценивать и липидное окисление, и работу защитных путей.
Клетка уменьшает риск, связывая железо с ферритином, экспортируя его или направляя в безопасные белковые комплексы. При распаде ферритина, изменении транспорта железа либо высоком окислительном фоне доля доступного железа может вырасти. Именно сочетание железа с уязвимыми липидами и недостаточной защитой делает систему опасной.
Ось система Xc−, глутатион и GPX4
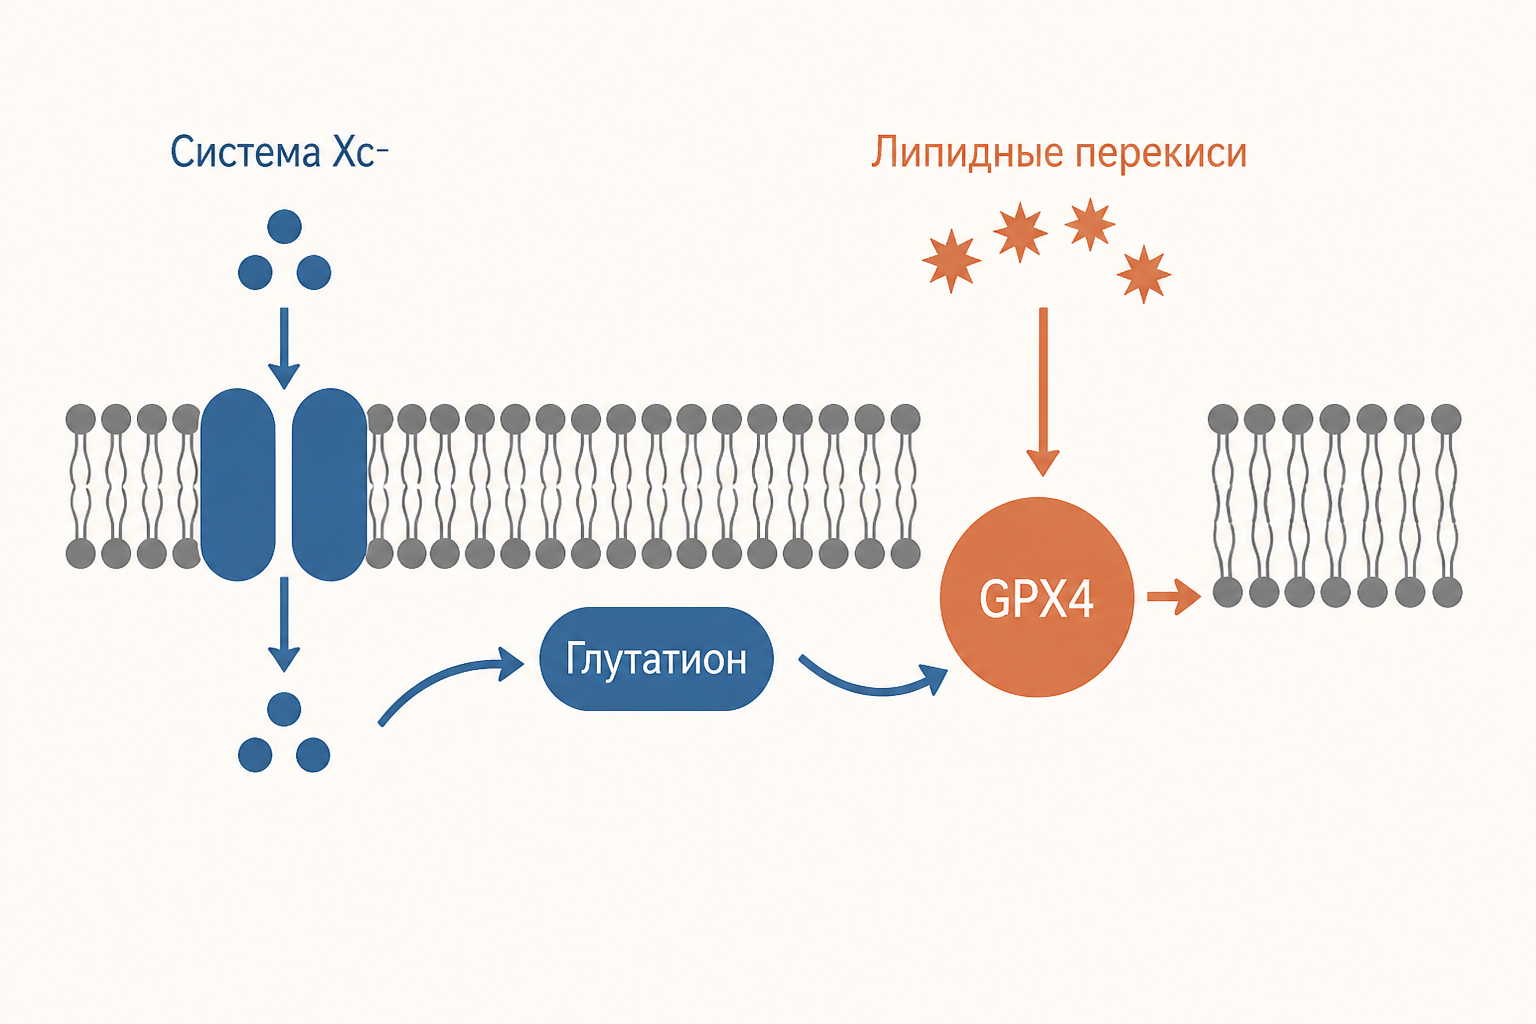
Главный учебный маршрут защиты начинается на плазматической мембране. Антипортер система Xc− обменивает внеклеточный цистин на внутриклеточный глутамат. После восстановления цистин даёт цистеин - ограничивающий компонент для синтеза глутатиона (GSH). Глутатионпероксидаза 4, или GPX4, использует GSH как восстановитель и превращает липидные гидроперекиси в менее опасные липидные спирты:
Если система Xc− не поставляет достаточно цистина, запас GSH падает. Если не работает GPX4, даже сохранный GSH уже не решает именно задачу восстановления мембранных перекисей. Оба пути сходятся в одной точке: растёт уровень окисленных фосфолипидов. Роль этой оси и её связь с железом подтверждены в обзоре Iron Metabolism in Ferroptosis.
Важно не делать GPX4 единственным «выключателем». В клетках работают и другие защитные сети, включая систему FSP1 с коэнзимом Q, а чувствительность меняют состав мембран, доступность железа и метаболизм. Поэтому один маркер, например низкий GSH, сам по себе не идентифицирует тип гибели.
Эрастин и RSL3: два способа сдвинуть баланс
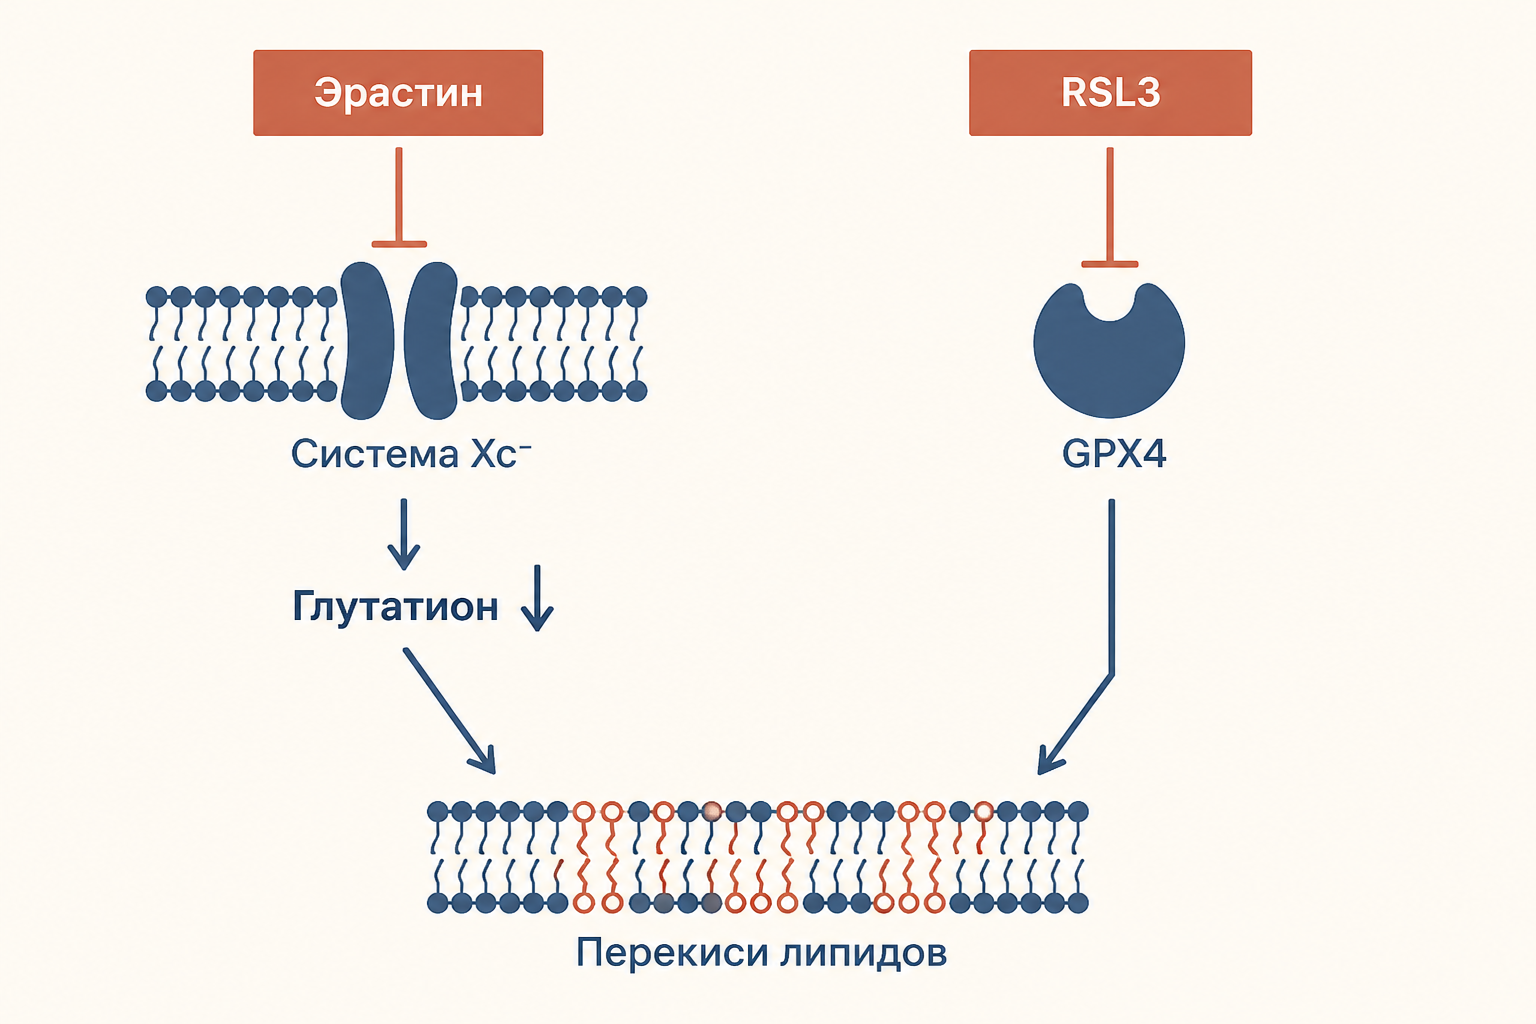
В лаборатории ферроптоз часто вызывают малыми молекулами. Эрастин относят к классическим индукторам, потому что он подавляет систему Xc−: меньше поступает цистина, уменьшается синтез GSH, а затем страдает функция GPX4. Это косвенный путь к накоплению липидных перекисей.
RSL3 действует иначе: он непосредственно ингибирует GPX4. Здесь транспорт цистина не обязательно блокирован, но ключевой фермент ремонта перекисей выключен. Сравнение этих веществ помогает не путать узлы схемы: эрастин бьёт по обеспечению восстановителя, RSL3 - по ферменту, который этот восстановитель использует. В обоих случаях исследователь ожидает железозависимое усиление липидного окисления, но окончательный вывод требует контрольных ингибиторов и нескольких признаков, а не только названия добавленного вещества.
Чем тормозят ферроптоз в эксперименте
Ингибиторы работают на разных уровнях. Ферростатин-1 и липроксстатин-1 - радикал-перехватывающие антиоксиданты: они обрывают цепное распространение липидного окисления. Хелаторы, такие как дефероксамин, уменьшают доступность железа для реакций, поддерживающих повреждение. Третий логичный подход - сохранить ось GSH-GPX4, если причина известна и этот путь ещё можно поддержать.
Такие вещества - прежде всего инструменты для экспериментов, а не универсальные препараты для человека. Их применяют, чтобы проверить гипотезу: если гибель ослабляет и хелатор железа, и ловушка липидных радикалов, ферроптоз становится более вероятным объяснением. Обзор механизмов ингибиторов отдельно подчёркивает различие между снижением доступного железа и подавлением перекисного повреждения в статье PubMed.
Морфология: что увидит исследователь
При электронной микроскопии для ферроптоза описывают уменьшенные митохондрии с более плотными мембранами и уменьшенными либо исчезающими кристами. Это полезный ориентир, но не «фотография-диагноз»: форма митохондрий меняется и при других стрессах. Ядро при ферроптозе обычно не демонстрирует картину конденсации хроматина, типичную для апоптоза, а плазматическая мембрана на финальных этапах утрачивает целостность.
Надёжный вывод строят из набора наблюдений: есть ли липидные перекиси, зависит ли эффект от железа, спасают ли клетки ферростатин или липроксстатин, как меняется GPX4. Морфология дополняет этот набор, но не заменяет его.
| Признак | Ферроптоз | Апоптоз |
|---|---|---|
| Основной повреждающий процесс | Накопление перекисей фосфолипидов | Каспазный каскад и упорядоченная разборка клетки |
| Роль железа | Существенна для характерной чувствительности | Не является определяющим признаком |
| Ключевая защита | GSH-зависимая GPX4 и ловушки липидных радикалов | Антиапоптотические белки и регуляция каспаз |
| Митохондрии | Часто уменьшены, кристы редуцированы | Возможна наружномембранная проницаемость, но это другой механизм |
| Ядро и клеточные фрагменты | Нет типичной апоптотической фрагментации | Конденсация хроматина, апоптотические тельца |
Болезни и противоопухолевая идея
Ферроптоз изучают в связи с ишемическим повреждением органов, нейродегенерацией, заболеваниями печени и почек, а также раком. Связь не означает, что один и тот же процесс полностью объясняет болезнь: в тканях одновременно действуют воспаление, иммунный ответ, сосудистые и метаболические факторы. Поэтому корректнее говорить о потенциальном вкладе ферроптоза и проверять его в каждой модели отдельно.
В онкологии идея особенно привлекательна: часть опухолевых клеток может быть уязвима к нарушению липидной антиоксидантной защиты, в том числе при устойчивости к некоторым стандартным воздействиям. Эрастиноподобная блокада Xc−, прямое подавление GPX4 и изменение обмена железа рассматриваются как исследовательские стратегии. Но избирательно поразить опухоль, не повредив нормальные ткани, трудно; данные клеточных культур и животных не превращаются автоматически в клиническую рекомендацию. Для понимания мембранного контекста полезно сопоставить это с синтезом фосфолипидов: меняя состав мембраны, клетка меняет и уязвимость к окислению.
Как отличить механизм в учебной задаче
Если в условии одновременно названы блокада SLC7A11 или системы Xc−, истощение GSH и накопление липидных перекисей, стройте цепочку от транспорта цистина к GPX4. Если указан RSL3, начинайте прямо с ингибирования GPX4. Добавление ферростатина-1, липроксстатина-1 либо хелатора железа как спасающее воздействие поддерживает гипотезу о ферроптозе. А вот «повышенные АФК» без уточнения липидов, железа и фармакологических контролей - слишком общий признак.
Частые ошибки
- Считать ферроптоз разновидностью апоптоза. Это разные регулируемые формы гибели с разными ведущими механизмами и морфологическими признаками.
- Приписывать эрастину прямое ингибирование GPX4. Он действует выше по цепи, через систему Xc− и доступность цистина для GSH.
- Считать любое железо токсичным. Железо жизненно необходимо; риск создаёт его доступная редокс-активная фракция в конкретном контексте.
- Диагностировать ферроптоз только по сморщенным митохондриям. Нужны биохимические и фармакологические контроли.
FAQ
Ферроптоз - это некроз? В финале мембрана теряет целостность, поэтому его иногда относят к регулируемой некротической гибели. Но механизм не сводится к неспецифическому некрозу: он определяется железозависимым липидным окислением и защитой GPX4.
Можно ли вызвать ферроптоз избытком перекиси водорода? Нет надёжного универсального правила. Перекись может вызвать разные виды окислительного повреждения; для ферроптоза важны липидные перекиси, доступность железа и недостаточность защитных систем.
Применяют ли ферростатин-1 для лечения? Это распространённый исследовательский ингибитор. Его наличие в эксперименте не означает одобренного клинического применения.
Коротко
Ферроптоз - железозависимая регулируемая гибель клетки из-за некомпенсированного окисления полиненасыщенных фосфолипидов. Система Xc− обеспечивает цистин для GSH, а GPX4 с помощью GSH восстанавливает липидные гидроперекиси. Эрастин подрывает этот маршрут косвенно, RSL3 блокирует GPX4 напрямую; ферростатин, липроксстатин и хелаторы железа помогают проверить механизм в эксперименте. Связь с болезнями и раком перспективна, но требует осторожного перехода от модели к клинике.
Читайте также
Перекисное окисление липидов: цепная реакция
Перекисное окисление липидов: как запускается и распространяется цепная реакция, что делают железо и витамин E, откуда берутся МДА и 4-ГНЕ и как меняются мембраны.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
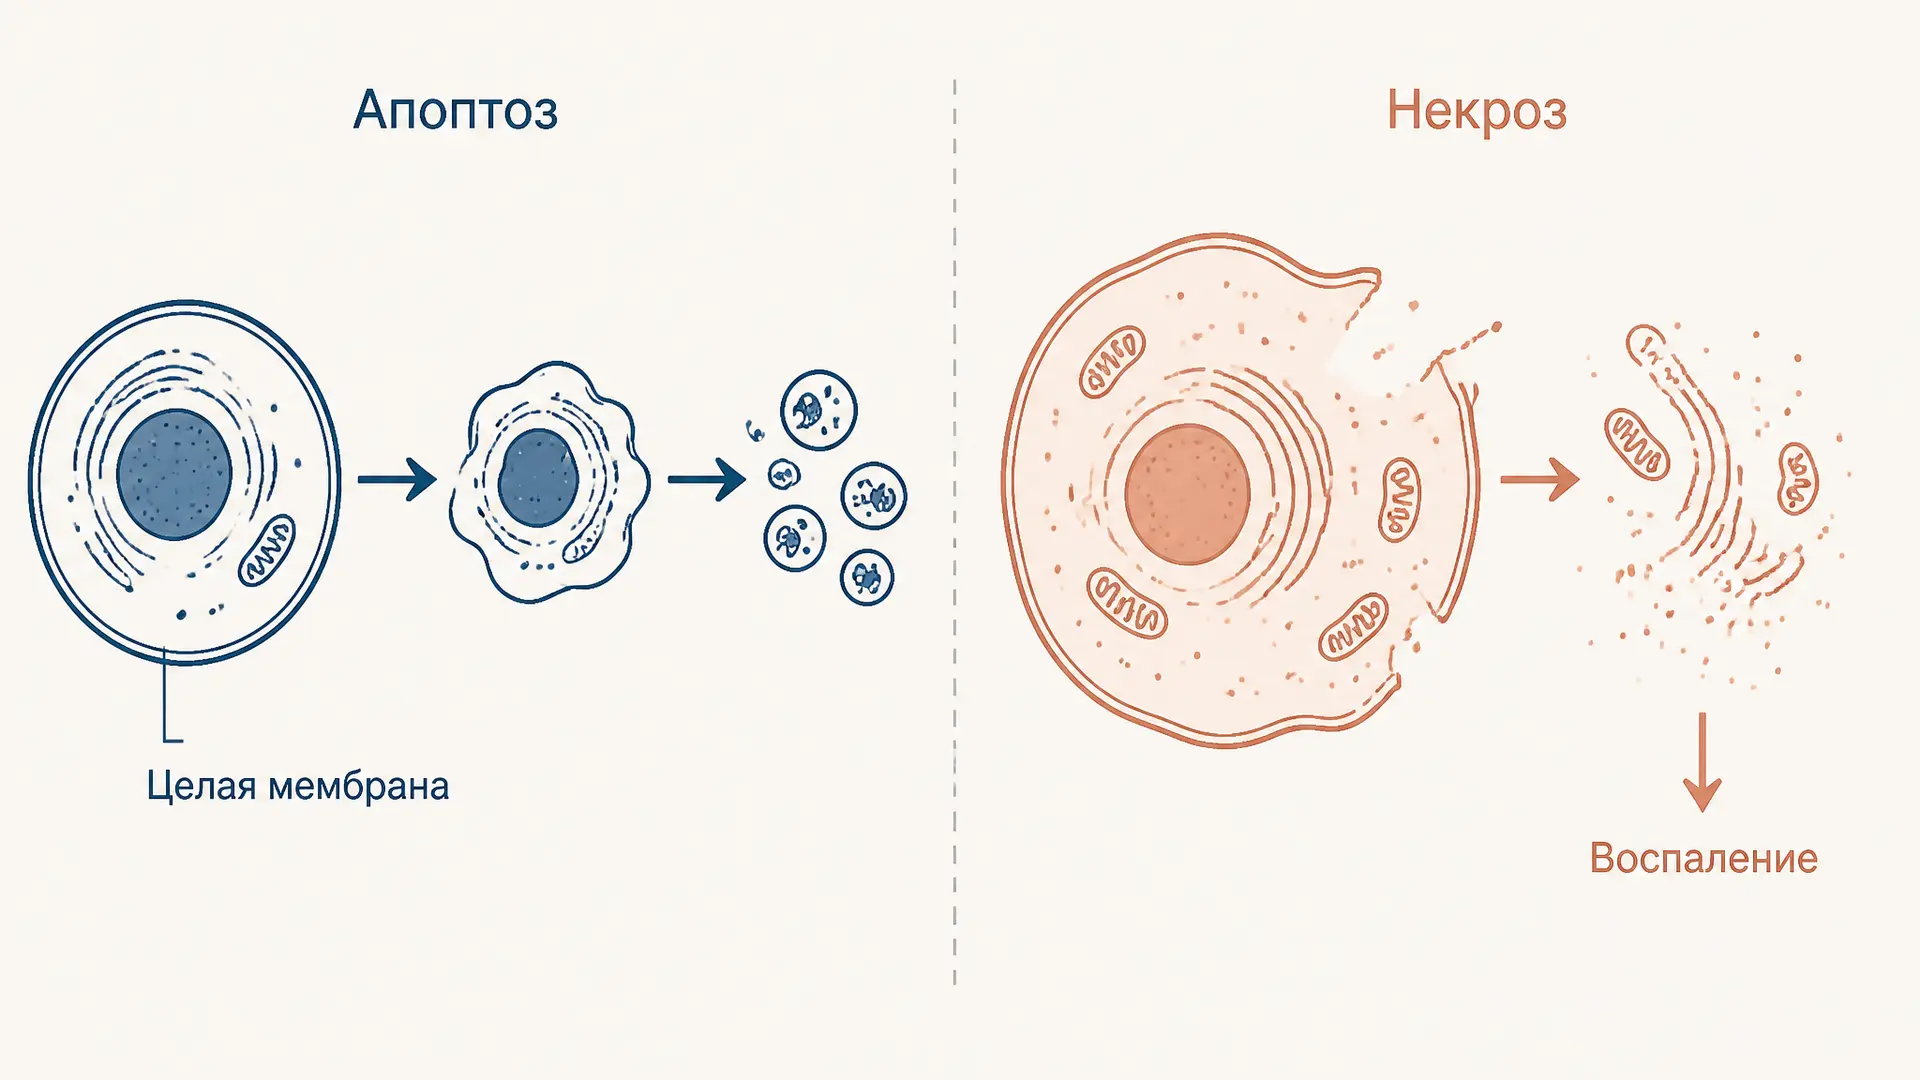
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.