Строение пептидной связи: планарность и свойства
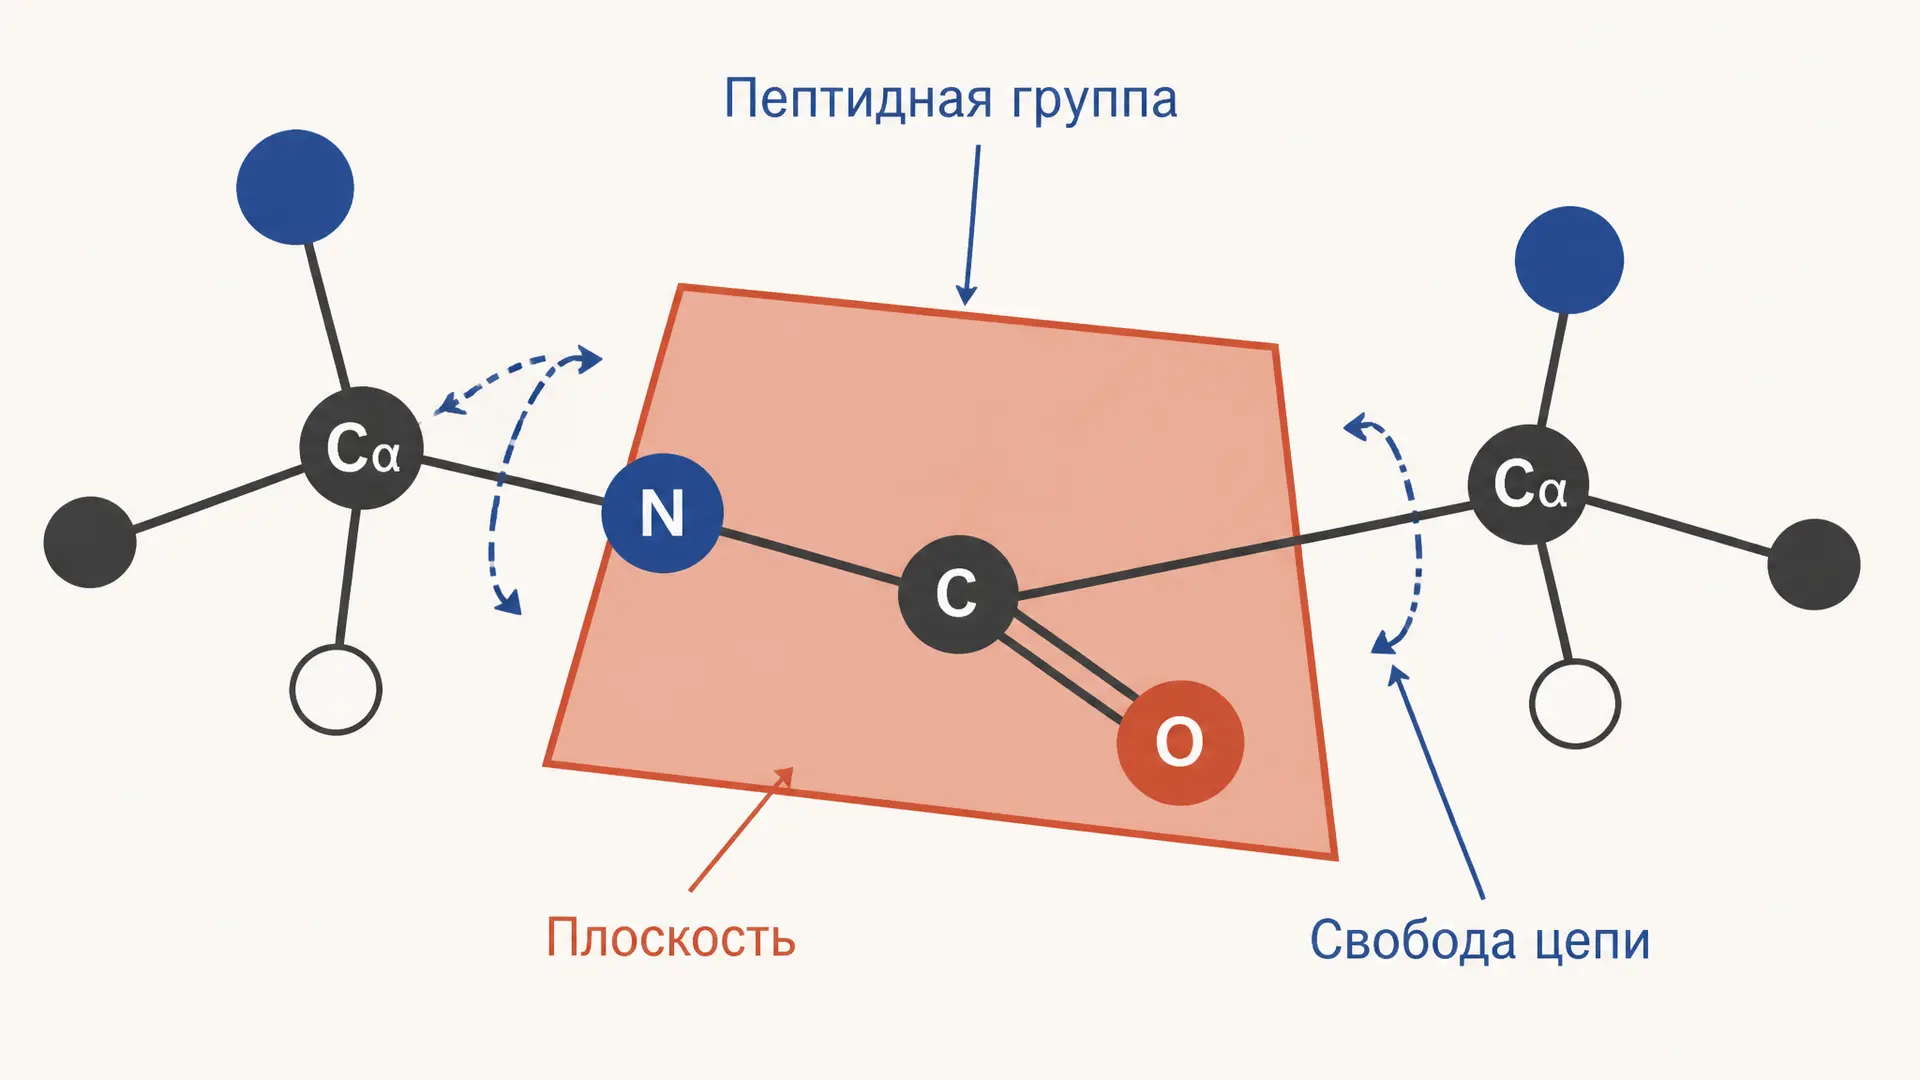
Пептидная связь кажется простой: это фрагмент , который соединяет аминокислотные остатки в цепь. Но именно его электронное строение задаёт жёсткое правило для белка: группа почти плоская, вокруг связи C–N нельзя свободно вращаться, а форма всей цепи складывается только из поворотов по соседним связям. Поэтому вопрос о пептидной связи нужен не только для записи реакции образования дипептида. Он объясняет, почему белок вообще может образовать спираль, складчатый слой или компактную глобулу.
Ниже можно выбрать нужный аспект и получить план разбора. Сначала отделим саму пептидную связь от боковых радикалов аминокислот: радикалы важны для свойств белка, но не входят в её основной химический каркас.
Как образуется пептидная связь
У альфа-аминокислоты есть карбоксильная группа и аминогруппа . Карбоксильная группа одной молекулы реагирует с аминогруппой другой: от первой отщепляется , от второй - H, а из них образуется вода. Между карбонильным углеродом и азотом возникает ковалентная амидная, или пептидная, связь:
Такую реакцию называют конденсацией или дегидратационным синтезом. В клетке белок не собирается простым смешиванием аминокислот в воде: образование связи на рибосоме требует активации аминокислоты и энергии. Однако приведённая схема правильно показывает, какие группы соединяются и почему у цепи остаются два разных конца. На N-конце сохраняется свободная аминогруппа, на C-конце - свободная карбоксильная группа. Подробнее о том, как последовательность появляется при трансляции, читайте в статье «Биосинтез белка: этапы от гена до готовой цепи».
Каждая включённая в цепь аминокислота называется остатком: она уже потеряла H или OH при образовании связи. Не следует называть пептидной связью любую связь между аминокислотами в растворе: это конкретная связь C–N в группе . Свойства самих исходных аминокислот, включая заряд и цвиттер-ионную форму, разобраны в материале об амфотерности аминокислот.
Почему C–N ведёт себя не как обычная одинарная связь
У азота есть неподелённая электронная пара, а рядом находится карбонильная группа . Эти электроны делокализуются по системе O–C–N: наряду с обычной записью вклад даёт предельная структура с отрицательным зарядом на кислороде и положительным на азоте. Это явление называют резонансом.
Следствие резонанса - частично двойной характер связи C–N. Её длина в пептидной группе около 1,32 Å, тогда как для обычной одинарной C–N приводят примерно 1,47 Å. Это не означает, что связь буквально попеременно становится одинарной и двойной: реальное распределение электронов одно и промежуточно между этими предельными формами. Экспериментальная геометрия и её связь с резонансом подробно описаны в обзоре пептидных связей.
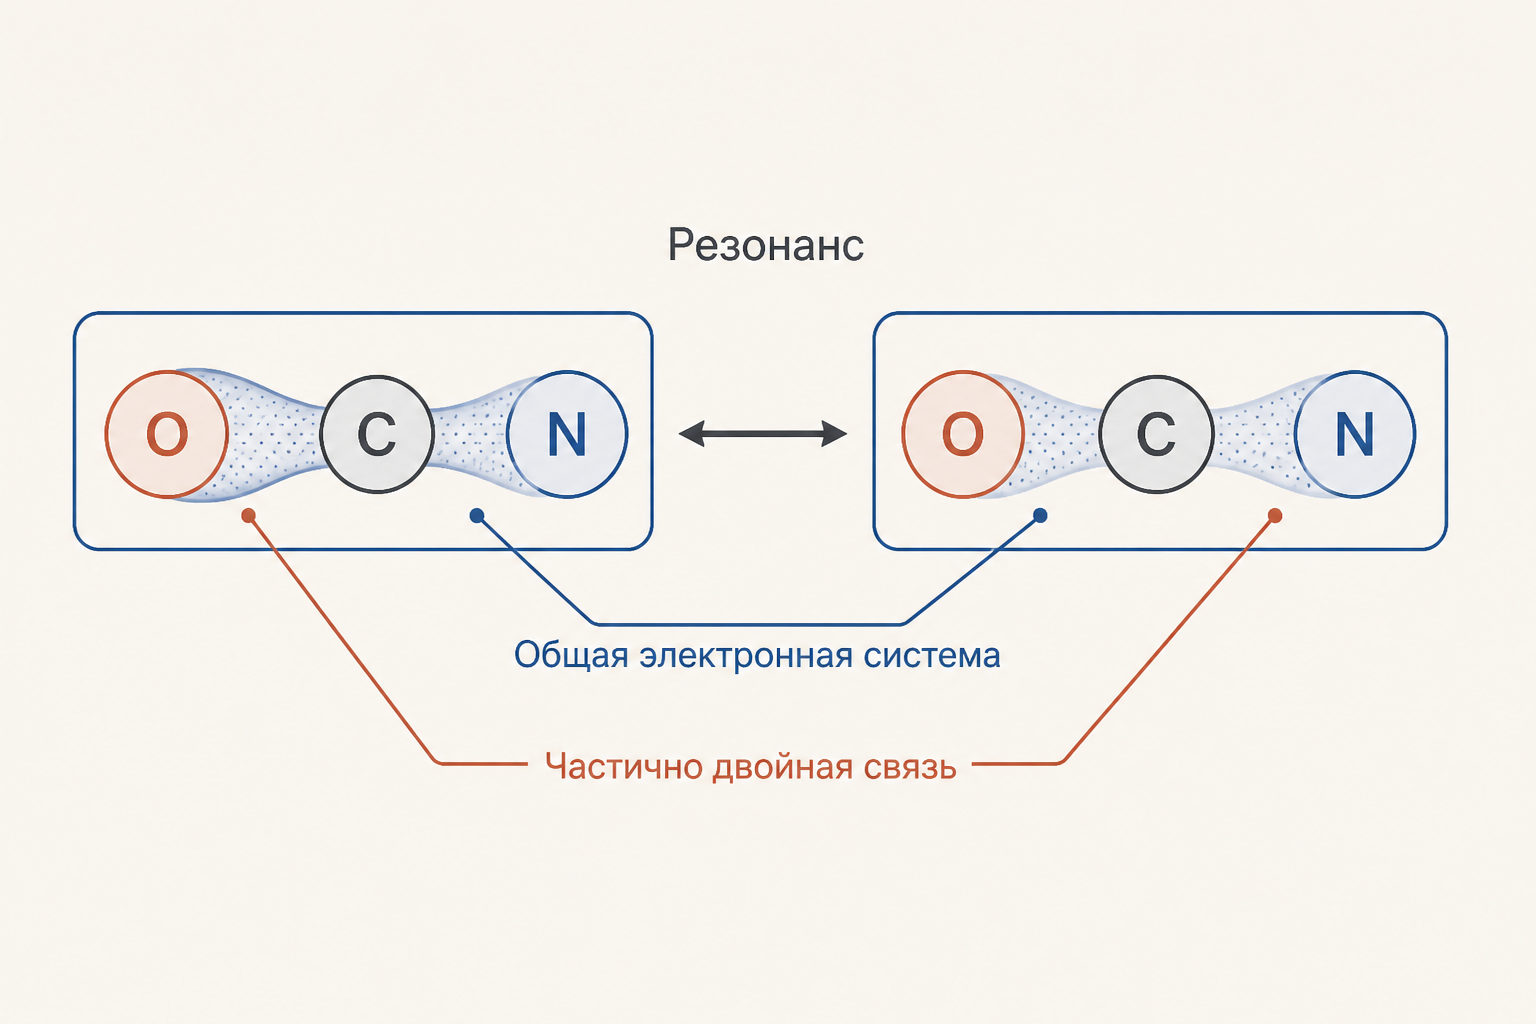
Из-за частично двойного характера вращение вокруг C–N энергетически невыгодно. Шесть атомов пептидной группы - и O - располагаются почти в одной плоскости. Важно не перепутать эту планарность с жёсткостью всего белка: плоская именно отдельная пептидная группа, а цепь всё ещё способна менять форму за счёт соседних одинарных связей.
Транс-конфигурация и особый случай пролина
Плоскость пептидной группы может иметь две основные конфигурации. Её описывают двугранным углом : при транс-форме он близок к , при цис-форме - к . В транс-конфигурации два соседних и крупные радикалы находятся по разные стороны плоскости; стерическое отталкивание меньше. Поэтому подавляющее большинство обычных пептидных связей в белках транс. Для связей, не содержащих пролин, доля транс-формы превышает 99,5 % по данным структурного анализа.
Связь Xaa–Pro - заметное исключение, но не правило «пролин всегда цис». Боковая цепь пролина замыкается на его атоме азота; различие энергий между цис- и транс-формой поэтому меньше. Цис-форма перед пролином встречается существенно чаще, чем перед другими остатками, и может быть важна для поворотов цепи. Всё же транс-вариант для Xaa–Pro также преобладает. Медленное взаимное превращение форм иногда ограничивает скорость сворачивания белка; эту тему удобно связать со статьёй о фолдинге белка и шаперонах.
Углы φ и ψ: где цепь действительно поворачивает
Если почти фиксирован, остаются два главных угла вращения для каждого аминокислотного остатка. Угол задаёт поворот вокруг связи N–, а - вокруг связи . Их нельзя выбирать произвольно: при многих сочетаниях атомы и радикалы наложились бы друг на друга.
Карта Рамачандрана показывает разрешённые сочетания и . Это не «карта белка» и не результат одного опыта, а графическое правило стерических ограничений: плотные области соответствуют часто допустимым наборам углов. Разные области характерны, например, для правой альфа-спирали и бета-слоя. Пролин из-за кольца особенно ограничен по углу , а глицин, напротив, допускает больше положений благодаря малому радикалу H.
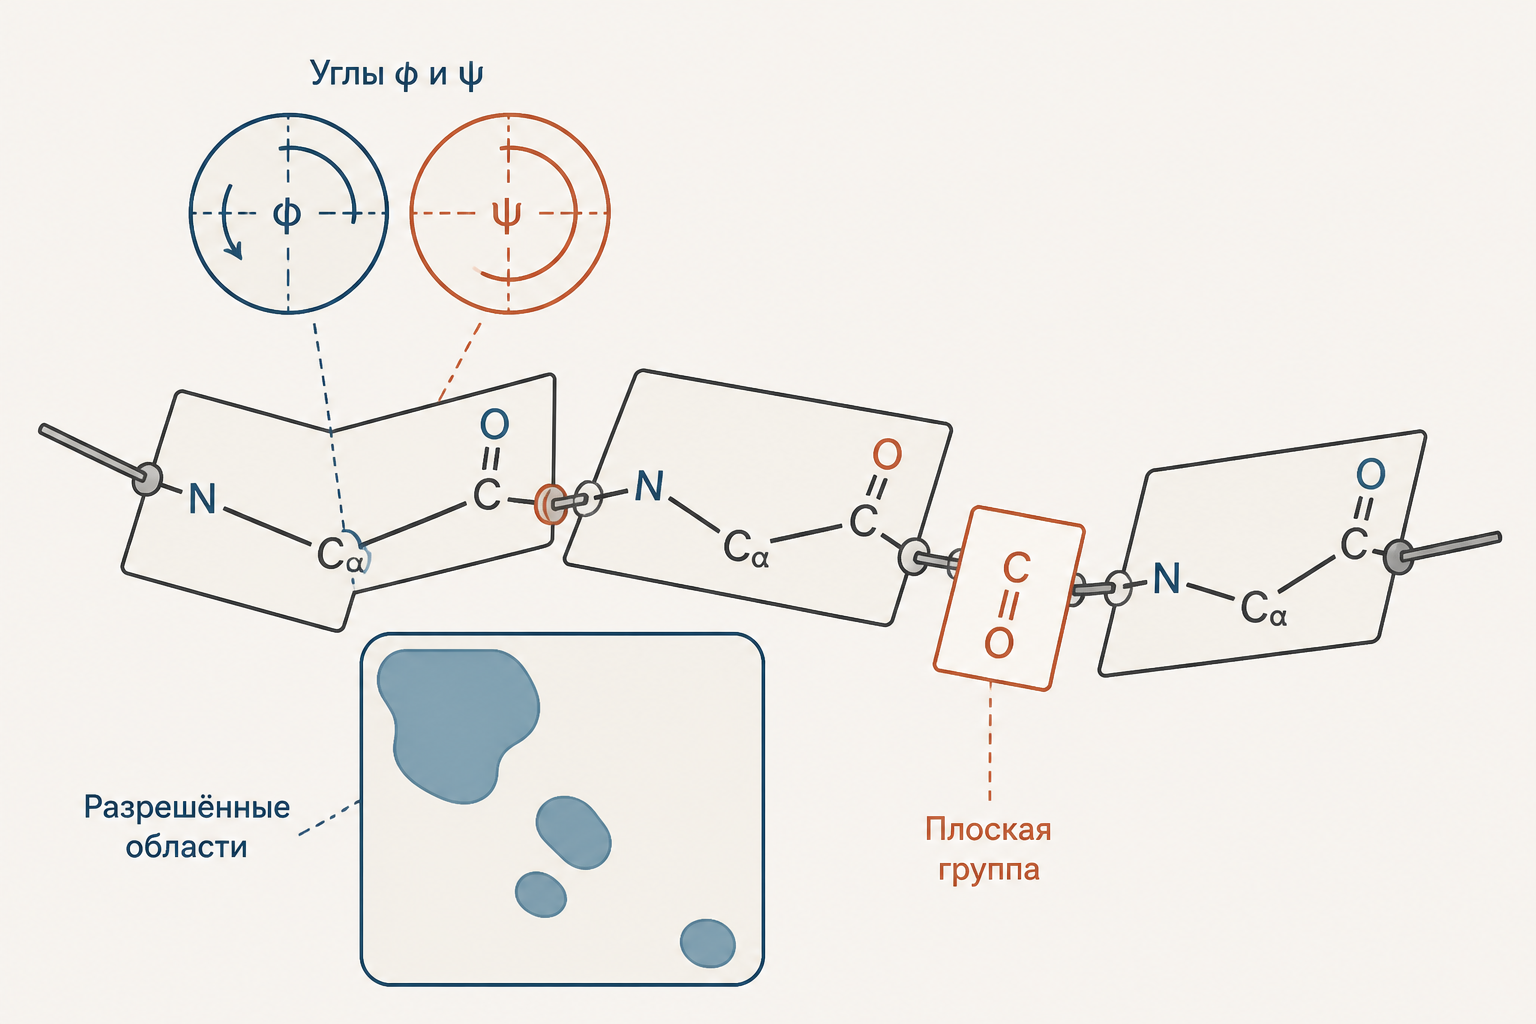
Так первичная последовательность превращается в пространственную структуру: пептидные группы дают повторяющийся плоский каркас, а разрешённые повороты и формируют локальную геометрию. Уже затем боковые цепи и нековалентные взаимодействия стабилизируют укладку. Не смешивайте это с темой третичной структуры белка и типов связей: пептидная связь строит непрерывный скелет одной цепи, а водородные, ионные и гидрофобные взаимодействия удерживают её укладку.
Как обнаруживают пептидные связи
Биуретовая реакция - качественная проба на пептидные связи в белках и полипептидах. В щелочной среде ионы образуют с пептидными группами фиолетовый комплекс. Для выраженного признака нужно несколько пептидных связей: свободная аминокислота не является положительным образцом просто потому, что в ней есть азот. Официальный учебный лабораторный материал OpenStax также связывает фиолетовую окраску с взаимодействием и азота пептидных связей в щелочной среде.
В выводе к опыту пишут осторожно: «реакция обнаруживает пептидные связи», а не «доказывает любую аминокислоту». Реагенты, условия и отличие от ксантопротеиновой пробы собраны в статье «Биуретовая и ксантопротеиновая реакции на белок».
Гидролиз: разрыв связи водой
Конденсация и гидролиз противоположны по общей схеме. При гидролизе вода расходуется: H присоединяется к азоту, а OH - к карбонильному фрагменту, и пептидная связь разрывается. Полный гидролиз полипептида возвращает смесь аминокислот, частичный даёт более короткие пептиды.
В лаборатории связь можно расщеплять сильной кислотой или щёлочью при жёстких условиях. Такой гидролиз неспецифичен и способен изменять некоторые аминокислотные остатки. В организме протеазы проводят гидролиз в мягких условиях и выбирают место разреза по строению субстрата: например, разные сериновые протеазы предпочитают связи рядом с разными аминокислотами. Сами по себе они не «ломают» связь механически, а снижают энергетический барьер реакции с водой. Механизм действия ферментов полезно сопоставить с материалом об активном центре фермента.
Что важно в задачах на строение белка
Если дана схема дипептида, сначала найдите фрагмент : это одна пептидная связь. Не считайте C–N внутри аминогруппы исходной аминокислоты. Затем отметьте N- и C-концы: они помогают определить направление записи последовательности. При вопросе о вращении ответ должен включать резонанс, частично двойной характер C–N и планарность группы, а не только фразу «связь прочная».
Если просят объяснить карту Рамачандрана, не пишите, что она показывает длины связей. Она отображает допустимые пары углов и . А если в условии упомянут пролин, корректная формулировка такая: цис-связи перед пролином встречаются чаще, чем перед другими остатками, однако транс-конфигурация всё равно распространённее.
Частые ошибки
- Считают пептидную связь обычной одинарной C–N. Резонанс придаёт ей частично двойной характер, поэтому вращение ограничено.
- Называют цис-форму нормой для пролина. Пролин повышает вероятность цис-изомера, но не отменяет преобладание транс-формы.
- Путают углы , и . относится к пептидной связи, а и - к соседним связям каркаса.
- Приписывают биуретовую реакцию одной аминокислоте. Она связана с несколькими пептидными группами полипептида в щелочной среде.
FAQ
Пептидная связь и амидная связь - одно и то же?
Пептидная связь - это амидная связь, образованная между карбоксильной группой одной аминокислоты и аминогруппой другой. Термин «пептидная» подчёркивает её роль в пептидах и белках.
Почему белок не является полностью жёсткой цепью?
Пептидная группа почти плоская, но рядом с ней есть связи, вокруг которых возможны повороты. Их описывают углами и ; именно они позволяют цепи принимать разные допустимые конформации.
Разрывает ли денатурация пептидные связи?
Обычно нет. Денатурация нарушает прежде всего пространственную укладку и нековалентные взаимодействия. Разрыв пептидного скелета требует гидролиза или другого химического превращения.
Коротко
Пептидная связь возникает при конденсации карбоксильной и аминогруппы. Резонанс делает C–N короче обычной одинарной связи и почти фиксирует плоскость пептидной группы; обычно она транс, а цис-форма сравнительно чаще встречается перед пролином. Повороты по углам и задают допустимую форму цепи, биуретовая реакция обнаруживает несколько пептидных связей, а гидролиз разрывает их с участием воды.
Читайте также
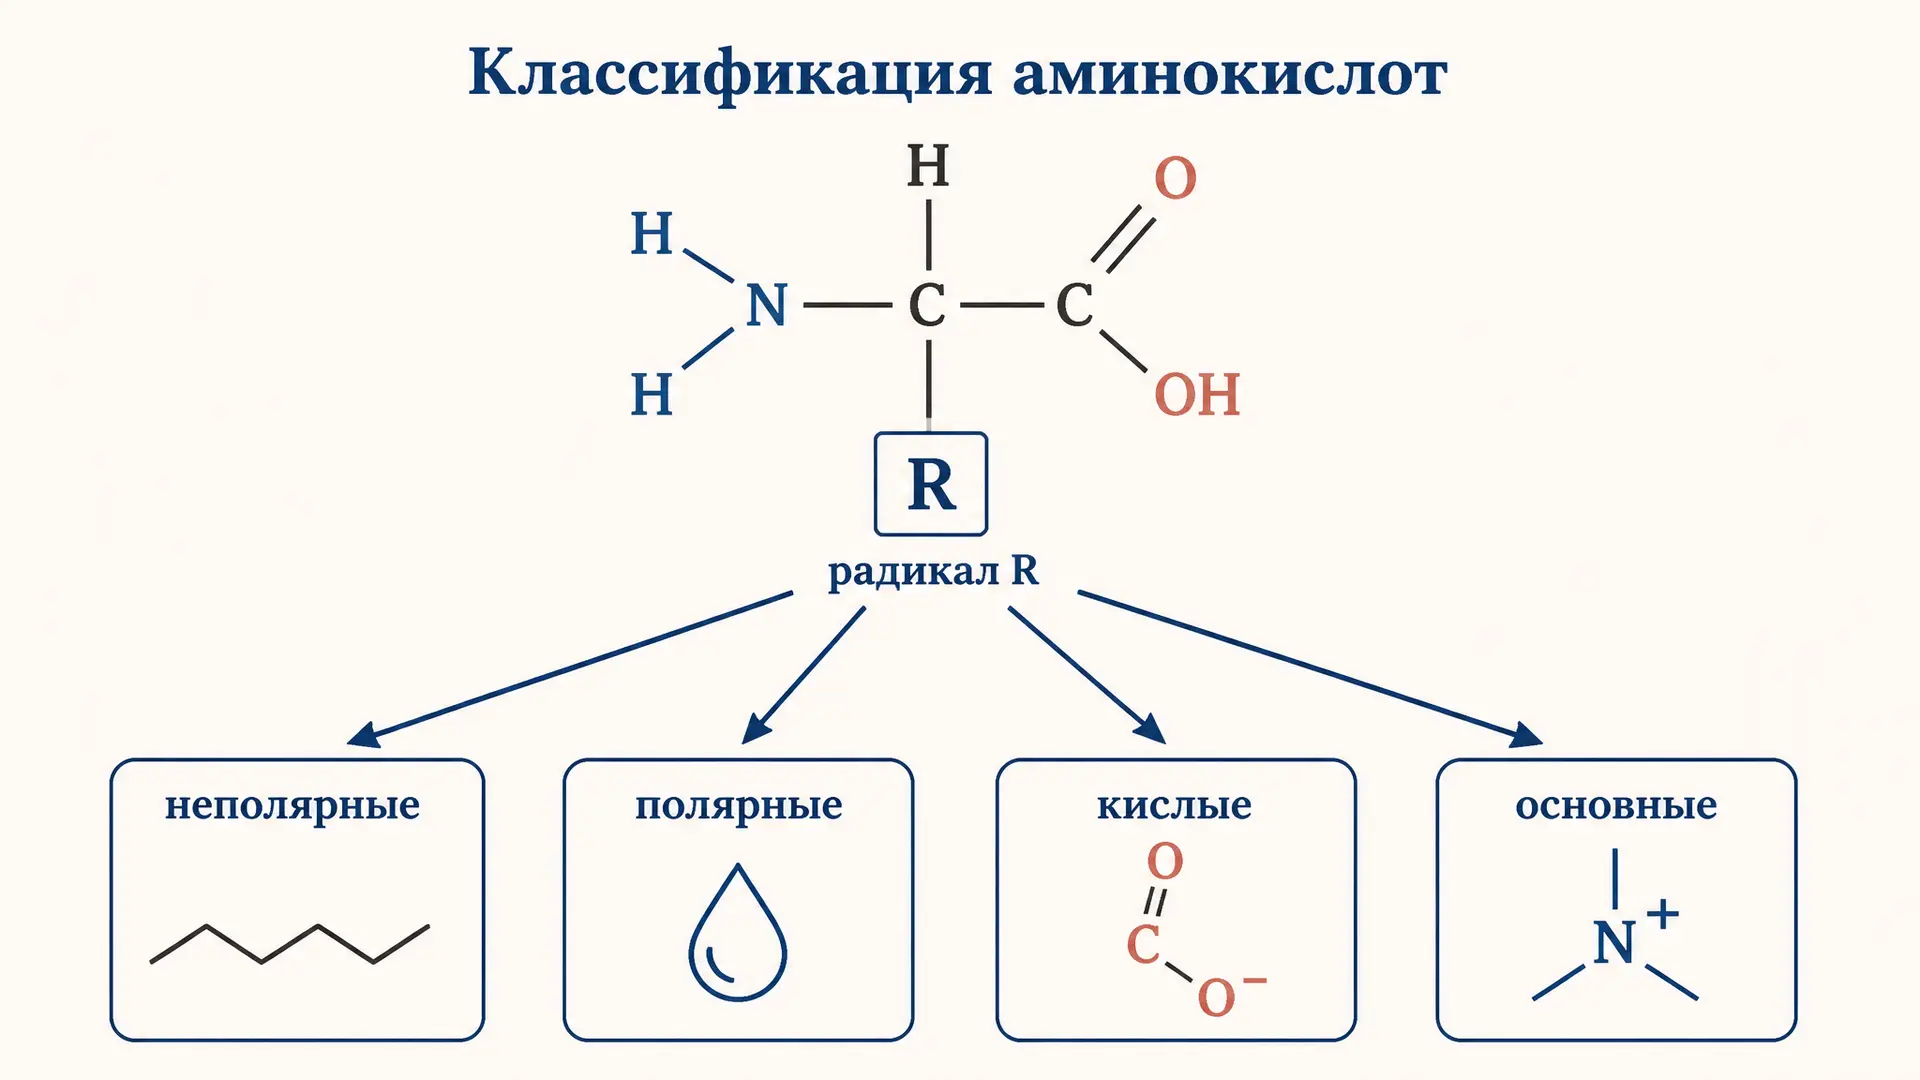
Классификация аминокислот по полярности радикала
Как разделить аминокислоты на неполярные, полярные незаряженные, кислые и основные по свойствам радикала R, с примерами, признаками заряда и логикой деления.
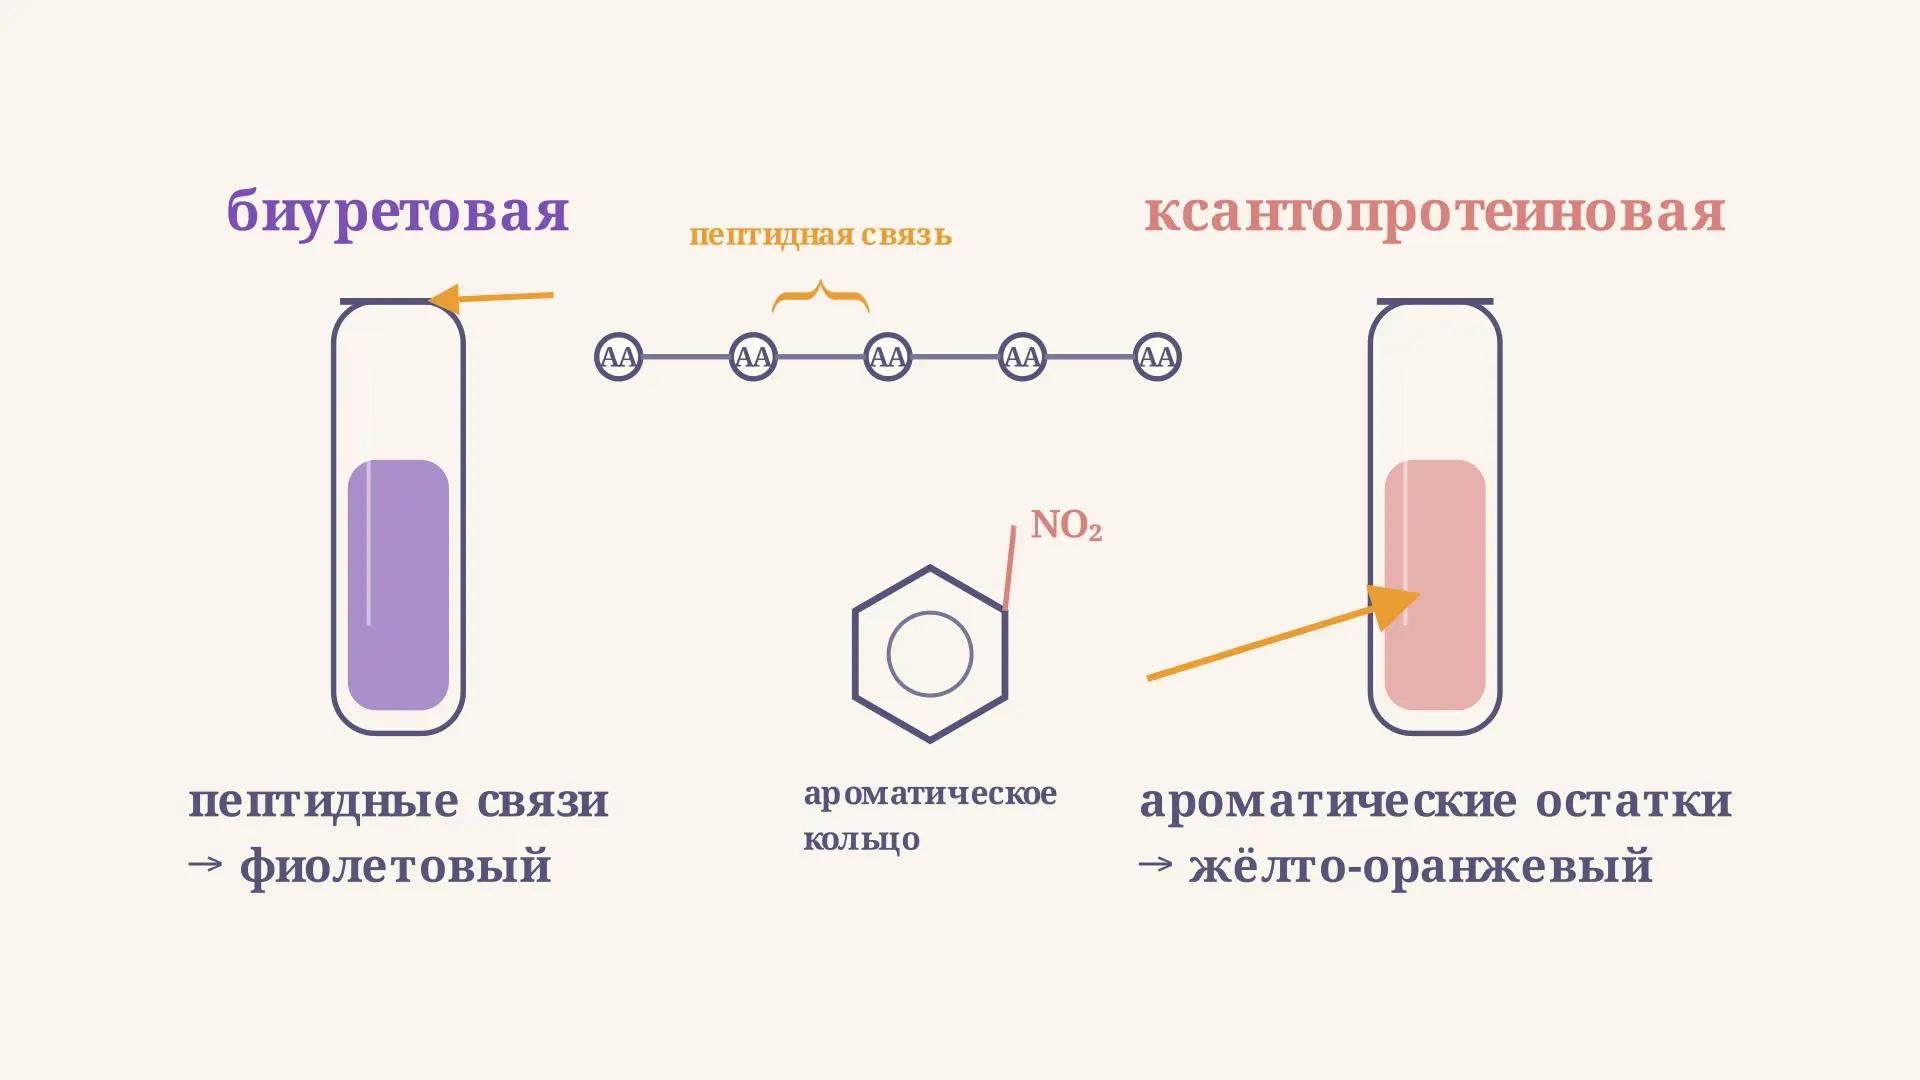
Биуретовая и ксантопротеиновая реакции на белок
Биуретовая и ксантопротеиновая реакции на белок: какие группы они обнаруживают, какие цвета появляются в пробирке, чем отличаются пробы и как оформить вывод в задаче.
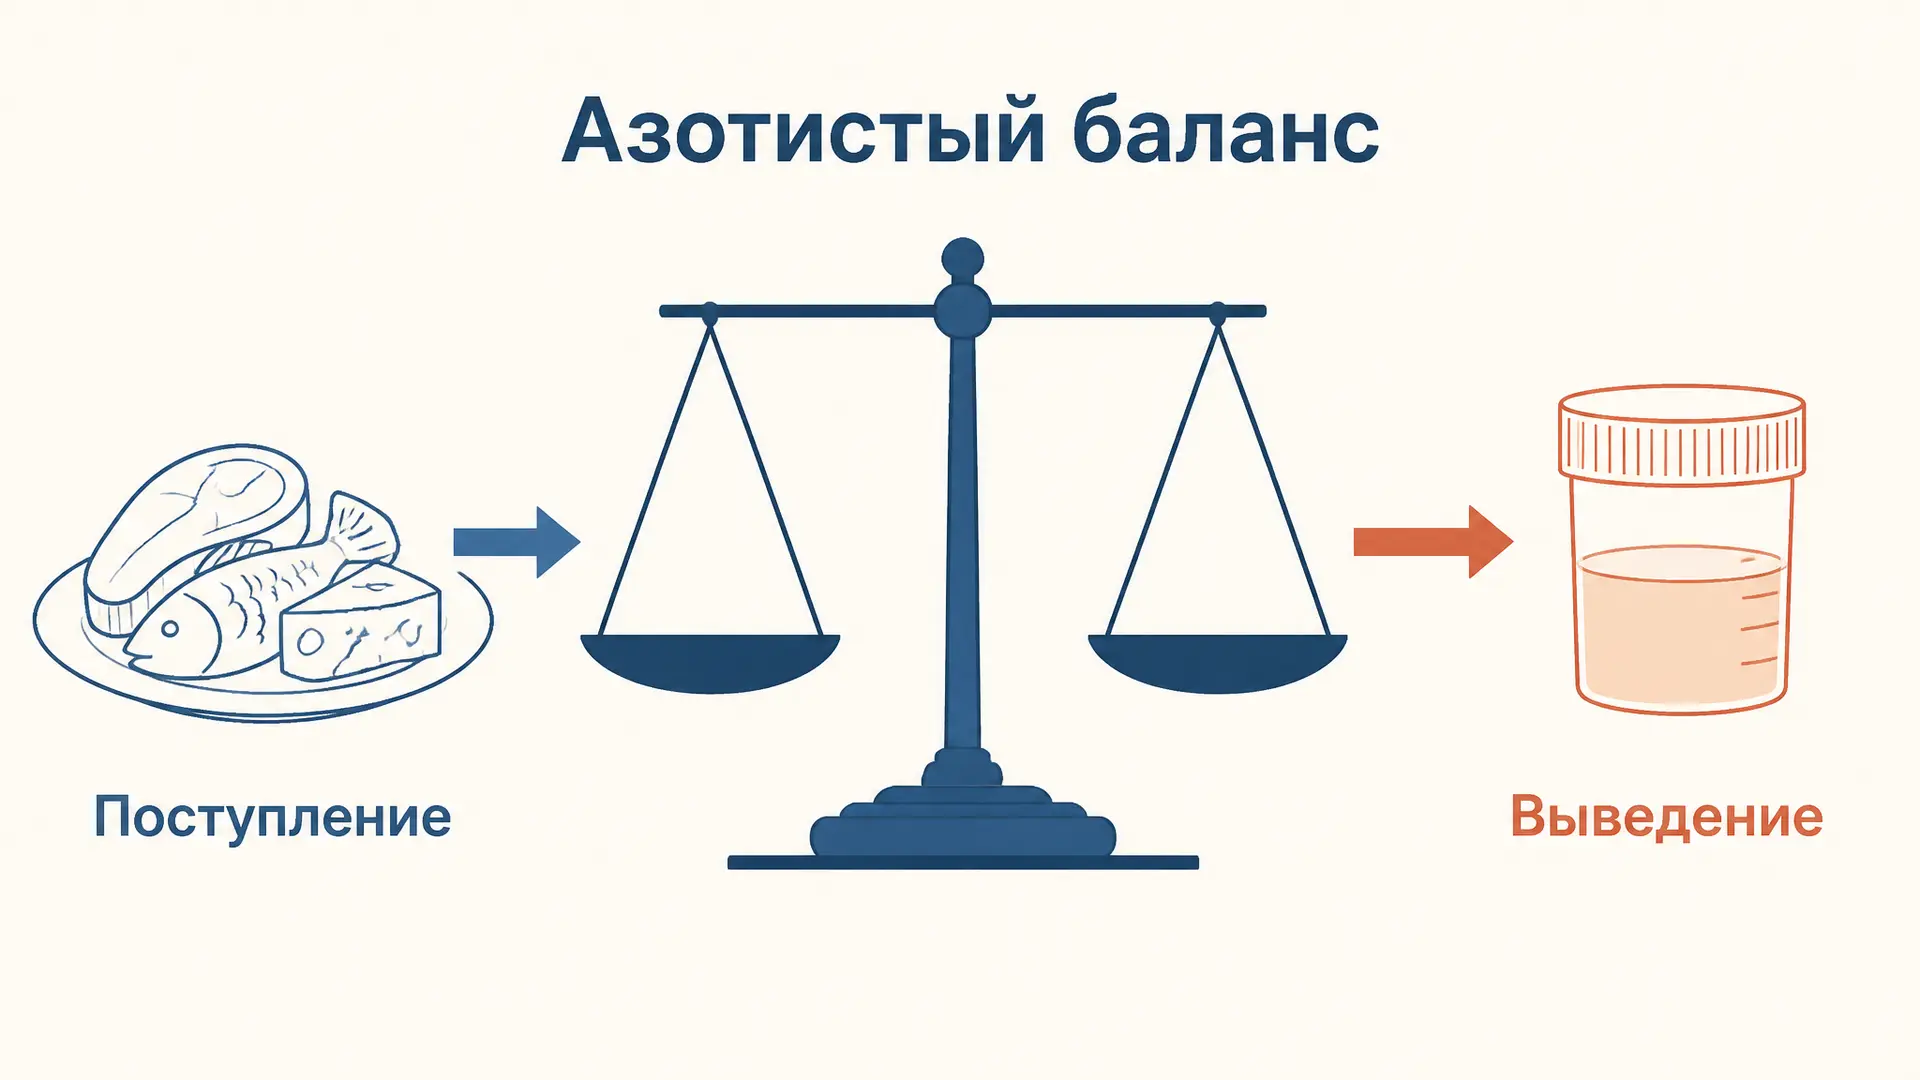
Азотистый баланс: расчёт, нормы и значение
Азотистый баланс: как вычислить поступление и выведение азота, отличить положительный баланс от отрицательного, оценить белок и незаменимые аминокислоты.
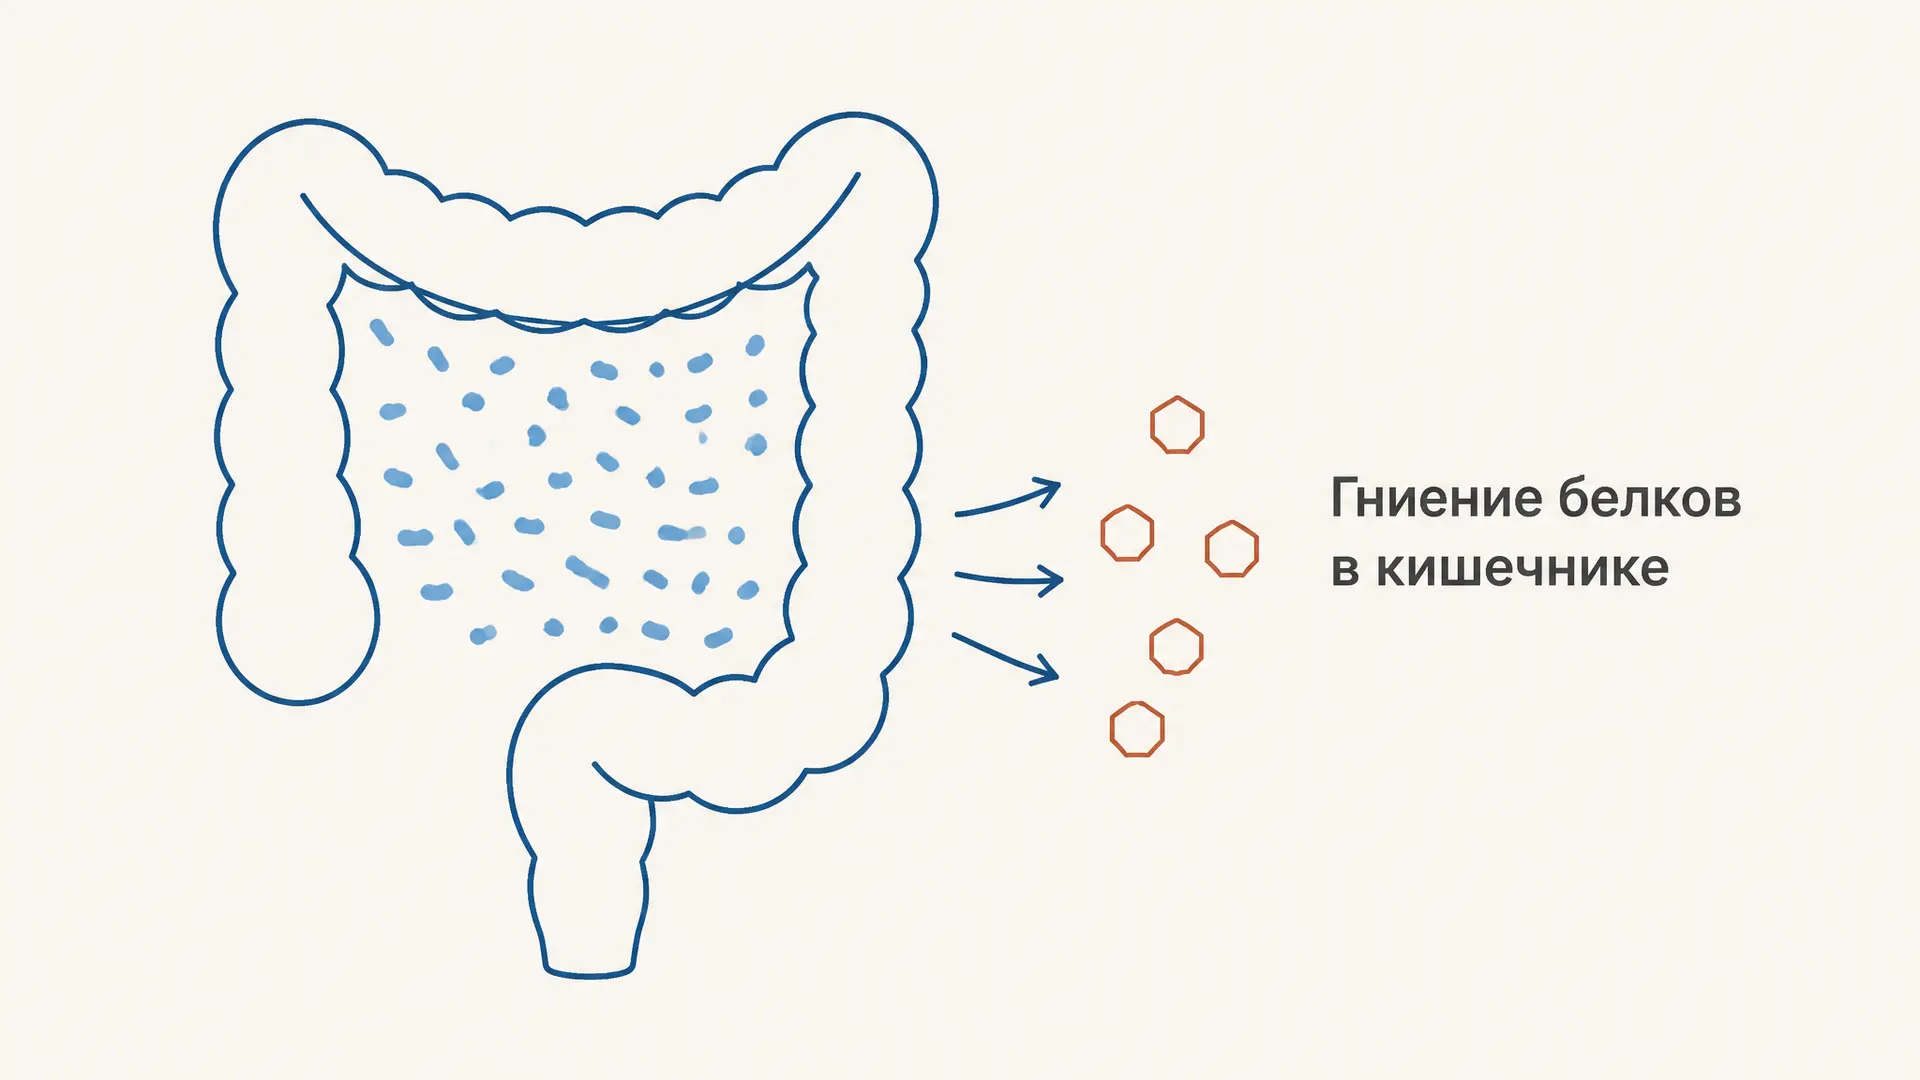
Гниение белков в кишечнике: продукты и защита
Гниение белков в кишечнике: как бактерии толстой кишки превращают аминокислоты в фенолы, индолы, амины и сернистые соединения и как их обезвреживает организм.
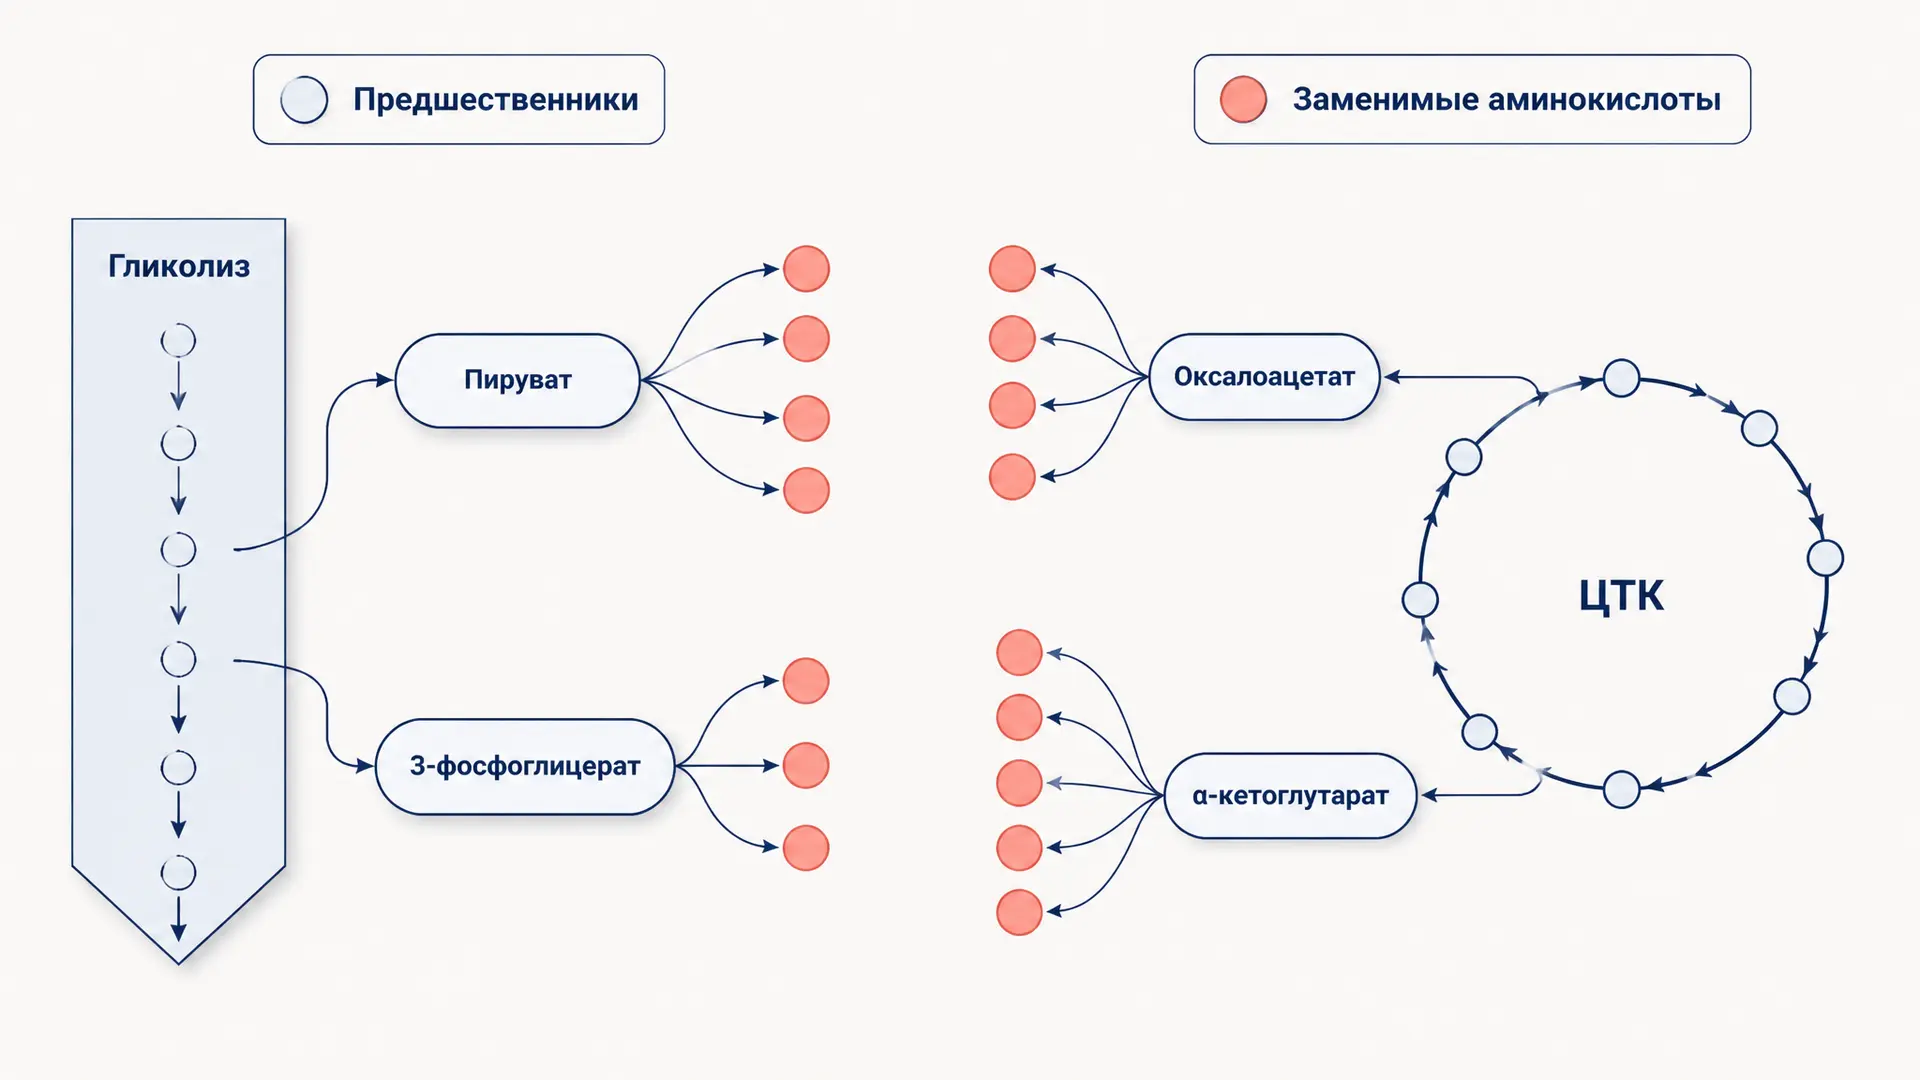
Синтез заменимых аминокислот: пути и предшественники
Как синтезируются заменимые аминокислоты у человека: связь с гликолизом и ЦТК, предшественники аланина, аспартата, глутамата, серина, глицина, цистеина и тирозина.
Вестерн-блоттинг: как находят нужный белок
Вестерн-блоттинг: разбор иммуноблота от лизиса и SDS-PAGE до переноса на мембрану, антител, ECL-детекции, контроля нагрузки, нормализации и оценки полос.