Синтез заменимых аминокислот: пути и предшественники
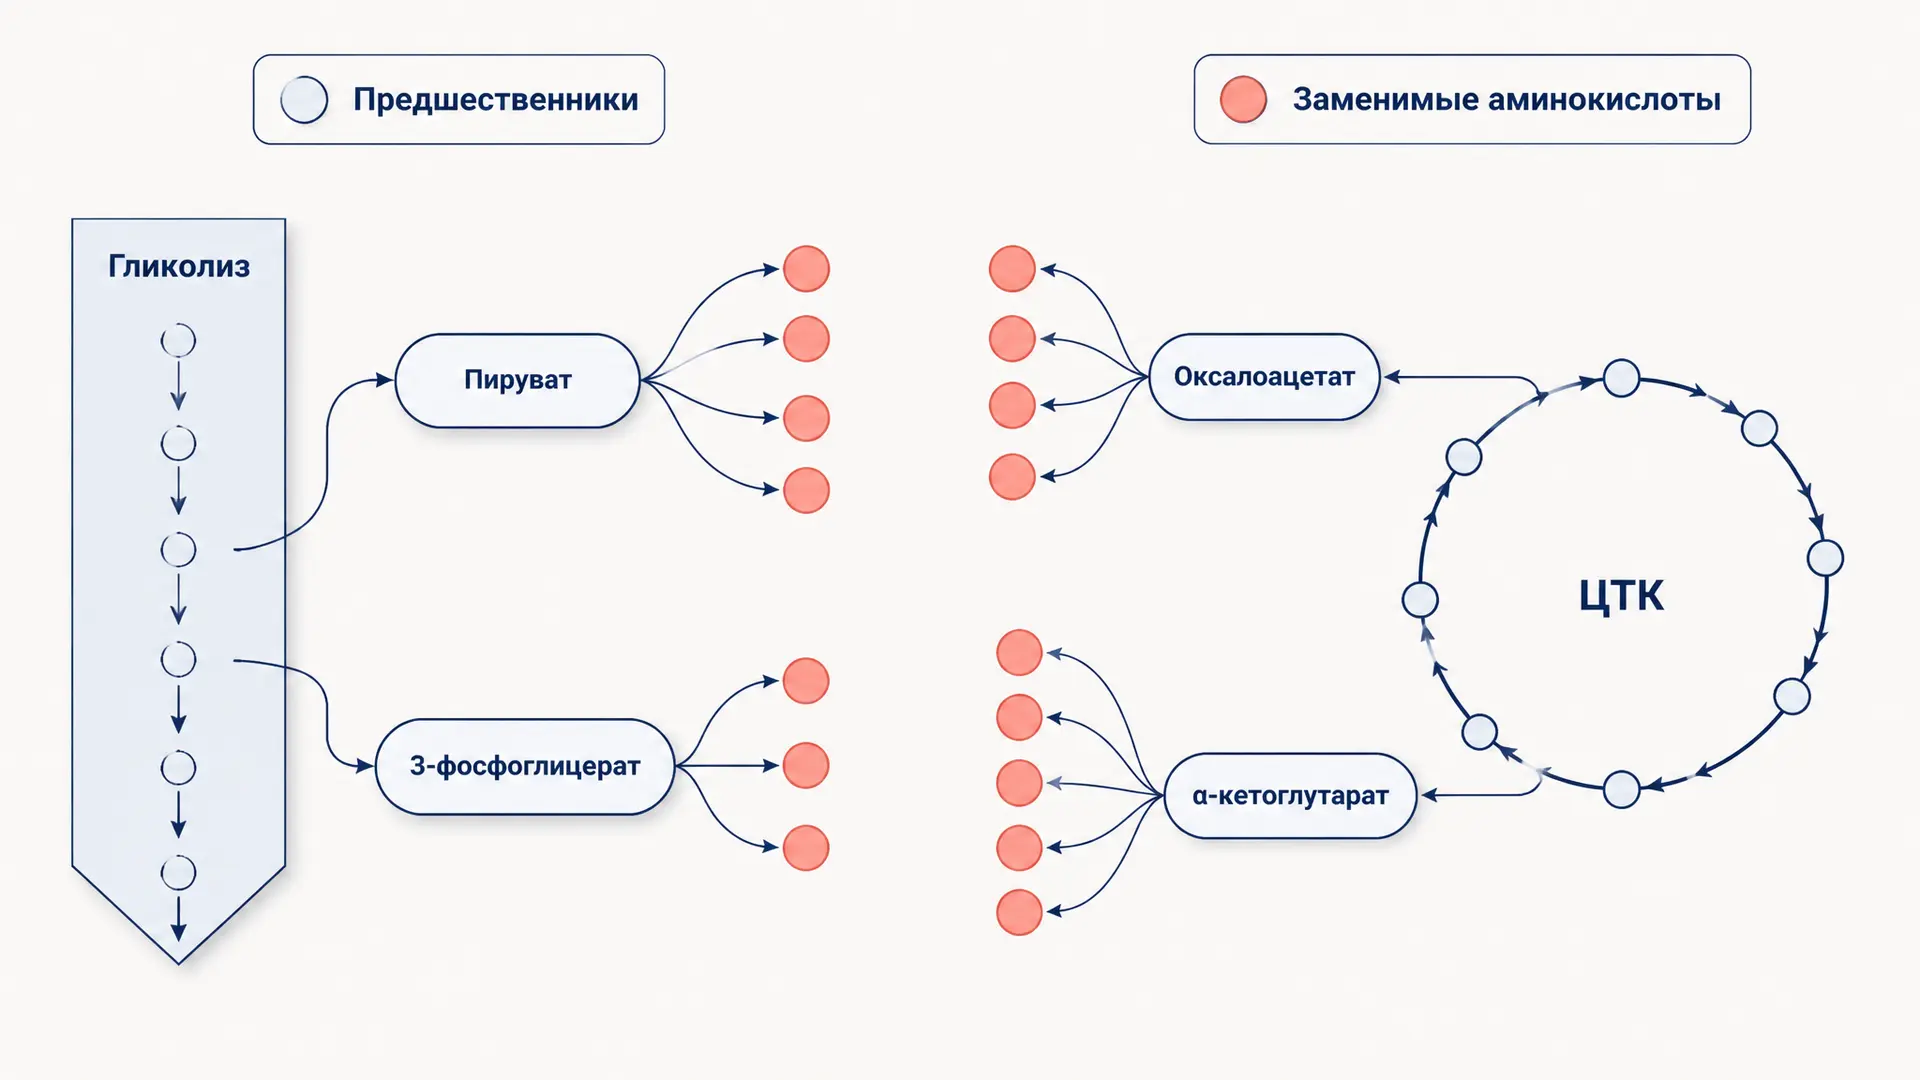
Заменимыми называют аминокислоты, углеродный скелет которых клетки человека способны собрать из собственных метаболитов. Это не означает, что они «не нужны в пище»: белок пищи остаётся важным источником аминокислот, а возможности синтеза зависят от ткани, питания и физиологического состояния. Смысл термина уже: при обычных условиях взрослому человеку не требуется получать такую аминокислоту именно в готовом виде. Для синтеза нужны три вещи: углеродный предшественник, источник азота и работающие ферменты.
Главные поставщики углеродных скелетов находятся в центральном обмене. Гликолиз даёт пируват и 3-фосфоглицерат, а цикл трикарбоновых кислот - оксалоацетат и альфа-кетоглутарат. На эти кетокислоты часто переносится аминогруппа; химическую логику этого переноса подробно объясняет материал о трансаминировании аминокислот. Так несколько промежуточных продуктов дают целые семейства аминокислот.
Заменимые, незаменимые и условно заменимые
У взрослых людей девять протеиногенных аминокислот считают незаменимыми: гистидин, изолейцин, лейцин, лизин, метионин, фенилаланин, треонин, триптофан и валин. Их углеродные скелеты человек не строит de novo в достаточном количестве. Аланин, аспартат, аспарагин, глутамат, глутамин, серин и глицин обычно относят к заменимым; из глутамата могут образовываться также пролин и часть аргинина.
Однако классификация не равна ярлыку «всегда хватает». Аргинин особенно важен в период роста и при тяжёлом стрессе, поэтому его часто называют условно заменимым: собственного синтеза может быть недостаточно. Тирозин образуется из незаменимого фенилаланина, а цистеин использует серин и серу, поступающую через метионин. Поэтому обе аминокислоты зависят от поступления незаменимого предшественника; при его дефиците они не становятся независимыми от рациона. Это биохимическая, а не рекламная классификация добавок.
Карта предшественников: что из чего образуется
Полезно учить пути не отдельным списком, а по четырём узлам. В таблице указан непосредственный углеродный предшественник; аминогруппа во многих случаях приходит через глутамат и аминотрансферазу.
| Аминокислота | Углеродный предшественник | Основной путь |
|---|---|---|
| Аланин | пируват | трансаминирование пирувата |
| Аспартат | оксалоацетат | трансаминирование оксалоацетата |
| Аспарагин | аспартат | амидирование аспартата глутамином |
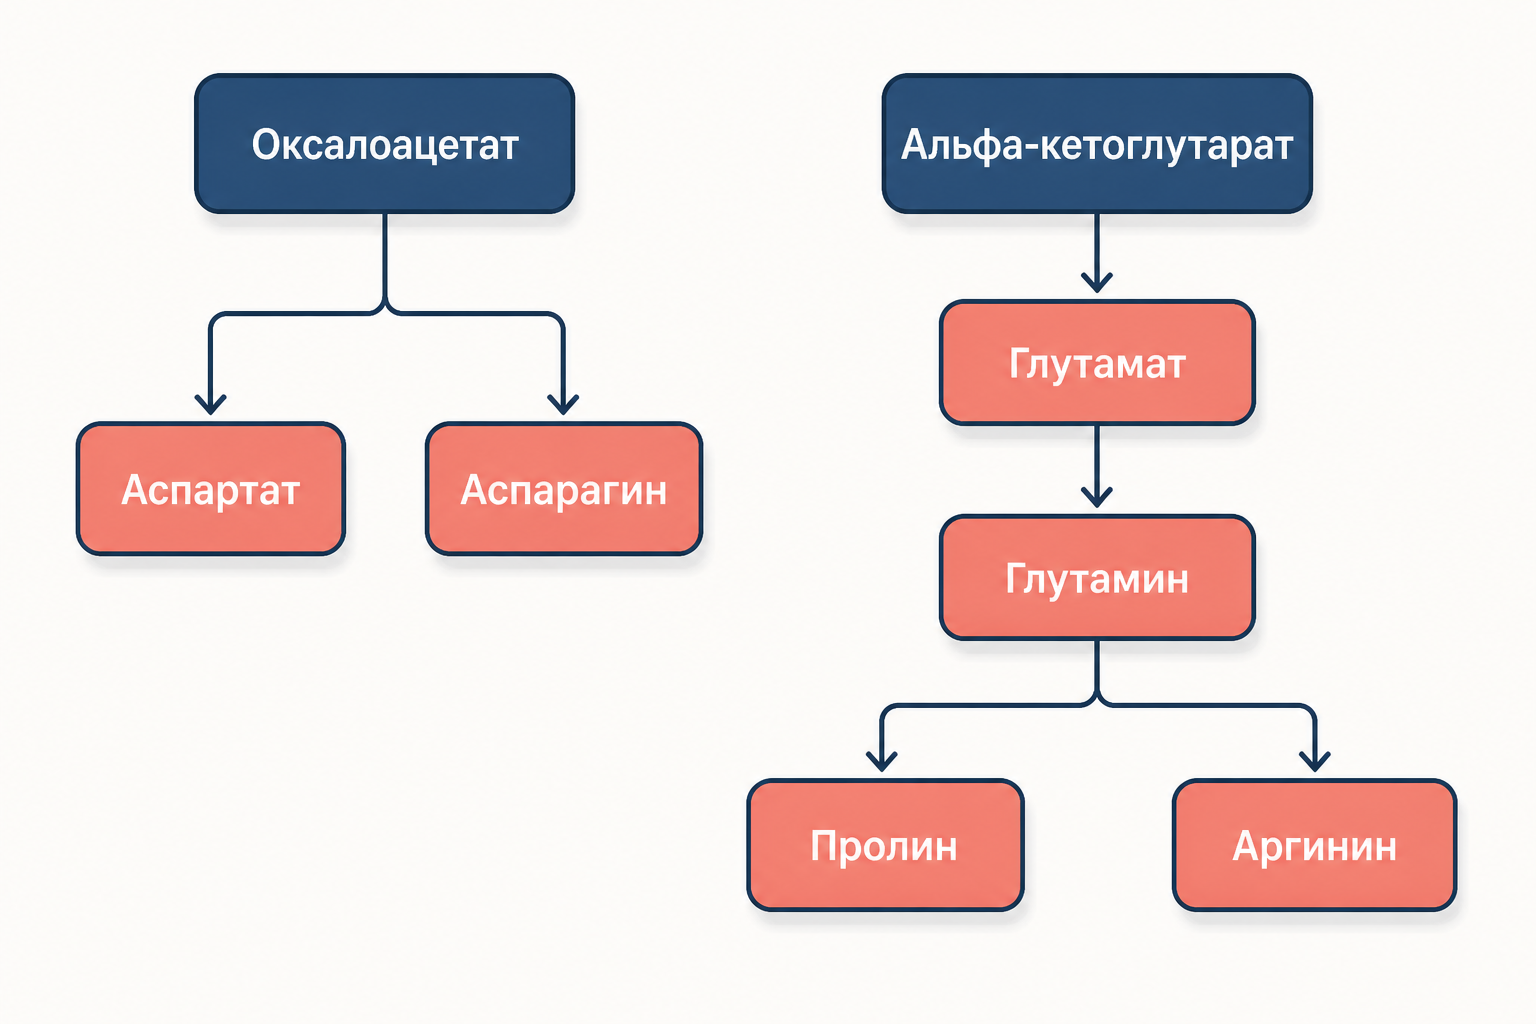
| Глутамат | альфа-кетоглутарат | восстановительное аминирование или трансаминирование |
| Глутамин | глутамат | присоединение амидного азота с затратой АТФ |
| Пролин | глутамат | восстановление и циклизация производного глутамата |
| Аргинин | глутамат через орнитин | реакции цикла мочевины и обмена орнитина |
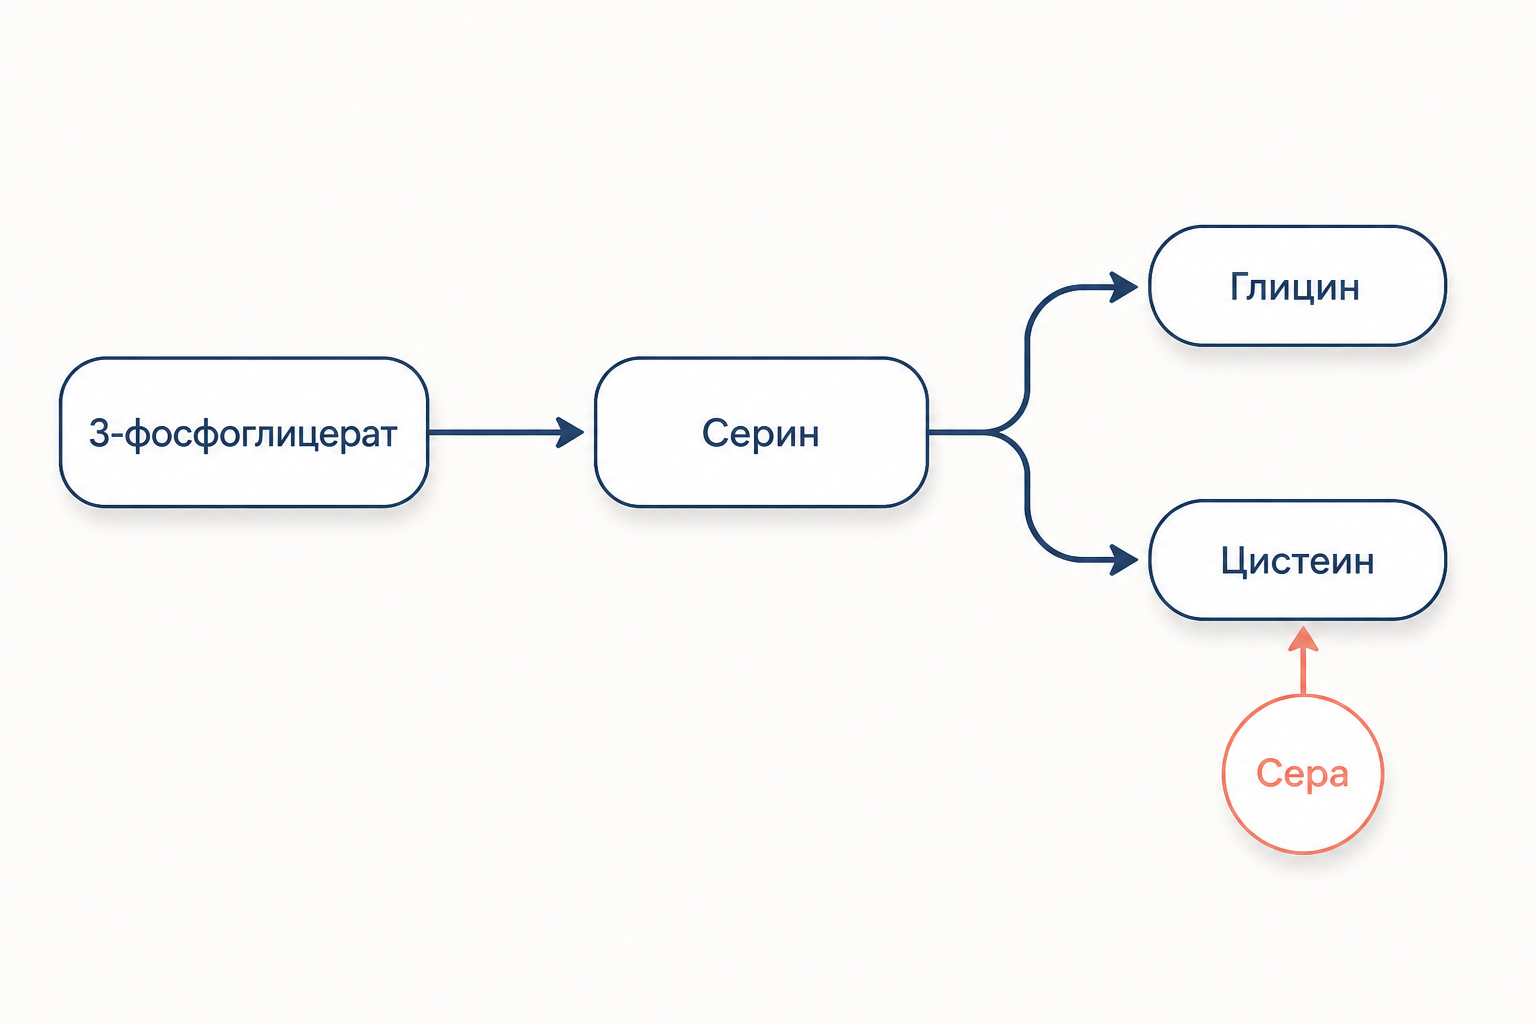
| Серин | 3-фосфоглицерат | трёхстадийный путь через фосфосерин |
| Глицин | серин | перенос одноуглеродного фрагмента на тетрагидрофолат |
| Цистеин | серин + сера метионина | транссульфурация |
| Тирозин | фенилаланин | гидроксилирование фенилаланина |
Не следует читать таблицу как перечень необратимых стрелок. Метаболические потоки зависят от ткани и состояния клетки, а часть реакций обратима. Например, связь оксалоацетата и аспартата одновременно соединяет ЦТК с обменом азота; пополнение промежуточных продуктов цикла рассматривают в теме анаплеротических реакций.
У таблицы есть ещё одно ограничение. Она показывает, откуда берётся скелет, но не описывает весь баланс веществ. Для большинства аминотрансфераз нужен пиридоксальфосфат - производное витамина B6, а для синтеза глутамина и аспарагина расходуется АТФ. Если в условии задачи написано «синтез из пирувата», это не значит, что пируват в одиночку превращается в аминокислоту: должны быть доступными и аминогруппа, и ферментная система. Аналогично, наличие предшественника не доказывает, что путь одинаково активен во всех органах. Центральные промежуточные продукты одновременно нужны для получения энергии, поэтому клетка распределяет поток между окислением, пополнением цикла и биосинтезом. Такая конкуренция объясняет, почему схема полезна как карта связей, но не как количественная норма питания.
Пируват: прямой путь к аланину
Пируват - конечный продукт гликолиза и непосредственный предшественник аланина. Аланинаминотрансфераза переносит аминогруппу с глутамата на пируват:
Углеродный скелет пирувата при этом сохраняется, меняется только функциональная группа у альфа-углерода. Реакция обратима, поэтому она может и синтезировать аланин, и возвращать его к пирувату. В мышце аланин удобен для переноса азота в печень; там углеродный скелет способен вновь включаться в обмен глюкозы. Важный вывод для задачи: пируват - не «донор азота», а карбоновый скелет; донором аминогруппы в приведённой паре служит глутамат.
Оксалоацетат: аспартат и аспарагин
Оксалоацетат ЦТК трансаминируется в аспартат. Его реакция аналогична аланиновой, но использует другой скелет:
Аспартат затем превращается в аспарагин. Аспарагинсинтетаза активирует аспартат АТФ и использует амидный азот глутамина, образуя амидную группу боковой цепи. Поэтому аспартат и аспарагин нельзя считать одной и той же молекулой с разными названиями: у первого боковая цепь содержит карбоксилат, у второго - амид. Сравнить свойства этих радикалов полезно с классификацией аминокислот по полярности.
Альфа-кетоглутарат: центральный узел азота
Альфа-кетоглутарат, промежуточный продукт ЦТК, принимает аминогруппу и становится глутаматом. Это происходит либо при трансаминировании, либо при восстановительном аминировании с участием глутаматдегидрогеназы. Глутамат поэтому - важнейший «сборщик» аминного азота и исходная точка для нескольких синтезов.
Глутаминсинтетаза присоединяет к карбоксильной группе глутамата аммиак с затратой АТФ, образуя глутамин. Его амидный азот затем используется в реакциях синтеза нуклеотидов и аспарагина. Из глутамата через восстановленные промежуточные соединения образуется пролин; через орнитин и реакции цикла мочевины формируется аргинин. При этом аргинин не стоит механически записывать в безусловно заменимые: скорость его образования может не покрывать потребность при росте, травме или тяжёлом заболевании.
Когда азот требуется удалить, глутамат может пойти в противоположную сторону - отдать аминогруппу или подвергнуться окислительному дезаминированию. Тем самым один узел связывает синтез аминокислот с их распадом и обезвреживанием аммиака.
3-фосфоглицерат: серин и его производные
Серин строится из 3-фосфоглицерата - раннего промежуточного продукта гликолиза. Сначала 3-фосфоглицерат окисляется до 3-фосфогидроксипирувата. Затем фосфосерин-аминотрансфераза переносит аминогруппу с глутамата, формируя 3-фосфосерин; фосфатаза снимает фосфат, и получается серин. Так в одной цепочке встречаются углерод от гликолиза и азот от глутамата.
Глицин образуется из серина в реакции серингидроксиметилтрансферазы, для которой нужен тетрагидрофолат. От серина отделяется одноуглеродный фрагмент, он переходит в фолатный пул, а оставшийся скелет становится глицином. Поэтому серин и глицин тесно связаны с одноуглеродным обменом: путь важен не только для белков, но и для синтеза нуклеотидов.
Цистеин также использует сериновый скелет, но его сера не возникает из воздуха и не синтезируется человеком de novo. В транссульфурационном пути серин соединяется с производным метионина, а затем образуется цистеин. Корректная формула для экзамена: «серин даёт углеродный скелет, метионин - серу». Не надо называть цистеин полностью независимой заменимой аминокислотой, если обсуждается дефицит метионина.
Тирозин: почему заменимость зависит от фенилаланина
Тирозин образуется гидроксилированием фенилаланина ферментом фенилаланингидроксилазой. Реакции нужен тетрагидробиоптерин как кофактор; к ароматическому кольцу фенилаланина добавляется гидроксильная группа. Углеродный скелет тирозина, следовательно, приходит не из гликолиза или ЦТК напрямую, а от незаменимой аминокислоты.
Именно поэтому тирозин называют условно заменимым. При достаточном поступлении фенилаланина он синтезируется, но при нарушении гидроксилирования или ограниченном фенилаланине этот путь не компенсирует потребность. Здесь важно не путать питательную классификацию с полярностью боковой цепи: тирозин имеет полярную гидроксильную группу, но это ничего не говорит о том, может ли организм построить его скелет.
Частые ошибки
- Называть все заменимые аминокислоты независимыми от питания. Цистеин зависит от серы метионина, а тирозин - от фенилаланина; аргинина в некоторых состояниях образуется недостаточно.
- Считать, что пируват и оксалоацетат сами отдают аминогруппу. Это кетокислотные скелеты; азот обычно приходит от глутамата при трансаминировании.
- Путать аспартат с аспарагином. Аспарагин образуется из аспартата с использованием АТФ и амидного азота глутамина.
- Приписывать человеку бактериальные пути. Человек не синтезирует de novo углеродные скелеты незаменимых аминокислот, хотя микроорганизмы могут делать это иначе.
FAQ
Сколько аминокислот человек должен получать с пищей?
Для здорового взрослого девять стандартных аминокислот относят к незаменимым. Остальные могут синтезироваться, но при росте, болезни или ограниченном поступлении предшественников некоторые становятся условно незаменимыми.
Почему глутамат так часто встречается в схемах?
Он принимает и отдаёт аминогруппы в обратимых реакциях. Поэтому глутамат соединяет углеродные скелеты центрального обмена с распределением азота между многими аминокислотами.
Можно ли сказать, что цистеин образуется просто из серина?
Нет. Серин даёт часть скелета, но для образования цистеина нужен перенос серы из производного метионина. Без доступного метионина этот путь ограничен.
Коротко
Синтез заменимых аминокислот опирается на несколько узлов центрального метаболизма: пируват даёт аланин, оксалоацетат - аспартат и аспарагин, альфа-кетоглутарат - глутамат, глутамин, пролин и часть аргинина, а 3-фосфоглицерат - серин, глицин и цистеин. Аминогруппы в эти скелеты часто приносит глутамат. Условность классификации важна: для цистеина нужен метионин, для тирозина - фенилаланин, а синтез аргинина не всегда покрывает потребность организма. На экзамене сначала находят углеродный предшественник, затем источник азота и лишь после этого называют фермент: такая последовательность помогает не путать соседние, но разные пути.
Читайте также
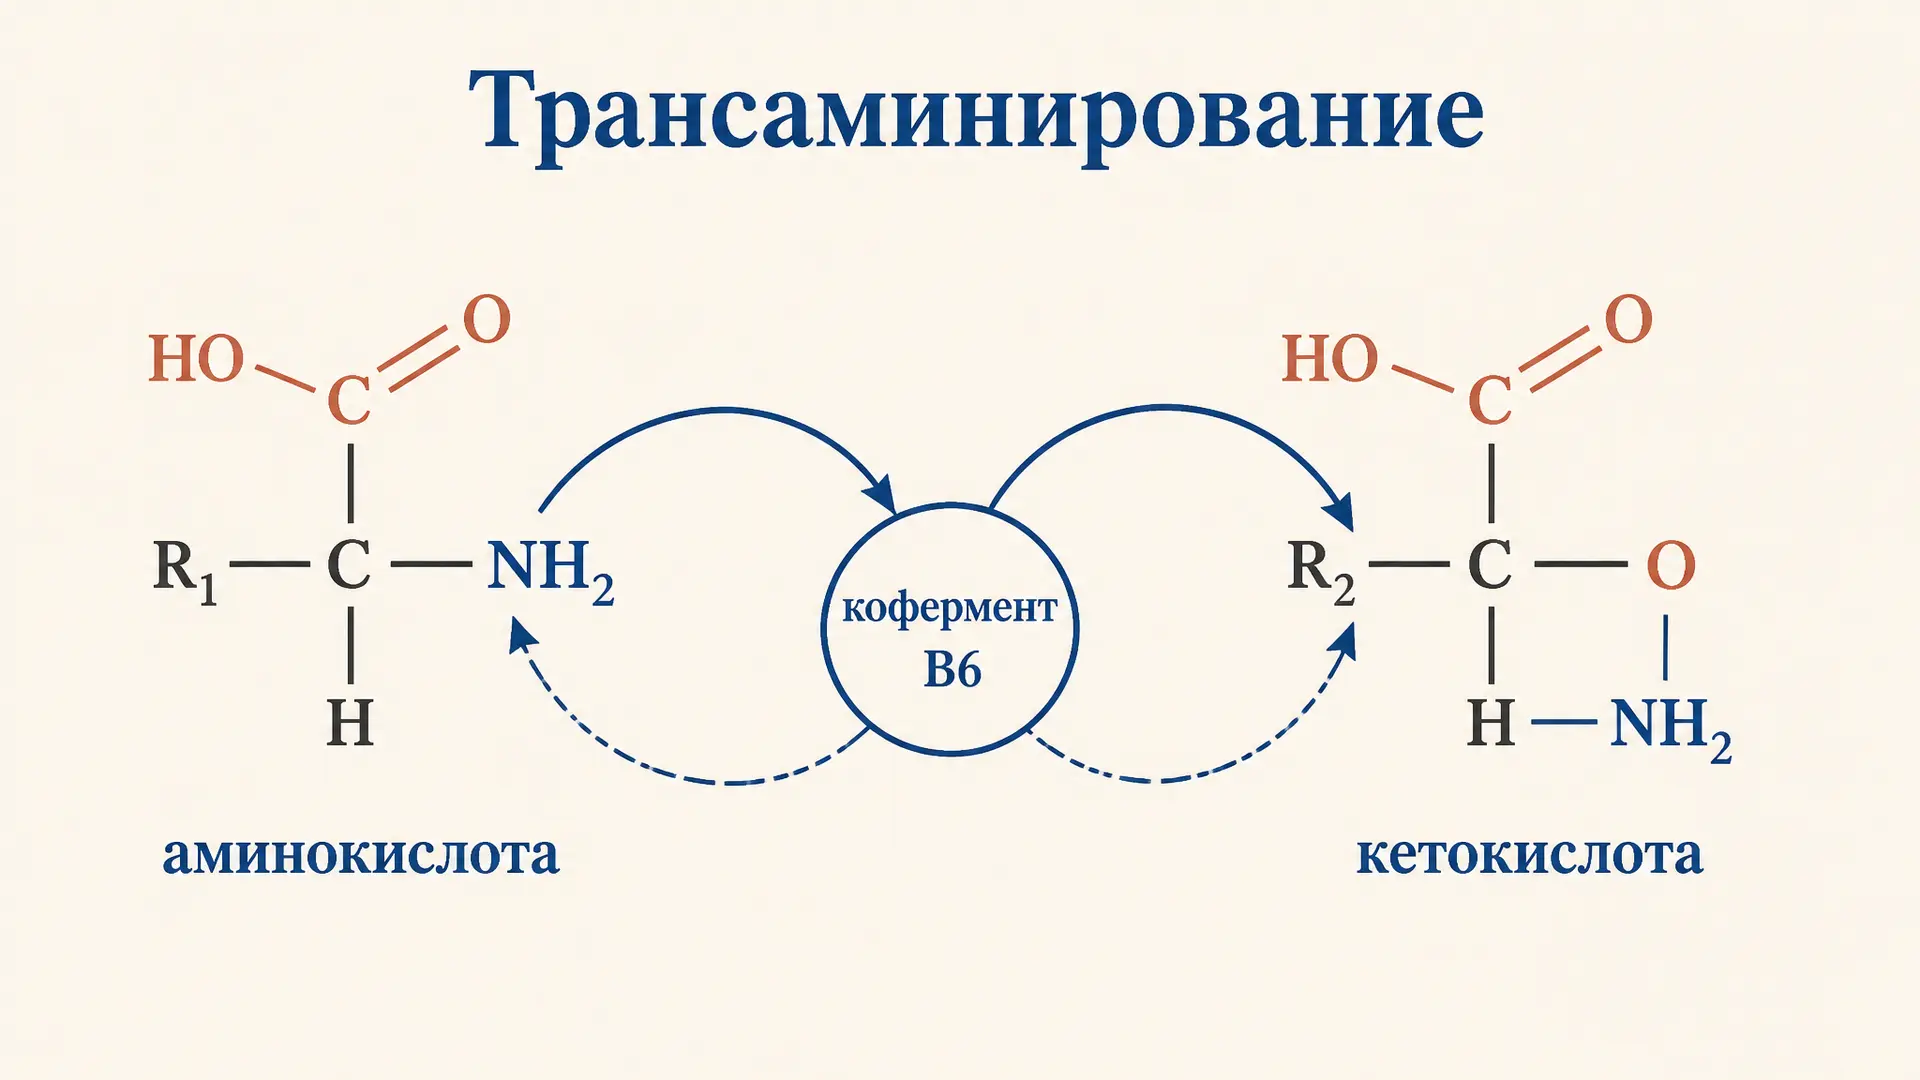
Трансаминирование аминокислот: механизм реакции
Механизм трансаминирования аминокислот: роль пиридоксальфосфата, пинг-понг кинетика, альдимин и кетимин, ключевые ферменты АЛТ и АСТ и сбор азота на глутамате.
Азотистый баланс: расчёт, нормы и значение
Азотистый баланс: как вычислить поступление и выведение азота, отличить положительный баланс от отрицательного, оценить белок и незаменимые аминокислоты.
Гниение белков в кишечнике: продукты и защита
Гниение белков в кишечнике: как бактерии толстой кишки превращают аминокислоты в фенолы, индолы, амины и сернистые соединения и как их обезвреживает организм.
Строение пептидной связи: планарность и свойства
Строение пептидной связи: как она образуется, почему обладает частично двойным характером, что означают транс-конфигурация, углы φ и ψ, биуретовая реакция и гидролиз.
Дезаминирование аминокислот: типы реакций и ферменты
Дезаминирование аминокислот: окислительный и неокислительные типы, непрямое дезаминирование через глутамат, ключевые ферменты и судьба аммиака и кетокислот.
Анаплеротические реакции цикла Кребса: что это и зачем
Анаплеротические реакции цикла Кребса простыми словами: зачем нужно пополнение интермедиатов, главные реакции с пируваткарбоксилазой, отличие от глиоксилатного шунта и частые ошибки на экзамене.