Синапоморфия: как признаки выделяют клады
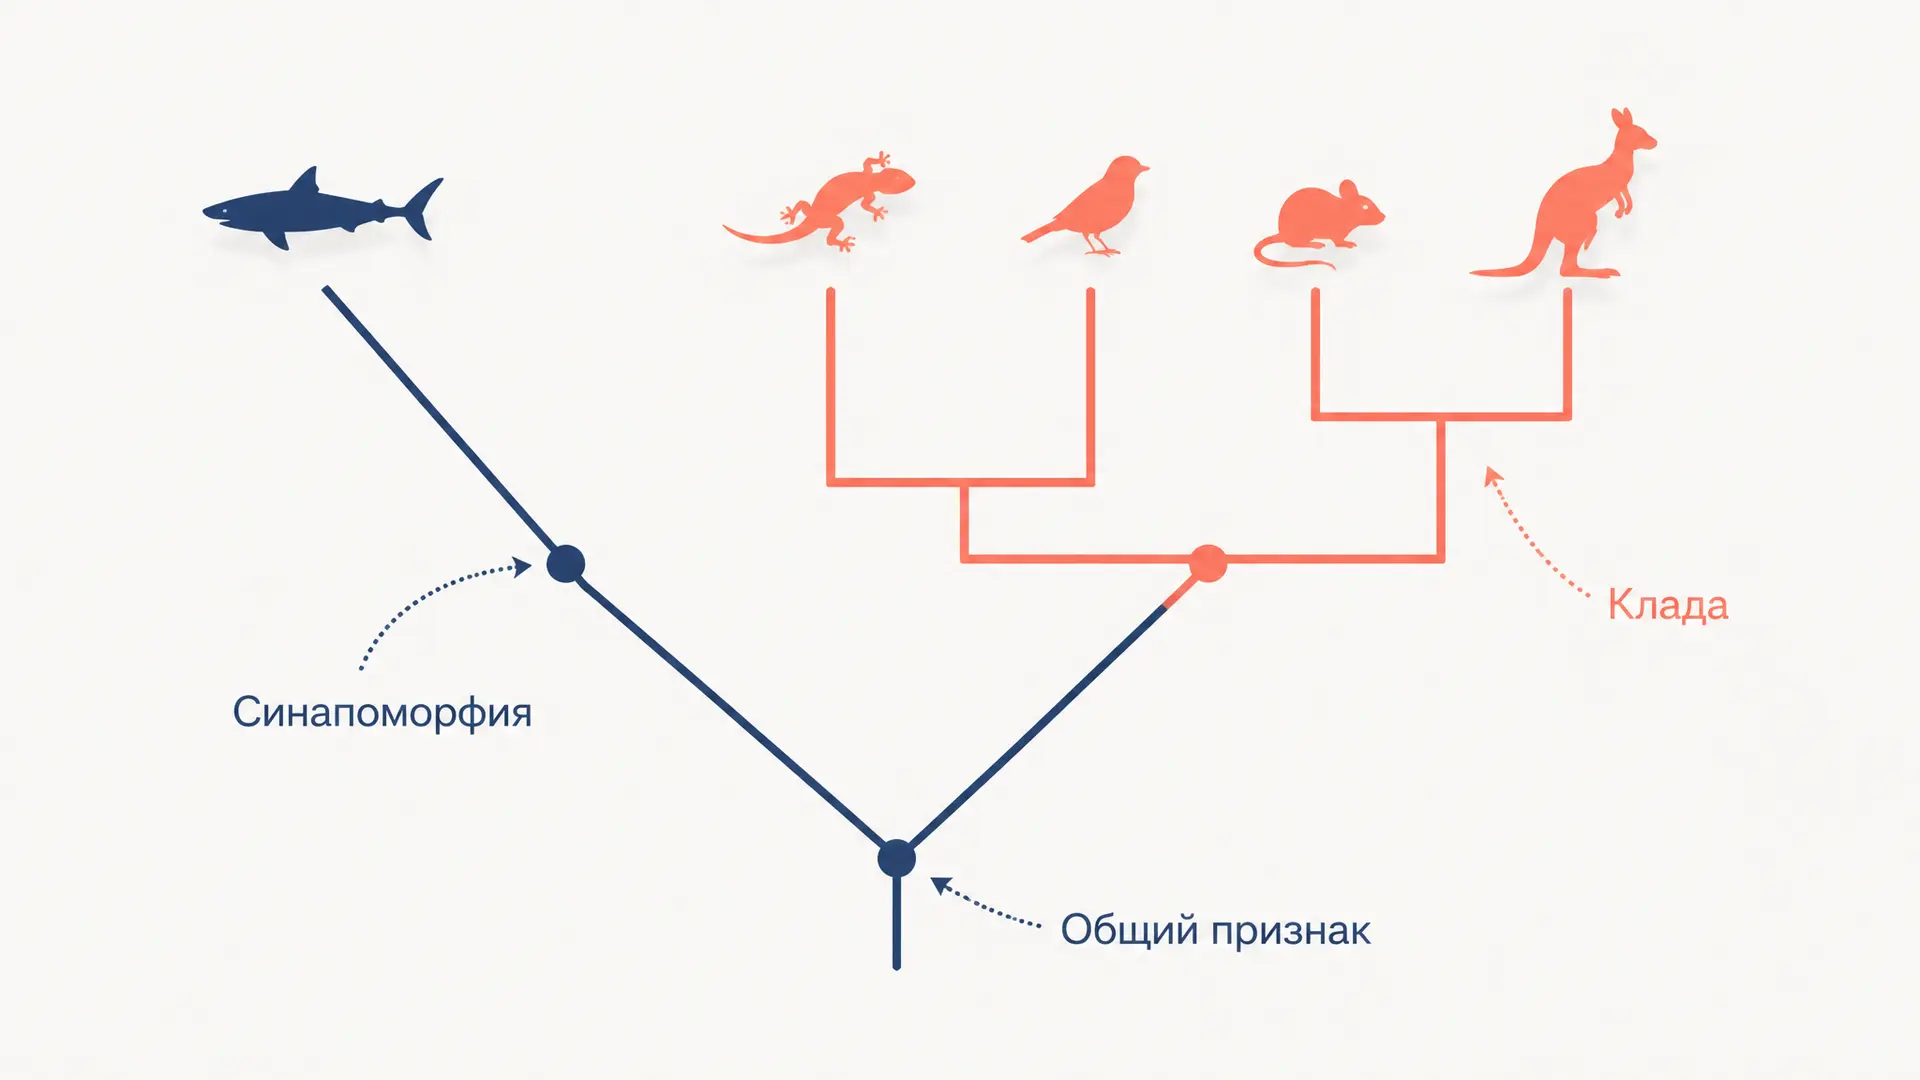
Синапоморфия - это общий производный признак: новшество, возникшее у предка и унаследованное несколькими его потомками. В кладистике именно такие признаки служат основанием выделить кладу, то есть предка вместе со всеми его потомками. Внешнее сходство само по себе не годится: оно может быть древним наследием или независимым результатом сходного образа жизни. Разберём язык кладистики, построим учебную кладограмму для пяти таксонов и увидим, почему дерево с меньшим числом изменений предпочитают, но не считают доказанной историей.
Что именно называют синапоморфией
У каждого признака есть состояния, одно из которых считают предковым, а другое - производным. Направление изменения обычно задаёт внешняя группа: близкий, но не входящий в исследуемую группу таксон. Если у внешней группы состояние «нет», а у трёх изучаемых видов «есть», появление признака в их общем предке - рабочая гипотеза.
Когда производное состояние разделяют два или больше таксонов, оно становится синапоморфией для охватывающей их ветви. Например, перья - синапоморфия птиц в подходящем наборе таксонов; для одной отдельной птицы это уже не признак, который отделит её от остальных птиц. Один и тот же признак меняет «должность» в зависимости от того, какую ветвь и какую внешнюю группу мы сравниваем. Поэтому синапоморфия - не наклейка на орган, а утверждение о распределении состояния на конкретной филогенетической гипотезе.
Кладистический вывод всегда условен: сначала исследователь проверяет, сопоставимы ли признаки как гомологичные, затем кодирует состояния в матрицу, а после ищет дерево, лучше всего объясняющее матрицу. В молекулярных данных роль признаков играют выровненные позиции последовательности. О том, как замены в таких последовательностях используют для датировок, читайте в статье о молекулярных часах эволюции.
Четыре термина, которые нельзя смешивать
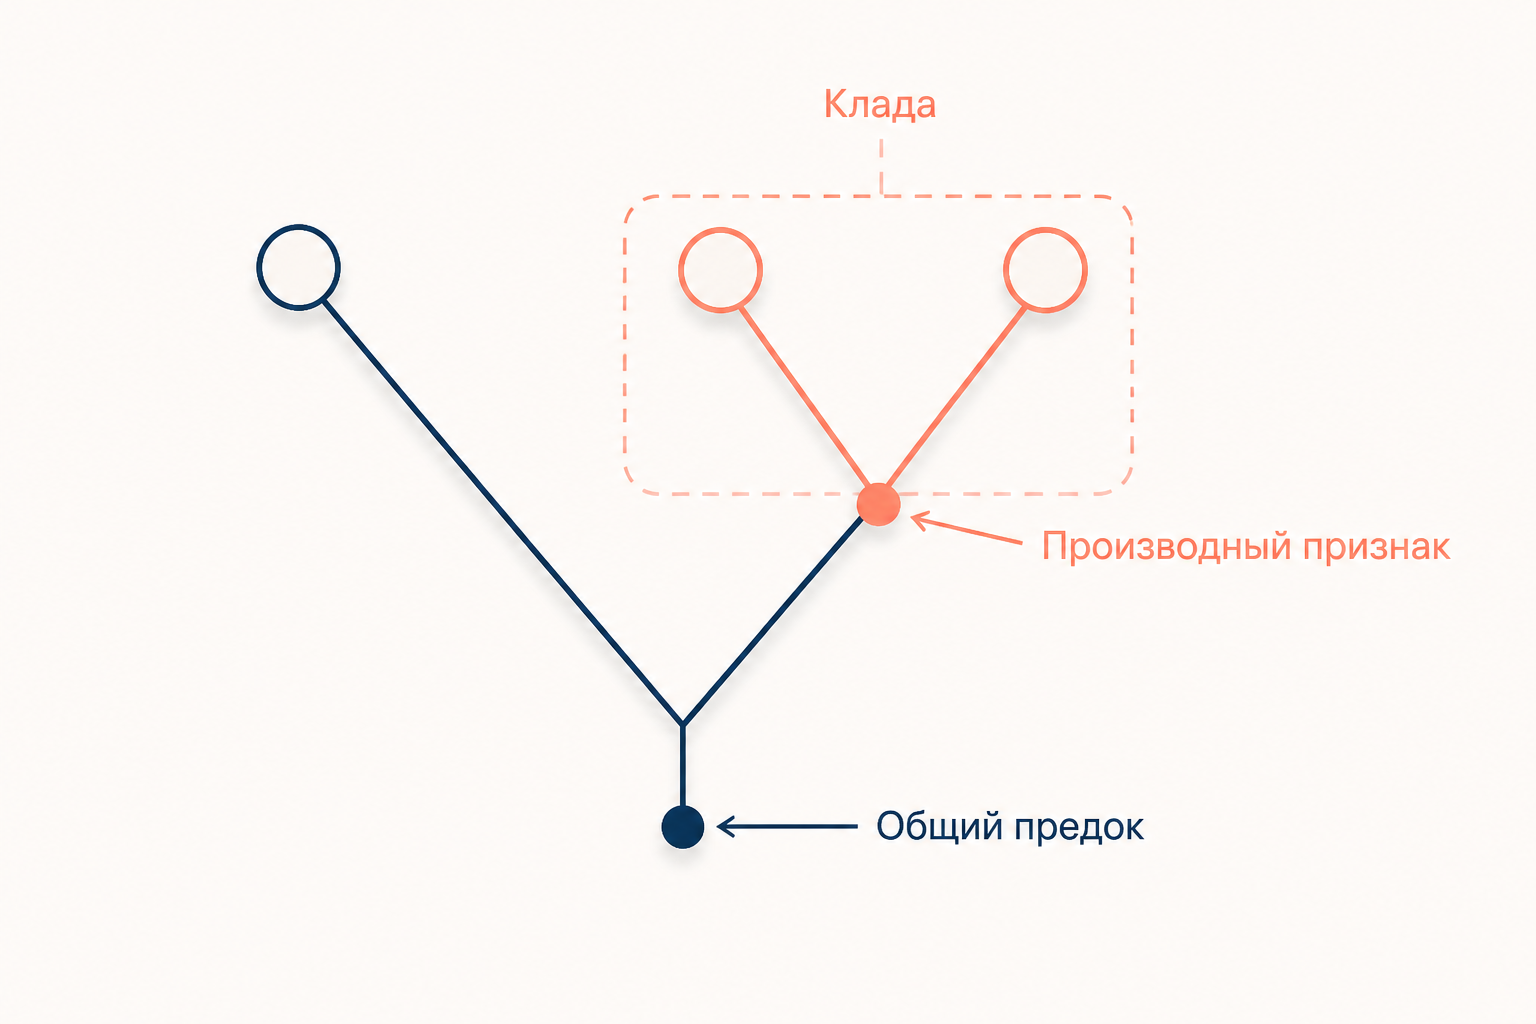
Синапоморфия понятна только на фоне трёх похожих слов.
- Симплезиоморфия - общее предковое состояние. Шерсть объединяет человека и мышь, но не доказывает, что они образуют отдельную кладу без остальных млекопитающих: это наследие более древнего предка. Общность есть, диагностической силы для узкой группы нет.
- Аутапоморфия - производное состояние, известное лишь у одного терминального таксона в данной матрице. Она полезна для его описания, но не соединяет его с родственником, поэтому сама по себе не выбирает ветвление.
- Гомоплазия - сходство, которое не унаследовано от ближайшего общего предка в нужном смысле. Оно возникает при конвергенции, параллельной эволюции или обратном изменении. Обтекаемая форма у акулы и дельфина - знакомый случай конвергенции; подробнее о похожих «возвратах» признаков есть в разборе закона Долло.
- Синапоморфия - производное состояние, совместно унаследованное членами одной клады. Она указывает на узел, а не просто на похожесть кончиков ветвей.
Слово «производный» не означает «сложнее» или «лучше приспособлен». Оно говорит только о полярности: это состояние возникло позже предкового в рассматриваемом сравнении. А слово «общий» не гарантирует происхождения: сначала нужно исключить гомоплазию независимыми признаками и моделью анализа.
Какие группы получаются на дереве
Монофилетическая группа, или клада, включает общего предка и всех его потомков, которые представлены в рассматриваемой классификации. Её можно «срезать» с кладограммы одним движением: ветвь и всё, что от неё отходит, останется внутри. Такая группа объясняется набором синапоморфий.
Парафилетическая группа тоже берёт одного предка, но намеренно исключает часть его потомков. Школьное «рептилии без птиц» - обычный пример: птицы происходят внутри линии рептилий, поэтому исключение птиц оставляет не всю ветвь. Это может быть удобным разговорным названием, но не кладой в строгой кладистике.
Полифилетическая группа собирает организмы из разных ветвей по сходному признаку, пропуская их ближайшего общего предка и другие линии. «Теплокровные» в смысле птиц и млекопитающих - такой учебный ярлык: эндотермия и связанные с нею черты формировались в этих линиях независимо. Полифилетичность часто выдаёт гомоплазия, а не синапоморфия.
Не стоит путать это с различием между популяциями и видами. Например, географическая изоляция может дать разветвление линии и в дальнейшем воспроизводиться на дереве как отдельные клады; механизм такого расхождения разобран в статье об аллопатрическом видообразовании. Но сама кладограмма не показывает, где был барьер и сколько длился процесс.
Учебная матрица для пяти таксонов
Пусть внешний таксон O и четыре изучаемых таксона A, B, C, D имеют четыре бинарных признака. Ноль обозначает предковое состояние, единица - производное. Это искусственная матрица для тренировки метода, а не данные о реальных организмах.
| Таксон | Признак 1 | Признак 2 | Признак 3 | Признак 4 |
|---|---|---|---|---|
| O | 0 | 0 | 0 | 0 |
| A | 1 | 0 | 0 | 0 |
| B | 1 | 1 | 0 | 0 |
| C | 1 | 1 | 1 | 0 |
| D | 1 | 1 | 1 | 1 |
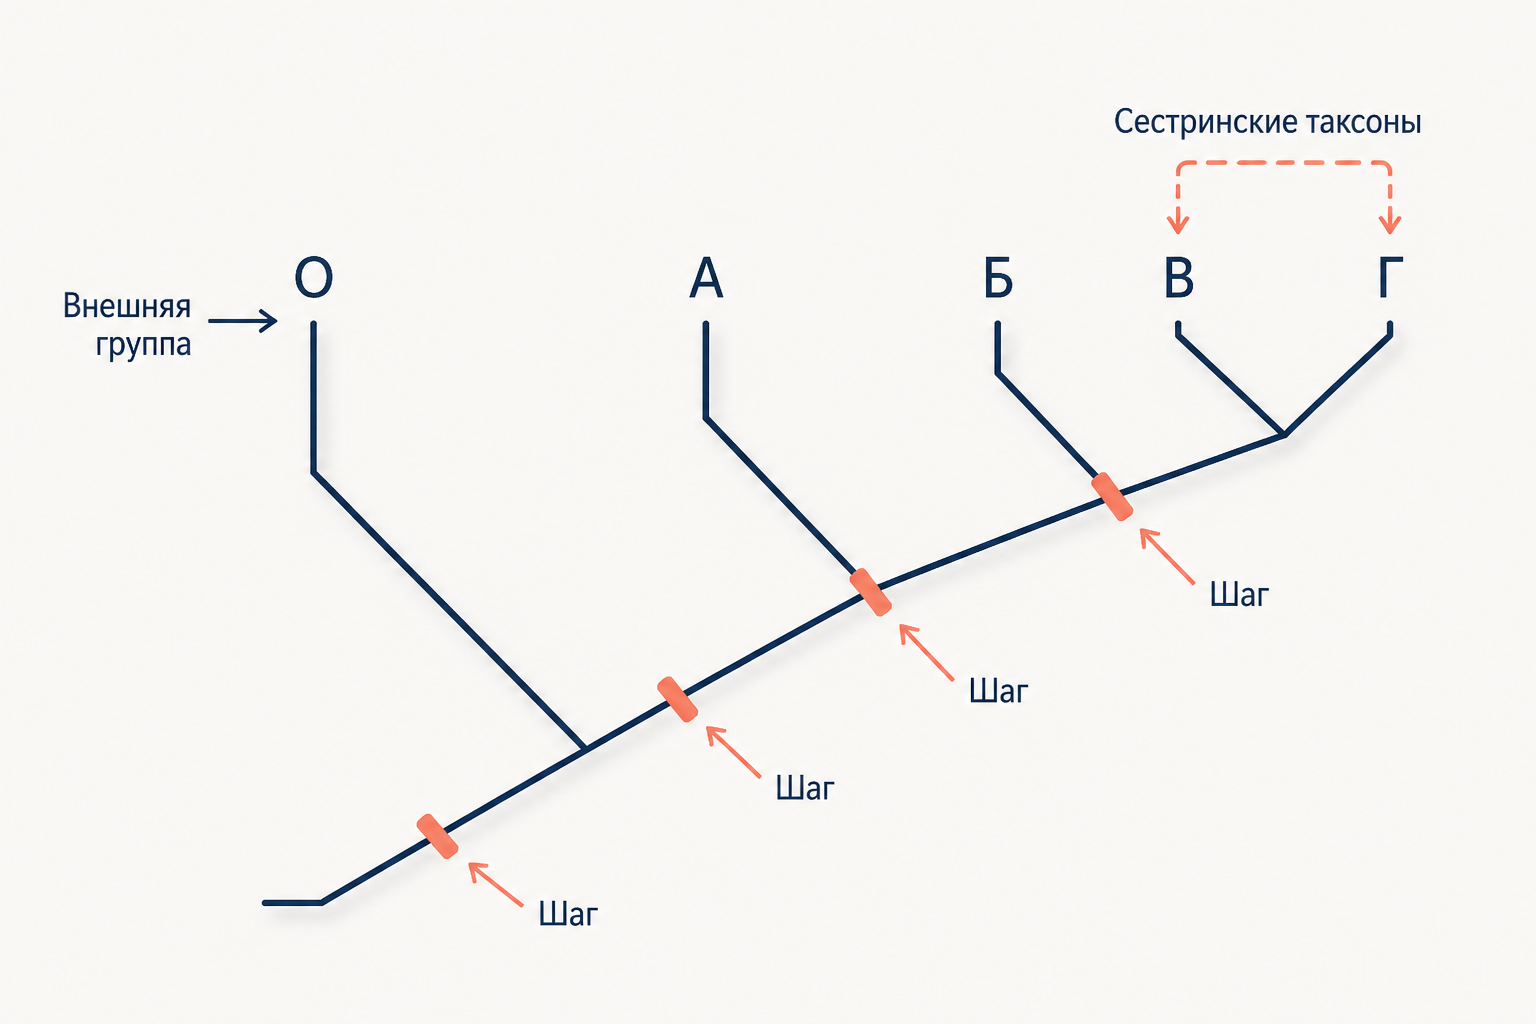
Первый признак объединяет A, B, C и D против внешней группы: это синапоморфия всей внутренней клады. Второй оставляет внутри неё B, C и D; третий - C и D; четвёртый - аутапоморфия D. Отсюда получается вложенный порядок ветвления: O | A | B | (C, D). Скобки важны: C и D - сестринские таксоны, потому что делят наиболее недавнего общего предка среди показанных таксонов.
Матрица - это не механическая кнопка «узнать родство». До кодирования надо решить, какие состояния сопоставимы, независимы ли признаки и как обрабатывать пропуски. Для реальных геномов добавляются выравнивание, выбор модели замен и неопределённость. Поэтому результат проверяют на расширенном наборе данных, а не объявляют каждую единицу в таблице вечной истиной.
Парсимония и подсчёт шагов
Принцип парсимонии предлагает среди сопоставляемых деревьев предпочесть то, которое объясняет наблюдаемые состояния минимальным числом эволюционных изменений. В нашей матрице на вложенном дереве каждый из четырёх признаков меняется с 0 на 1 один раз. Длина дерева равна четырём шагам: .
Поставим, напротив, C рядом с A, а D рядом с B. Тогда признак 2 присутствует у B, C и D, но эти ветви уже не образуют одну непрерывную группу. Чтобы объяснить распределение, придётся предположить как минимум два независимых приобретения или приобретение с последующей потерей. Один признак добавляет лишний шаг; аналогично могут «ломаться» другие. Такое дерево длиннее и менее парсимонично.
Парсимония - критерий выбора гипотезы, а не закон о том, что эволюция всегда экономна. При высокой частоте обратных изменений, конвергенции или длинных ветвях она может уверенно выбрать неверное дерево. Поэтому в современной филогенетике её часто сравнивают с вероятностными и байесовскими моделями. Синапоморфии остаются языком, которым описывают поддержанные ветви, но поддержка должна быть оценена данными, а не только красивым рисунком.
Кладограмма не равна филогенетическому дереву с масштабом
Кладограмма передаёт прежде всего топологию: кто с кем делит более недавнего общего предка. Длина её ветвей обычно ничего не говорит ни о времени, ни о числе замен. Поворачивать ветви вокруг узла можно как угодно: порядок названий сверху вниз не меняет родства, если узлы и соединения остались теми же.
Филогенетическое дерево - более широкое понятие. Оно тоже показывает топологию, но может быть филограммой, где длина ветви пропорциональна количеству изменений, или хронограммой, где длина связана со временем. Чтобы превратить генетическое дерево в хронограмму, нужны калибровки и допущения о скоростях, а не одна кладистическая матрица. Не принимайте близко нарисованные кончики за близких родственников: смотреть надо на общий узел.
Частые ошибки
- Считать любой общий признак синапоморфией. Общий признак может оказаться симплезиоморфией или гомоплазией; важны производность и история происхождения.
- Называть аутапоморфию доказательством клады. Уникальное состояние отличает один таксон, но не объединяет два и более.
- Записывать «рептилии без птиц» в клады. Такое исключение потомков общего предка делает группу парафилетической.
- Сравнивать порядок концов ветвей. Родство определяется узлами, а не тем, кто стоит рядом на странице.
- Понимать минимальное число шагов как доказательство. Парсимония выбирает наиболее экономную из проверенных гипотез и зависит от качества матрицы.
FAQ
Может ли признак быть синапоморфией на одном уровне и симплезиоморфией на другом?
Да. Признак, который объединяет большую кладу, становится общим предковым состоянием, когда внутри неё пытаются различить более узкие ветви.
Почему птицы важны в примере с рептилиями?
Птицы - потомки одной из линий рептилий. Если их исключить из группы «рептилии», останется предок не со всеми потомками, то есть парафилетическая группа.
Всегда ли синапоморфия морфологическая?
Нет. Ею может быть состояние нуклеотидной позиции, вставка, делеция, особенность поведения или морфологии, если сопоставление и направление изменения обоснованы.
Коротко
Синапоморфия - общий производный признак, унаследованный от общего предка, и главное свидетельство в пользу клады. Симплезиоморфия слишком древняя, аутапоморфия слишком уникальна, а гомоплазия создаёт ложное сходство. Кладограмма показывает порядок ветвления, а парсимония сравнивает число необходимых изменений; ни то ни другое не отменяет проверки данных и альтернативных моделей.
Читайте также
Молекулярные часы эволюции: как ДНК измеряет время
Молекулярные часы эволюции: что это, гипотеза постоянной скорости мутаций, калибровка по ископаемым, формула расчёта времени дивергенции и где часы сбоят.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.