Потенциалзависимые калиевые каналы: строение и роль
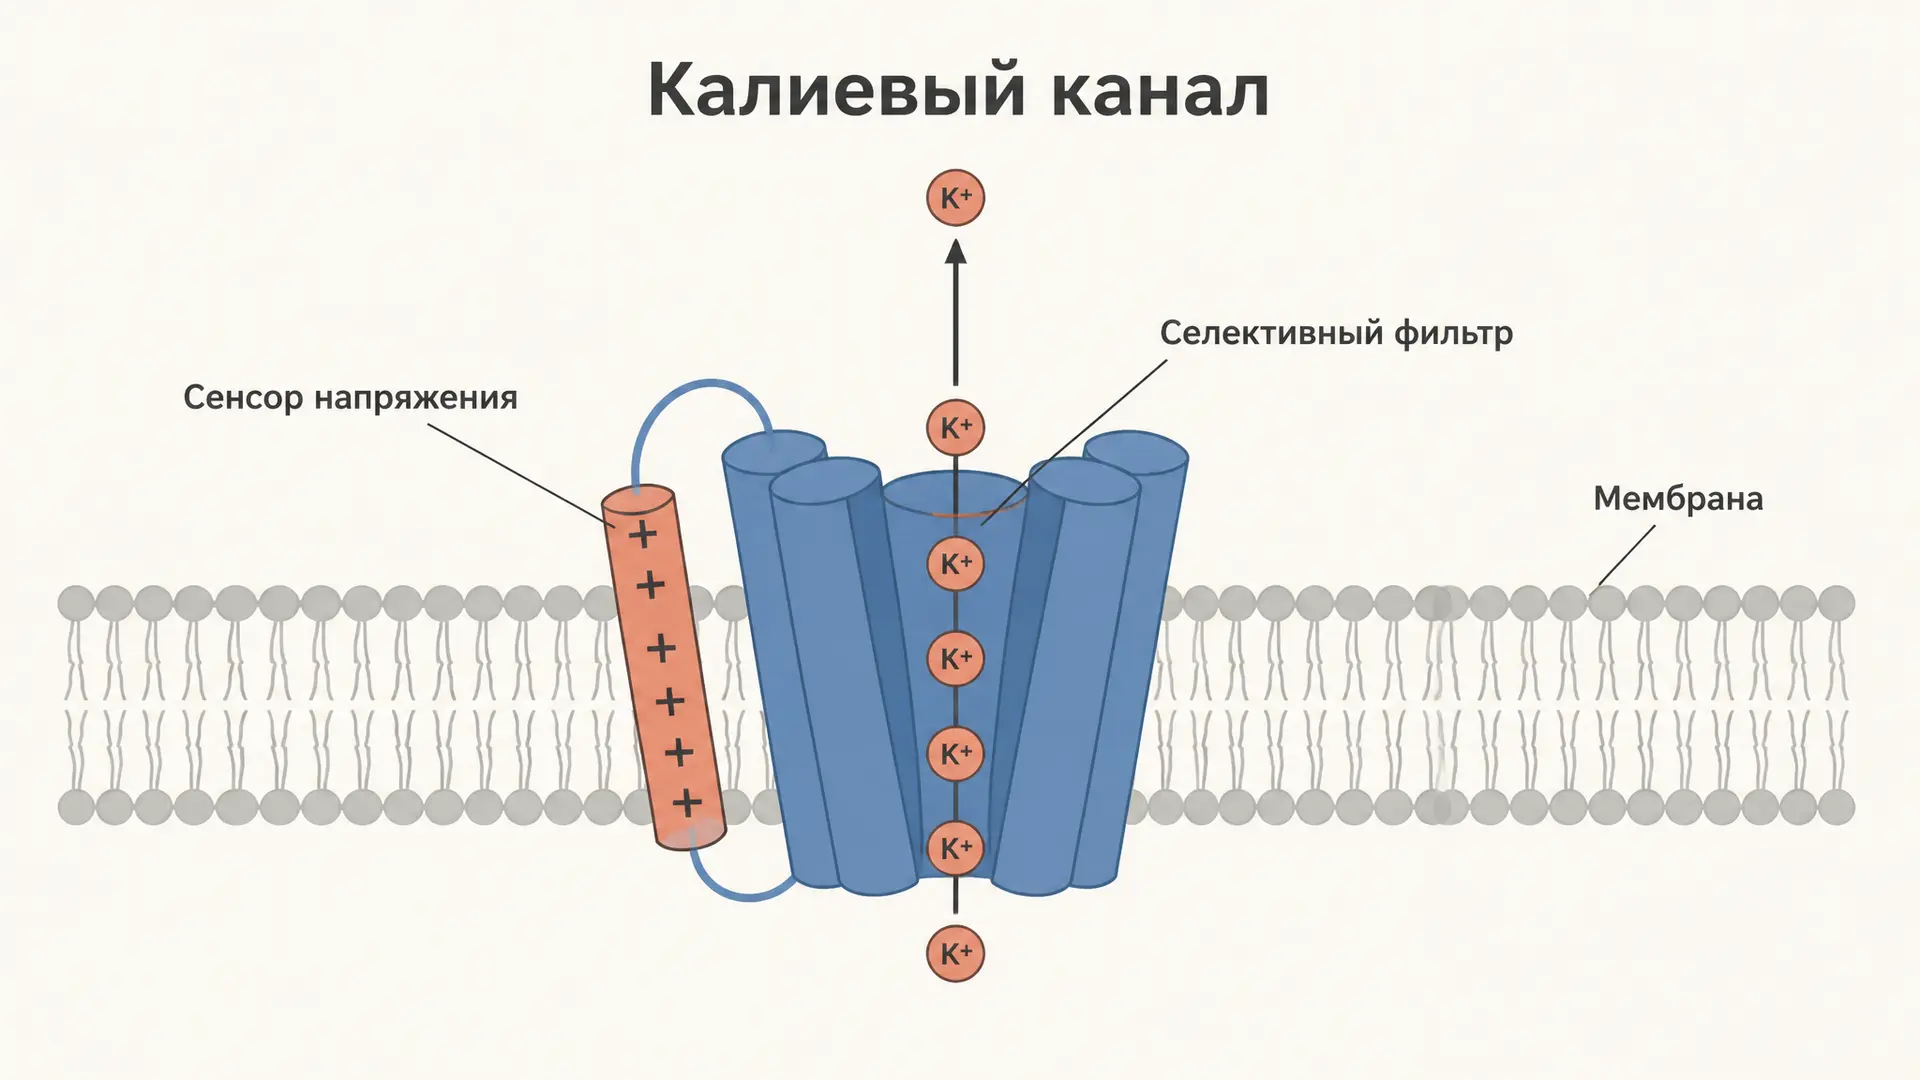
Потенциалзависимые калиевые каналы (K, или Kv) открываются при деполяризации мембраны и выпускают ионы K из клетки. Если натриевые каналы запускают потенциал действия, то калиевые его заканчивают: возвращают мембрану к покою, задают длительность импульса и то, как часто нейрон может стрелять. Это самое многочисленное семейство потенциалзависимых каналов у человека, около сорока генов, и на нём впервые увидели, как устроена ионная пора в атомном разрешении. Калькулятор ниже показывает, какой ток пропускает один такой канал при заданных концентрациях калия и потенциале мембраны.
Что такое потенциалзависимый калиевый канал
Kv-канал собран из четырёх отдельных белков-субъединиц, это тетрамер. Каждая субъединица проходит мембрану шесть раз: сегменты S1-S6. Первые четыре образуют сенсор напряжения, а S5, петля поры между ними и S6 выстилают общий ионный путь. Четыре субъединицы ставят свои поровые участки в центр, сенсоры остаются снаружи, по периметру.
В этом главное отличие от потенциал-зависимых натриевых каналов: у натриевого канала те же четыре повтора по шесть сегментов сшиты в одну длинную полипептидную цепь, а у калиевого это четыре независимые молекулы. Поэтому Kv-каналы легко собираются в гетеротетрамеры из разных субъединиц одного подсемейства, и число их вариантов в клетке гораздо больше, чем кодирующих генов. Снизу к тетрамеру часто пристраиваются вспомогательные бета-субъединицы, которые меняют скорость работы канала.
Строение: сенсор S4 и пора
Сегмент S4 несёт положительно заряженные аргинины и лизины, стоящие в каждой третьей позиции. В покое внутренняя сторона мембраны заряжена отрицательно и притягивает S4 вниз. При деполяризации поле ослабевает, S4 смещается к наружной стороне, а суммарно при открытии один канал переносит через мембрану около 12-13 элементарных зарядов. Это смещение фиксируют как воротный ток.
Движение S4 через линкер S4-S5 тянет внутренние концы спиралей S6. В закрытом канале они сходятся в плотный пучок у цитоплазматического входа поры и перекрывают его. При активации пучок раскрывается, и путь для ионов свободен. Ворота, таким образом, стоят внизу, а селективный фильтр наверху, у наружного устья, и это разные участки белка.
Структуру поры в 1998 году расшифровала группа Родерика МакКиннона на бактериальном канале KcsA. У KcsA только два сегмента на субъединицу и нет сенсора напряжения, зато пора устроена так же, как у всех калиевых каналов. В 2005 году та же лаборатория получила структуру канала Kv1.2 уже вместе с сенсорами. За работы по строению и механизму ионных каналов МакКиннон получил Нобелевскую премию по химии 2003 года, разделив её с Питером Эгром, открывшим аквапорины.
Селективный фильтр TVGYG: почему калий проходит, а натрий нет
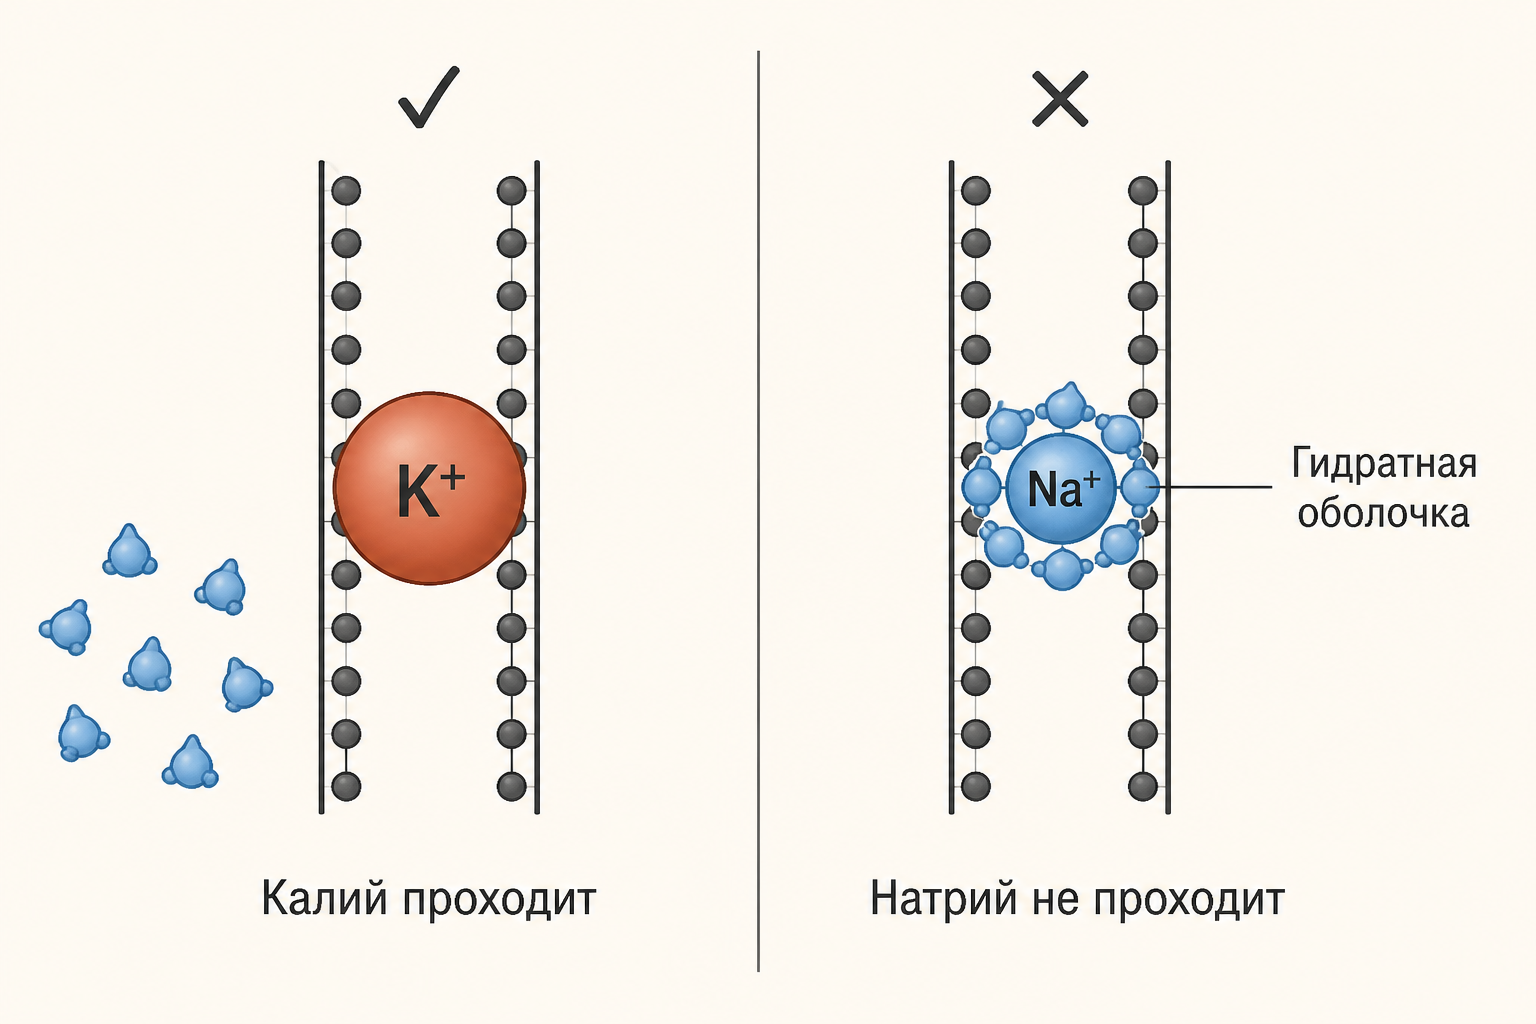
Фильтр образован петлёй поры с сигнатурной последовательностью TVGYG (треонин, валин, глицин, тирозин, глицин). Его длина около 12 ангстрем. Внутрь фильтра смотрят карбонильные атомы кислорода основной цепи, по одному от каждой субъединицы на уровень, и образуют четыре участка связывания. Ион K в каждом участке окружён восемью атомами кислорода примерно так же, как в воде его окружает гидратная оболочка.
Отсюда и селективность. Чтобы войти в фильтр, ион должен сбросить воду, а это стоит энергии. Для калия затраты компенсируются: кислороды фильтра стоят ровно на том расстоянии, на котором стояла бы вода. Ион Na меньше (радиус 0,95 ангстрема против 1,33 у калия), жёсткий фильтр не может сжаться под него, и потеря воды остаётся некомпенсированной. В итоге канал пропускает калий более чем в тысячу раз охотнее натрия, а самые проводящие калиевые каналы пропускают до ионов в секунду, почти на пределе диффузии. Скорость обеспечивает взаимное отталкивание: в фильтре одновременно сидят два иона K через одну позицию, и вход третьего выталкивает крайний наружу.
Активация и инактивация: задержанный выпрямитель и A-ток
Классический ток задержанного выпрямления открывается с задержкой в миллисекунды после деполяризации и почти не инактивируется за время импульса. В модели Ходжкина-Хаксли его проводимость пропорциональна : четыре независимые частицы, которые должны одновременно занять разрешающее положение. Молекулярная структура позже подтвердила эту догадку: четыре сенсора в четырёх субъединицах.
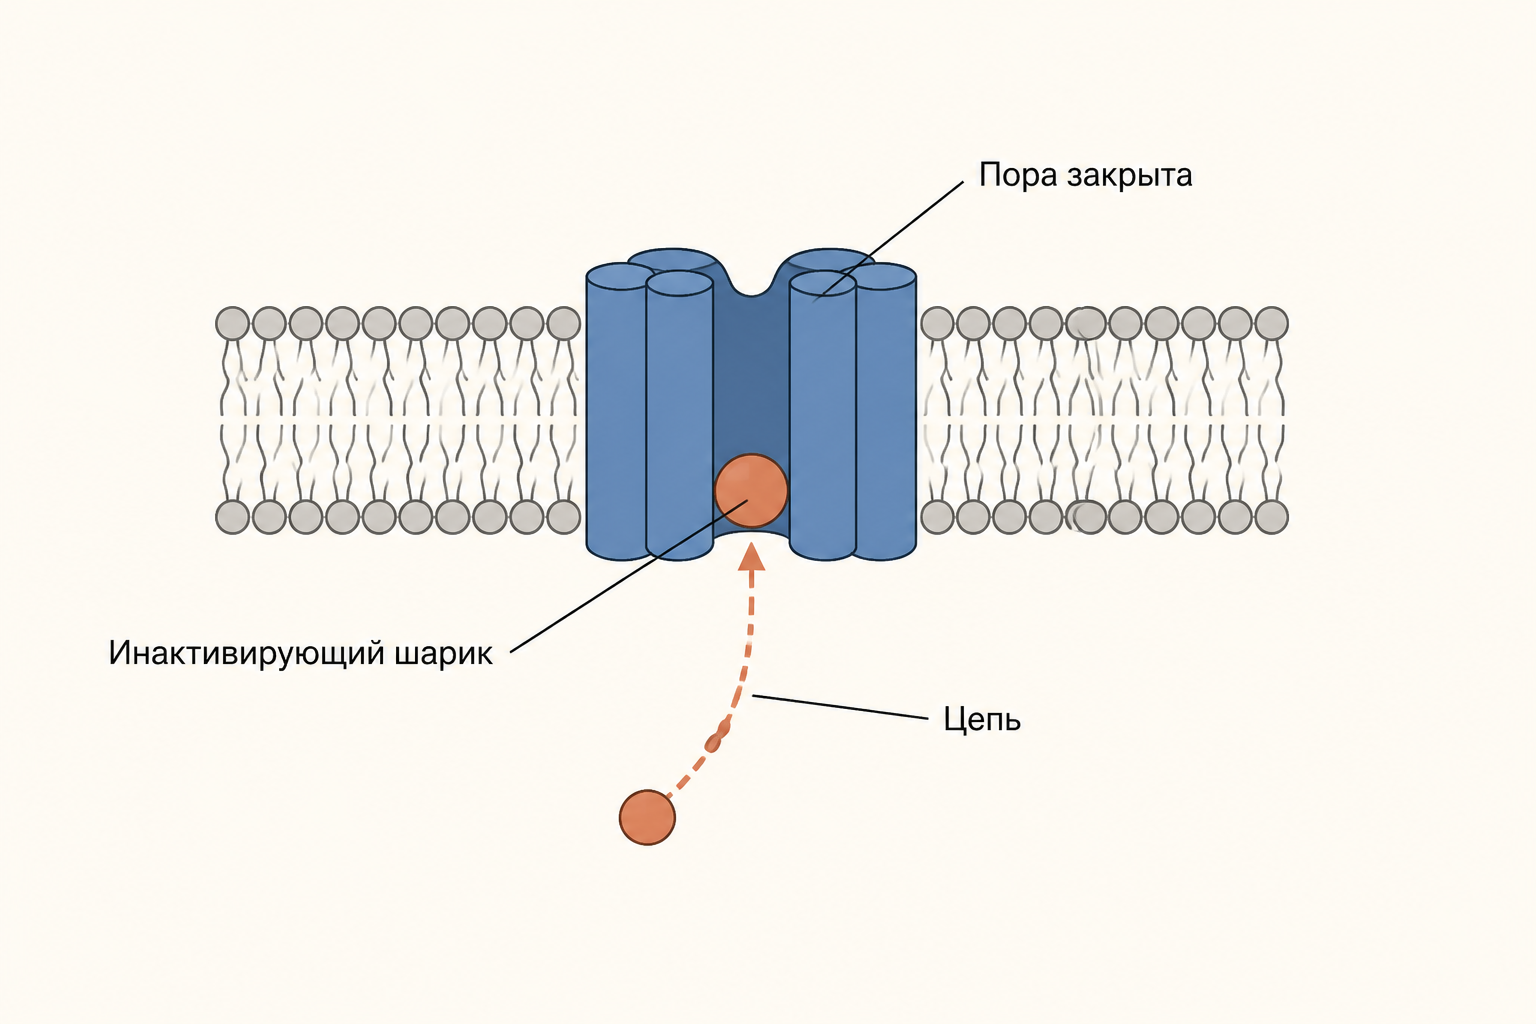
A-ток ведёт себя иначе. Он включается уже при подпороговых потенциалах, быстро нарастает и за десятки миллисекунд сам гаснет. Механизм быстрой, или N-типа, инактивации изучили на канале Shaker. Это ген дрозофилы, мутанты по которому дёргают лапками под эфирным наркозом, и он стал первым клонированным калиевым каналом. Первые двадцать аминокислот N-конца каждой субъединицы образуют шарик на гибкой цепи. После открытия шарик входит во внутреннее устье поры и затыкает его. Если отрезать N-конец, инактивация исчезает, а добавленный синтетический пептид-шарик её возвращает. Помимо этого у Kv-каналов есть медленная инактивация C-типа, при которой сужается сам селективный фильтр.
Семейства Kv-каналов
Номенклатура Kv1-Kv12 объединяет каналы по сходству последовательностей. Для учебных задач важны шесть групп.
| Семейство | Ген, прототип | Ток | Главная черта |
|---|---|---|---|
| Kv1 | KCNA, Shaker | задержанный выпрямитель, у Kv1.4 A-ток | аксоны и области у перехватов Ранвье, чувствителен к 4-аминопиридину |
| Kv2 | KCNB, Shab | медленный задержанный выпрямитель | основной калиевый ток сомы пирамидных нейронов |
| Kv3 | KCNC, Shaw | быстрый высокопороговый | узкие ПД и разряды в сотни герц |
| Kv4 | KCND, Shal | A-ток, в сердце I | быстрая инактивация, задержка первого спайка |
| Kv7 | KCNQ | M-ток, в сердце I | не инактивируется, подавляется через мускариновые рецепторы |
| Kv11 | KCNH2 (hERG) | I в сердце | быстрая инактивация, мишень многих лекарств |
M-ток каналов KCNQ2/KCNQ3 открыт уже около мВ, медленный и не инактивируется. Он работает как тормоз: чем дольше нейрон деполяризован, тем больше M-тока и тем реже спайки. Ацетилхолин через мускариновые рецепторы снимает этот тормоз. Канал hERG устроен наоборот: при деполяризации он быстро инактивируется, а при реполяризации быстро выходит из инактивации и даёт мощный выходящий ток именно тогда, когда он нужен сердцу.
Роль в реполяризации и частоте разрядов
Как Kv-ток вписывается в фазы импульса, подробно разобрано в статье о фазах потенциала действия и ионных механизмах. Здесь посмотрим на один канал в цифрах. Направление и силу тока задаёт разница между потенциалом мембраны и равновесным потенциалом калия (вывод формулы есть в материале о потенциале покоя и уравнении Нернста). При мМ, мМ и 37 °C:
На пике потенциала действия, при мВ, движущая сила равна мВ. Один открытый канал проводимостью 10 пСм пропускает ток
это около 6,8 млн ионов K в секунду. При том же потенциале открыто 98% каналов. В покое, при мВ, движущая сила всего 19 мВ, а открыта менее одного процента каналов (0,007 по условной кривой активации), и средний ток на канал падает более чем в восемьсот раз. Отсюда и функция: канал молчит в покое и включается ровно тогда, когда мембрана деполяризована и калию есть куда течь.
Состав каналов определяет рисунок разряда. Быстрые Kv3 позволяют интернейронам давать сотни импульсов в секунду, A-ток отодвигает первый спайк, M-ток создаёт адаптацию частоты. В сердце I и I определяют конец плато потенциала действия кардиомиоцита. Градиент калия, на котором всё это работает, поддерживает Na/K-АТФаза: если внеклеточный калий вырастет до 8 мМ, сместится к мВ и мембрана деполяризуется.
Блокаторы и каналопатии
Тетраэтиламмоний (ТЭА) закупоривает пору: с внутренней стороны он входит в заполненную водой полость под фильтром, снаружи связывается у устья. Вместе с тетродотоксином, блокирующим натриевые каналы, ТЭА стал стандартным способом разделить натриевый и калиевый токи в опытах с фиксацией потенциала. 4-аминопиридин проникает в клетку в незаряженной форме и блокирует каналы Kv1, Kv3 и Kv4 изнутри. Змеиный дендротоксин избирательно выключает часть каналов Kv1.
Мутации в генах Kv-каналов вызывают наследственные каналопатии. Синдром удлинённого QT 1-го типа связан с KCNQ1, 2-го типа с KCNH2 (hERG): реполяризация желудочков затягивается, растёт риск аритмий. Широкая внутренняя полость hERG связывает множество посторонних молекул, поэтому новые лекарства обязательно проверяют на блок этого канала, и ряд препаратов был отозван из-за удлинения QT. Эпизодическая атаксия 1-го типа вызвана мутациями KCNA1 (Kv1.1): приступы нарушения координации с миокимией между ними. Мутации KCNQ2 и KCNQ3 дают доброкачественные семейные судороги новорождённых.
Частые ошибки
- Считать, что калиевый канал пропускает всё, что меньше калия. Натрий меньше, но не проходит: фильтр подогнан под размер дегидратированного K.
- Путать ворота и фильтр. Ворота (пучок S6) стоят у внутреннего устья и открываются от напряжения, фильтр наверху и отвечает за выбор иона.
- Приписывать Kv-каналу одну полипептидную цепь, как у натриевого. Kv-канал это тетрамер из четырёх отдельных субъединиц.
- Считать, что все Kv-каналы работают как задержанный выпрямитель. A-ток быстро инактивируется, M-ток не инактивируется вовсе, hERG инактивируется при деполяризации.
- Путать участки фильтра S1-S4 с трансмембранными сегментами S1-S4: названия совпадают, но это разные структуры.
FAQ
Почему ток называют задержанным выпрямителем? Канал открывается с задержкой после деполяризации, а проводимость растёт при положительных потенциалах, поэтому выходящий ток течёт легче входящего, как через выпрямитель.
Зачем нейрону несколько типов Kv-каналов, если все выпускают калий? Они различаются порогом, скоростью и инактивацией. Их набор определяет длительность импульса, задержку первого спайка и максимальную частоту разряда.
Чем инактивация N-типа отличается от C-типа? N-тип быстрый: пору изнутри закрывает шарик на N-конце. C-тип медленный: перестраивается сам селективный фильтр у наружного устья.
Коротко
Потенциалзависимые калиевые каналы собраны из четырёх субъединиц по шесть сегментов: S4 чувствует напряжение, пучок S6 работает как ворота, а фильтр TVGYG пропускает дегидратированный калий и отсеивает натрий. Каналы разных семейств, от задержанного выпрямителя и A-тока до KCNQ и hERG, отвечают за реполяризацию, длительность импульса и частоту разрядов. ТЭА и 4-аминопиридин их блокируют, а мутации приводят к синдрому удлинённого QT и эпизодической атаксии.
Читайте также
Базальные ганглии и регуляция движений: пути и дофамин
Разбор базальных ганглиев и регуляции движений: состав ядер, прямой и непрямой пути, роль дофамина, петля с корой и таламусом, нарушения при дефиците дофамина.
Гематоэнцефалический барьер: строение и функции
Гематоэнцефалический барьер - что это, из каких клеток состоит, как регулирует транспорт веществ в мозг и почему нарушается при болезнях. Физиология ЦНС.
Клетки Гольджи мозжечка: тормозные интернейроны коры
Клетки Гольджи мозжечка - крупные тормозные интернейроны зернистого слоя. Их роль в обработке сигналов, связи с клетками-зёрнами и контроле возбудимости коры мозжечка.
Потенциал концевой пластинки: нервно-мышечный синапс
Как работает потенциал концевой пластинки в нервно-мышечном синапсе: ацетилхолин, ионные токи, отличие от потенциала действия, квантовая природа и частые ошибки студентов.
Рефрактерный период: абсолютный и относительный
Рефрактерный период абсолютный и относительный: механизм ионных каналов, длительность, отличия, роль в сердце и нейроне. Разбор с примерами и схемами.
ВПСП и ТПСП: механизмы возникновения в нейроне
ВПСП и ТПСП - возбуждающий и тормозной постсинаптические потенциалы нейрона: ионные механизмы AMPA и ГАМК-рецепторов, суммация и роль в интеграции нервных сигналов.