Обратный захват нейромедиатора: транспортёры и лекарства
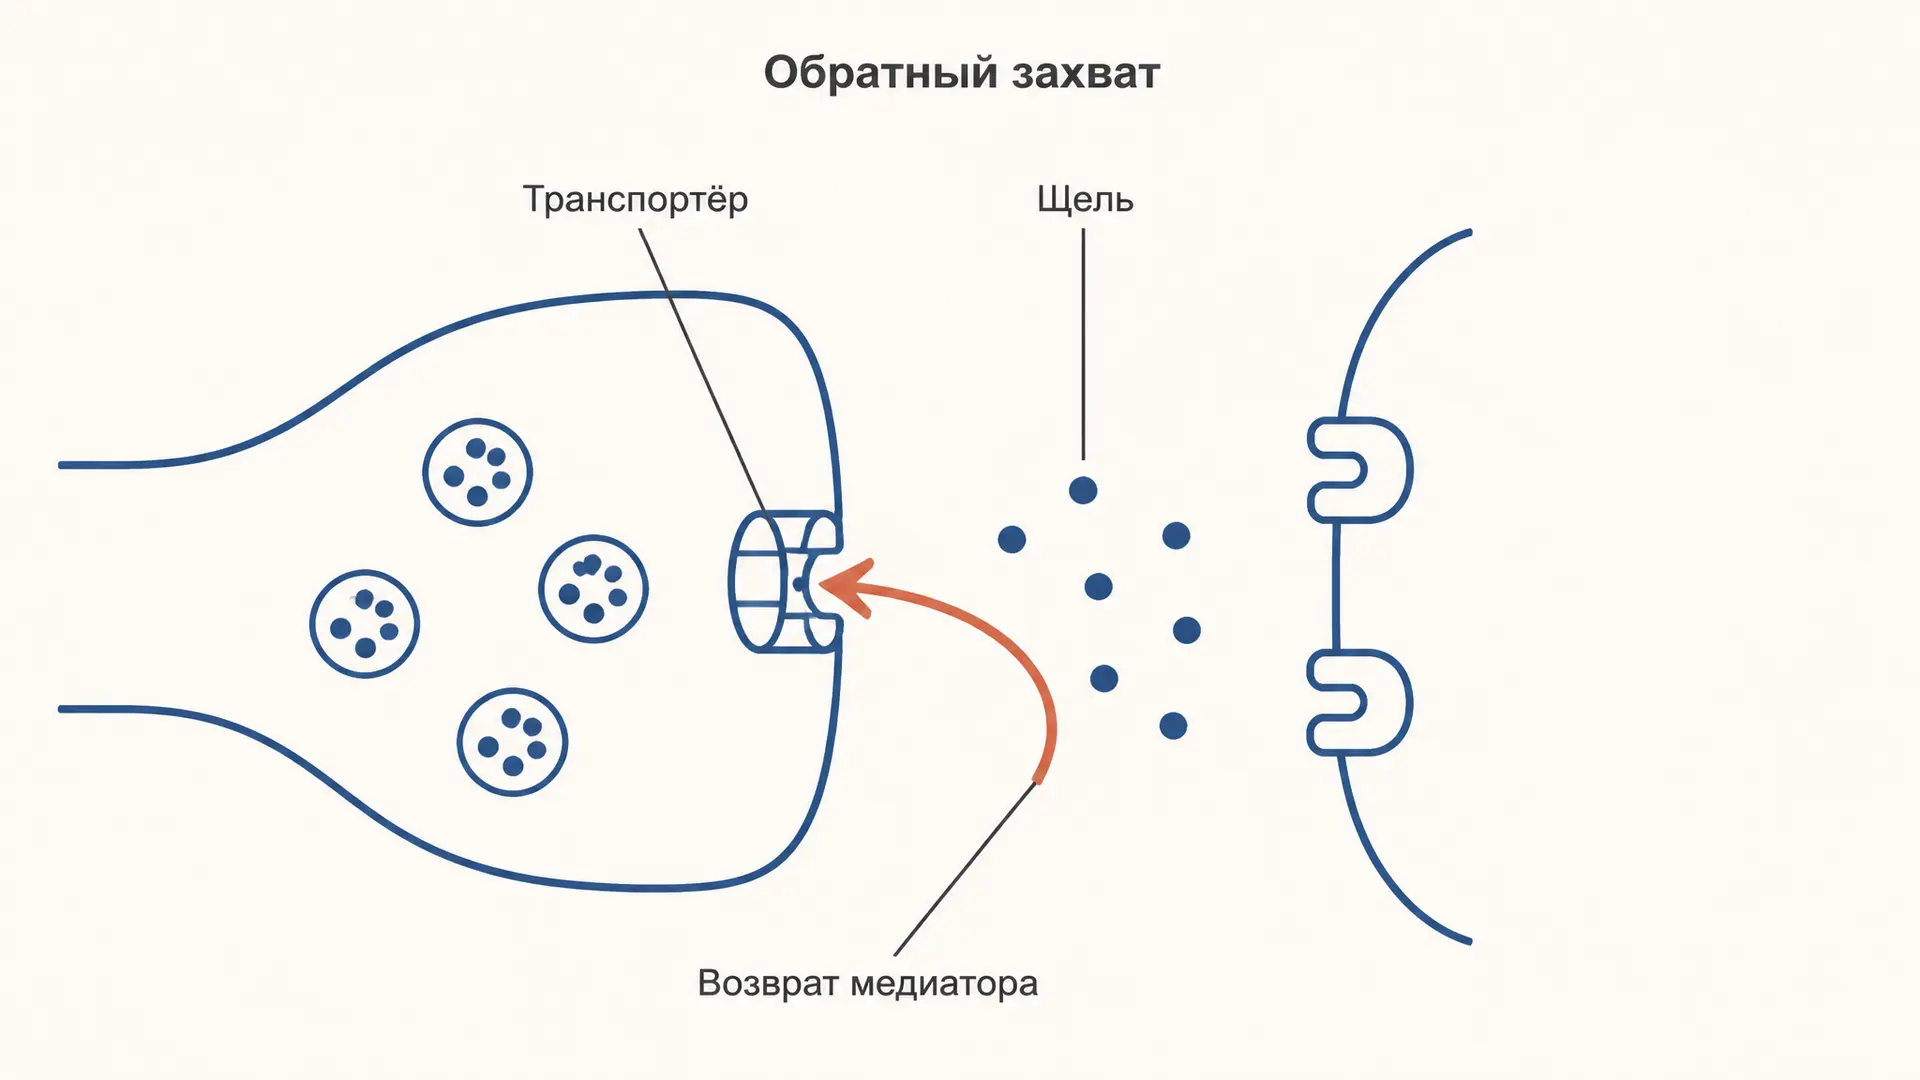
Выброшенный в синаптическую щель медиатор надо убрать за десятки миллисекунд, иначе синапс перестанет различать отдельные импульсы и превратится в размазанный фоновый сигнал. У большинства медиаторов эту работу делает не фермент, а белок-переносчик, который затягивает молекулы обратно в то самое окончание, откуда они только что вышли. Такой возврат называют обратным захватом, и именно он оказался главной мишенью психофармакологии: антидепрессанты, психостимуляторы и кокаин действуют на одни и те же переносчики. Калькулятор ниже показывает, как меняется время очистки щели, когда транспортёр частично заблокирован.
Что такое обратный захват и зачем он нужен
Обратный захват (реаптейк) - это перенос молекул медиатора из внеклеточного пространства обратно в пресинаптическое окончание или в соседнюю глиальную клетку с помощью специального мембранного белка. Перенос идёт против градиента концентрации: снаружи медиатора наномоли на литр, внутри окончания - микромоли и выше в везикулах.
У механизма две работы сразу. Первая - прекращение сигнала. Пока медиатор в щели, он продолжает связываться с рецепторами и генерировать постсинаптические потенциалы; чтобы нейрон различал импульсы с частотой 50 или 100 Гц, концентрация должна упасть за единицы и десятки миллисекунд. Вторая работа - экономия. Синтез моноаминов требует дефицитных предшественников (тирозина для дофамина, триптофана для серотонина) и нескольких ферментативных шагов, поэтому дешевле вернуть готовую молекулу, чем собирать её заново.
Три пути из синаптической щели
Медиатор покидает щель тремя способами, и они конкурируют друг с другом.
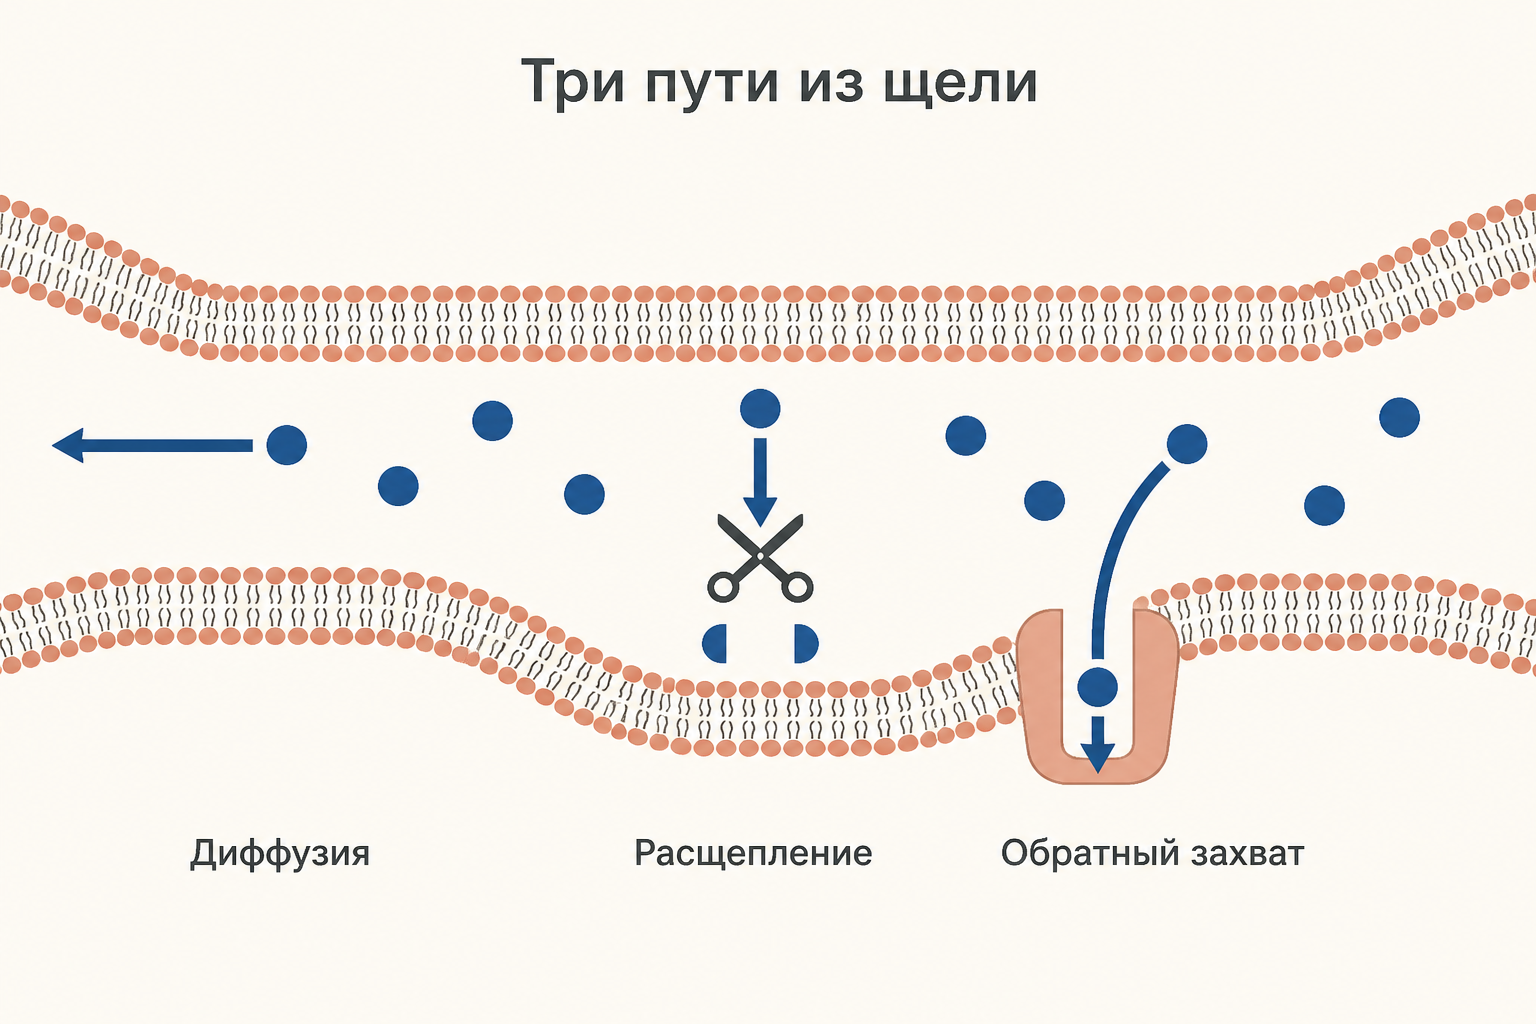
Диффузия уносит молекулы в стороны от активной зоны: она работает всегда, но сама по себе слишком медленна и вдобавок создаёт перекрёстные помехи между соседними синапсами. Ферментативное расщепление - главный путь для ацетилхолина: ацетилхолинэстераза разрезает его прямо в щели за миллисекунды. Обратный захват - основной путь для моноаминов (дофамин, серотонин, норадреналин) и аминокислотных медиаторов (глутамат, ГАМК, глицин).
Ацетилхолин здесь удобная точка контраста. В холинергическом синапсе обратно захватывается не сам медиатор, а только продукт его распада: холин возвращается в окончание и снова идёт на синтез. Подробный разбор этой схемы - в статье про синаптическую передачу с ацетилхолином. У моноаминов всё иначе: в окончание возвращается целая молекула медиатора, готовая к повторному использованию.
Транспортёры SLC6: DAT, SERT и NET
Переносчики моноаминов и аминокислотных медиаторов образуют семейство SLC6 - натрий-зависимых симпортёров. Это белки с двенадцатью трансмембранными сегментами; их пространственная укладка расшифрована на бактериальном гомологе LeuT и оказалась общей для всего семейства. Работают они по принципу шлюза: центр связывания поочерёдно открывается то наружу, то внутрь клетки, и молекула никогда не видит обе стороны мембраны одновременно.
Ключевые представители: DAT (ген SLC6A3) для дофамина, SERT (SLC6A4) для серотонина, NET (SLC6A2) для норадреналина, GAT1 (SLC6A1) для ГАМК и переносчики глицина. Глутамат стоит особняком: его убирают переносчики EAAT из другого семейства, причём преимущественно астроциты, а не сам нейрон.
Избирательность транспортёров не абсолютна. NET переносит дофамин даже лучше, чем норадреналин, поэтому в префронтальной коре, где плотность DAT низкая, дофамин из щели забирает именно норадреналиновый переносчик. Это не курьёз, а объяснение того, почему препараты, формально нацеленные на норадреналин, влияют на дофаминовую передачу в коре.
Натриевый градиент как движущая сила
Транспортёр не расщепляет АТФ. Энергию он берёт из электрохимического градиента натрия, поэтому обратный захват относят к вторично активному транспорту.
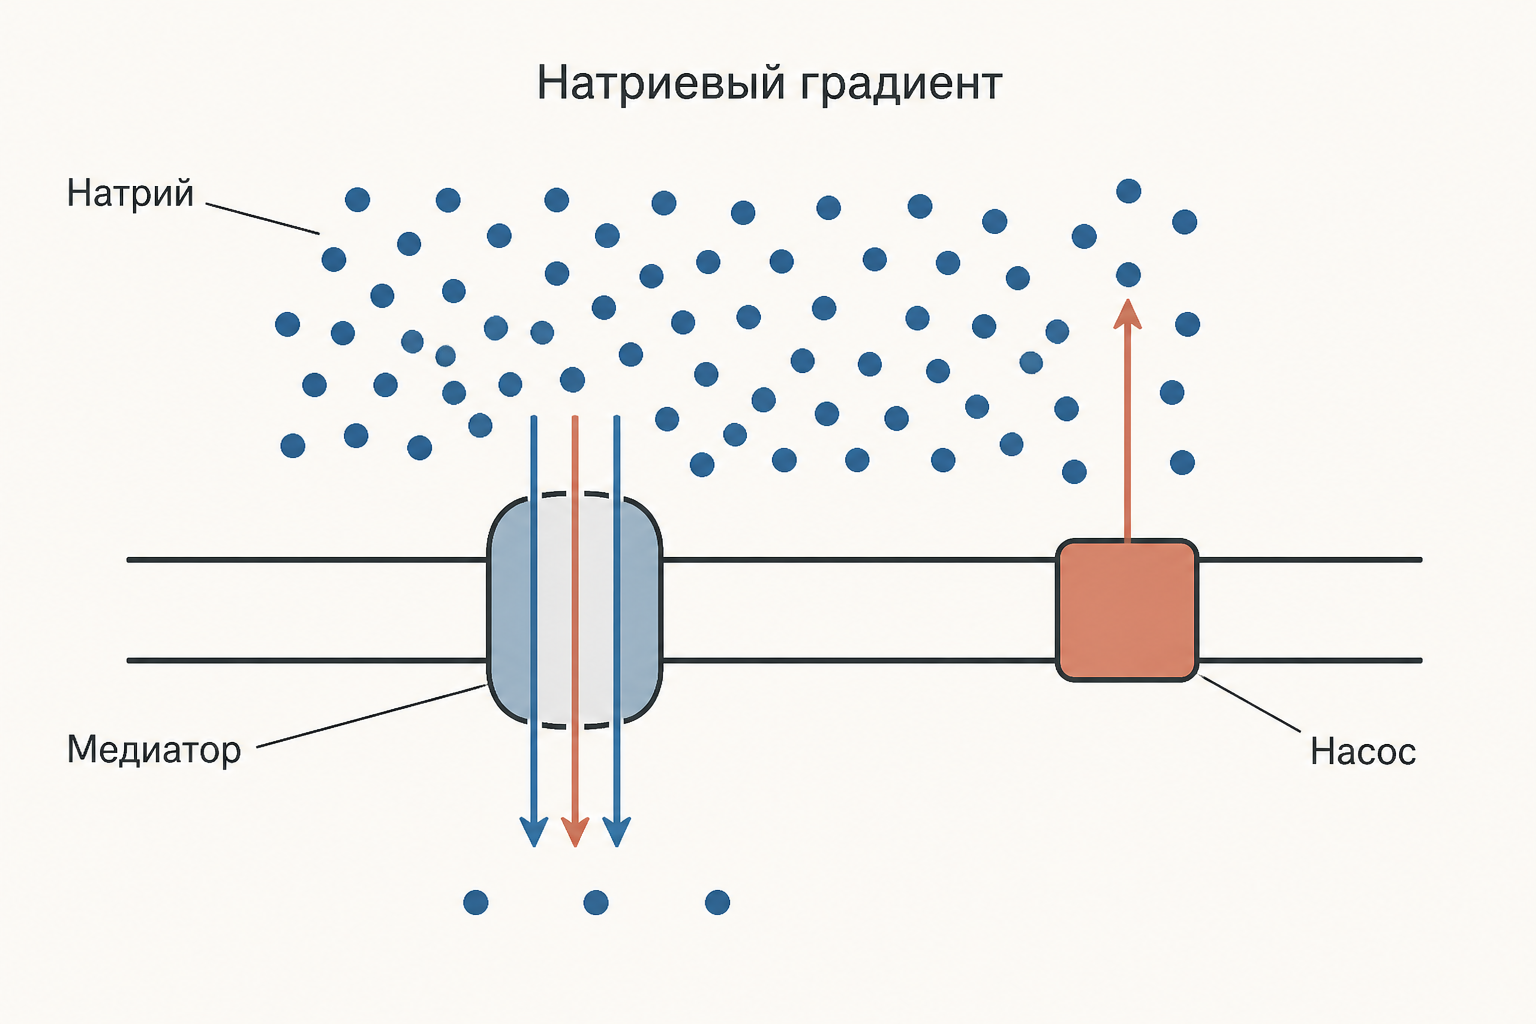
Снаружи натрия примерно 145 ммоль/л, внутри - около 12 ммоль/л, и вместе с отрицательным потенциалом на мембране это даёт мощную движущую силу. Транспортёр использует её напрямую: DAT и NET втягивают одну молекулу медиатора вместе с двумя ионами и одним , SERT - с одним и одним , попутно выводя наружу ион . Градиент натрия непрерывно восстанавливает натрий-калиевая АТФаза, и вот она уже тратит АТФ. Отсюда простое следствие: захват медиатора зависит от энергетики клетки опосредованно, через насос.
Из этой же логики вытекает эффект, о котором часто забывают. Если градиент натрия падает (ишемия, отравление уабаином, накопление натрия внутри клетки), направление переноса меняется на противоположное: транспортёр начинает выбрасывать медиатор наружу. Такой реверсивный транспорт - не поломка, а нормальный режим работы белка при других условиях, и именно на нём построено действие амфетамина.
Судьба медиатора после захвата
Внутри окончания молекулу ждёт развилка. Первый путь - повторная загрузка в везикулы через везикулярный переносчик VMAT2. Он тоже работает не на АТФ напрямую, а на протонном градиенте, который создаёт вакуолярная H-АТФаза мембраны везикулы: медиатор идёт внутрь в обмен на выход двух протонов. Резерпин необратимо блокирует VMAT2, везикулы остаются пустыми, и запасы моноаминов истощаются.
Второй путь - разрушение. Моноаминоксидаза (МАО), закреплённая на наружной мембране митохондрий, окисляет избыток медиатора; конечными продуктами становятся ДОФУК и гомованилиновая кислота для дофамина, 5-гидроксииндолуксусная кислота для серотонина. Их концентрация в спинномозговой жидкости служит косвенной мерой оборота медиатора. Ингибиторы МАО поднимают внутриклеточный пул моноаминов и потому применяются как антидепрессанты.
Соотношение между двумя путями подвижно: чем активнее нейрон и чем полнее везикулярный пул, тем большая доля захваченных молекул уходит на окисление.
Кинетика: константы Km и Vmax
Захват насыщаем, поэтому его описывают уравнением Михаэлиса-Ментен:
Здесь - концентрация медиатора снаружи, - концентрация полунасыщения переносчика, - потолок скорости, пропорциональный числу молекул транспортёра на мембране. Для DAT в стриатуме типичны мкмоль/л и мкмоль/(лс).
Отсюда два режима. Сразу после выброса, когда , переносчик насыщен и работает с почти постоянной скоростью : концентрация падает линейно. В хвосте, когда , убыль становится экспоненциальной с постоянной времени
Конкурентный блокатор занимает то же место связывания, что и медиатор, и потому не снижает , а повышает кажущуюся константу:
Численно это выглядит так. При пике 1 мкмоль/л концентрация дофамина падает вдвое примерно за 160 мс. Пятикратный рост кажущейся (то есть ) растягивает то же падение до 298 мс - почти вдвое дольше, при полностью сохранном потолке скорости. Именно это и делает калькулятор в начале статьи: обе кривые на правом графике выходят на одну высоту, но красная добирается до неё позже.
Блокада транспортёра: от СИОЗС до кокаина
Фармакология обратного захвата держится на двух принципиально разных механизмах.
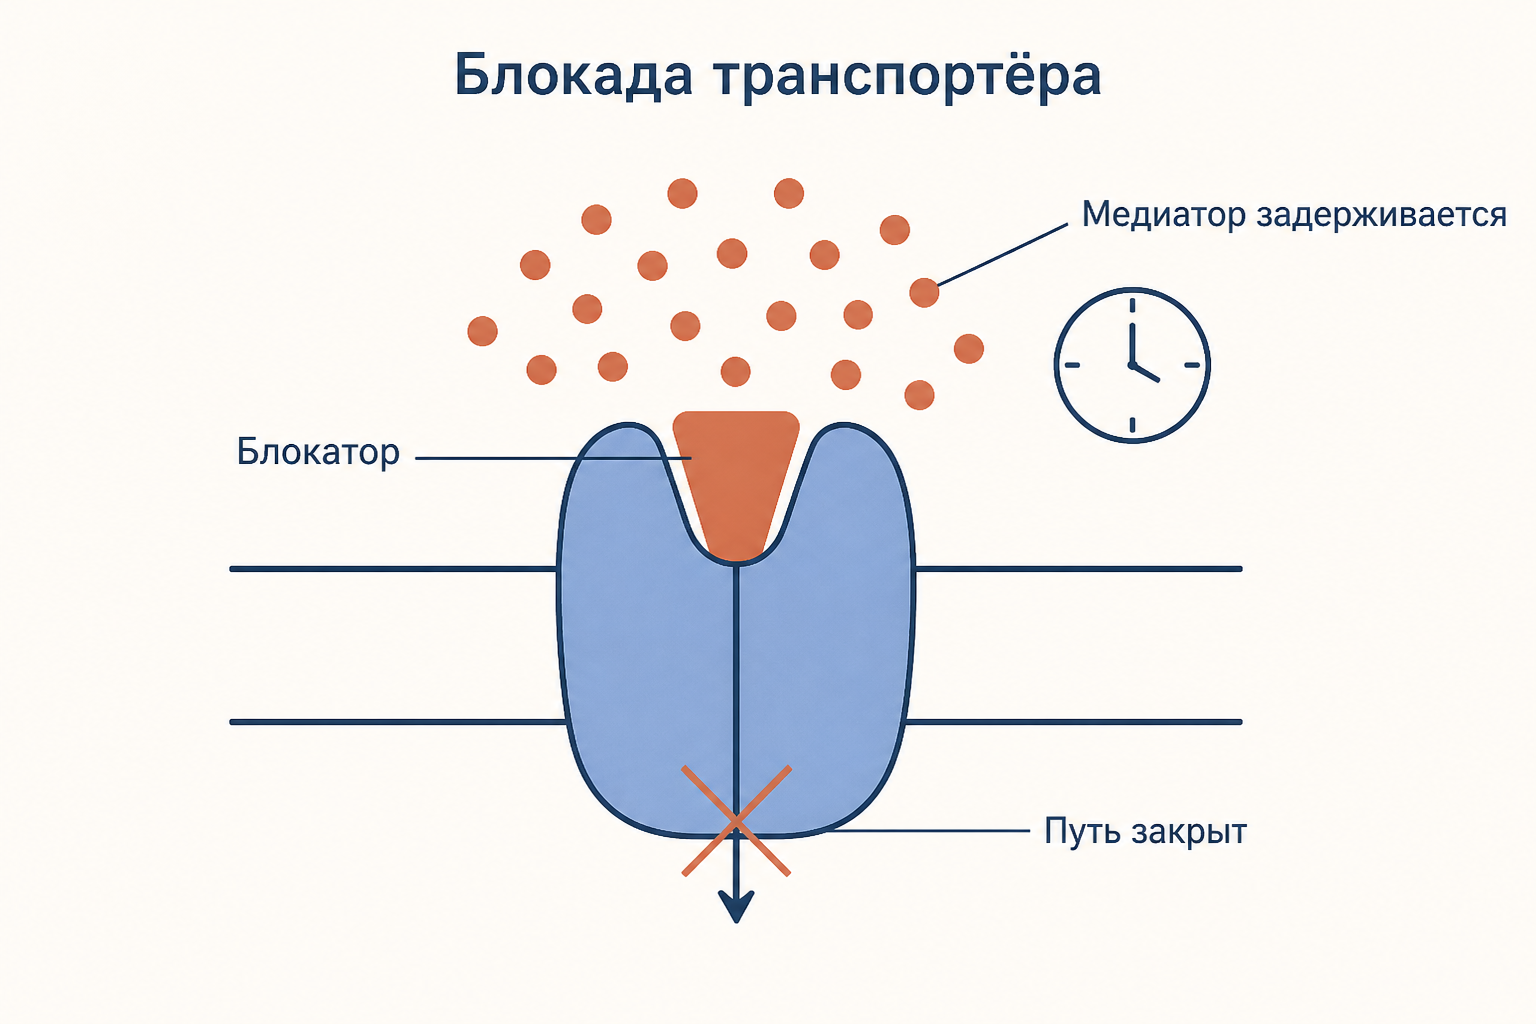
Первый механизм - истинная блокада. Селективные ингибиторы обратного захвата серотонина (флуоксетин, сертралин, эсциталопрам) садятся на SERT и не пропускают медиатор внутрь. Трициклические антидепрессанты (амитриптилин, имипрамин) блокируют SERT и NET одновременно, но вдобавок цепляют мускариновые, гистаминовые и альфа-адренорецепторы - отсюда сухость во рту, седация и ортостатическая гипотензия. Ингибиторы обратного захвата серотонина и норадреналина (венлафаксин, дулоксетин) дают тот же двойной эффект без лишних рецепторных мишеней. Бупропион работает по DAT и NET. Кокаин блокирует все три переносчика сразу, и резкий подъём дофамина в прилежащем ядре определяет его наркогенный потенциал.
Второй механизм - подмена субстрата. Амфетамин не блокирует DAT, а сам проходит через него внутрь окончания. Там он вытесняет дофамин из везикул, нарушая работу VMAT2, и разворачивает транспортёр: дофамин выбрасывается наружу через DAT без всякого экзоцитоза, независимо от прихода потенциала действия. Различить эти два механизма на экзамене просят регулярно, и путают их тоже регулярно.
Клиническое значение
Занятость SERT после первой дозы СИОЗС достигает рабочего уровня за считанные часы, а клиническое улучшение наступает через две-четыре недели. Разрыв объясняют не самой блокадой, а медленной перестройкой системы: рост серотонина в области ядер шва сначала активирует тормозные ауторецепторы 5-HT1A и гасит импульсацию, и лишь их постепенная десенситизация позволяет передаче усилиться.
Блокада захвата опасна при сложении эффектов: сочетание СИОЗС с ингибитором МАО закрывает сразу и удаление, и разрушение медиатора, что даёт серотониновый синдром с гипертермией, ригидностью и спутанностью.
Транспортёр служит и диагностической меткой. Радиолиганды к DAT позволяют увидеть на однофотонной томографии убыль дофаминовых окончаний при паркинсонизме - там, где страдает нигростриарный вход в базальные ганглии. Отдельная тема - полиморфизм промотора гена SERT, который связывают с разной чувствительностью к стрессу и к терапии.
Частые ошибки
- Приписывают обратный захват ацетилхолину. В холинергическом синапсе возвращается холин после расщепления ферментом, а не целый медиатор.
- Путают транспортёр плазматической мембраны (SLC6: DAT, SERT, NET) и везикулярный переносчик VMAT2. Первый втягивает медиатор в цитоплазму, второй загружает его из цитоплазмы в везикулу.
- Называют обратный захват первично активным транспортом. АТФ тратит натрий-калиевый насос, а транспортёр использует уже готовый градиент натрия.
- Пишут, что конкурентный блокатор снижает . Он повышает кажущуюся , а потолок скорости оставляет прежним; неконкурентный блокатор вёл бы себя наоборот.
- Считают глутамат медиатором, который захватывается обратно в нейрон. Его убирают в основном астроциты через переносчики EAAT, а дальше работает глутамин-глутаматный цикл.
- Ставят знак равенства между кокаином и амфетамином. Первый блокирует переносчик, второй проходит через него и разворачивает транспорт наружу.
FAQ
Чем обратный захват отличается от расщепления медиатора ферментом? Молекула сохраняется целой и возвращается в оборот, а не разрезается на фрагменты. Поэтому обратный захват заодно решает задачу экономии предшественников; расщепление лишь прекращает сигнал. Скорость у ферментативного пути выше: ацетилхолинэстераза срабатывает за миллисекунды, транспортёр очищает щель за десятки и сотни миллисекунд.
Почему антидепрессанты действуют не сразу, если захват блокируется за часы? Потому что мишень лечения - не концентрация медиатора сама по себе, а состояние сети. Первичный подъём серотонина включает тормозные ауторецепторы, и суммарная передача поначалу почти не растёт. Эффект появляется по мере их десенситизации и последующих изменений экспрессии рецепторов.
Куда девается медиатор, попавший обратно в окончание? Часть загружается в везикулы через VMAT2 и ждёт следующего выброса, часть окисляется моноаминоксидазой на мембране митохондрий. Соотношение зависит от активности нейрона и заполненности везикулярного пула, а метаболиты выводятся и обнаруживаются в спинномозговой жидкости и моче.
Коротко
Обратный захват - основной способ прекратить действие моноаминовых и аминокислотных медиаторов: белок семейства SLC6 втягивает молекулу обратно в окончание вместе с ионами натрия, используя градиент, который поддерживает натрий-калиевая АТФаза. Внутри медиатор либо загружается в везикулы через VMAT2, либо окисляется моноаминоксидазой. Скорость захвата насыщаема и описывается уравнением Михаэлиса-Ментен, а конкурентные блокаторы (СИОЗС, трициклики, кокаин) повышают кажущуюся , не трогая , из-за чего медиатор задерживается в щели дольше. Амфетамин стоит особняком: он проходит через переносчик и разворачивает его наружу. Ацетилхолин в эту схему не входит - он расщепляется в щели, а обратно возвращается только холин.
Читайте также
Синаптическая передача: ацетилхолин шаг за шагом
Как работает синаптическая передача с ацетилхолином: выброс медиатора, рецепторы, инактивация ферментом и распространённые ошибки в ответах на экзамене.
ВПСП и ТПСП: постсинаптические потенциалы простыми словами
Что такое ВПСП и ТПСП, чем возбуждающий постсинаптический потенциал отличается от тормозного, какие ионы и каналы их создают и как нейрон суммирует входы.
Пресинаптическое и постсинаптическое торможение: разница
Пресинаптическое и постсинаптическое торможение: чем отличаются по механизму и мишени, как ГАМК и глицин гасят ВПСП, что такое ТПСП и где работают клетки Реншоу. Интерактивный калькулятор порога.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.