Метод Лоури: определение белка по калибровке
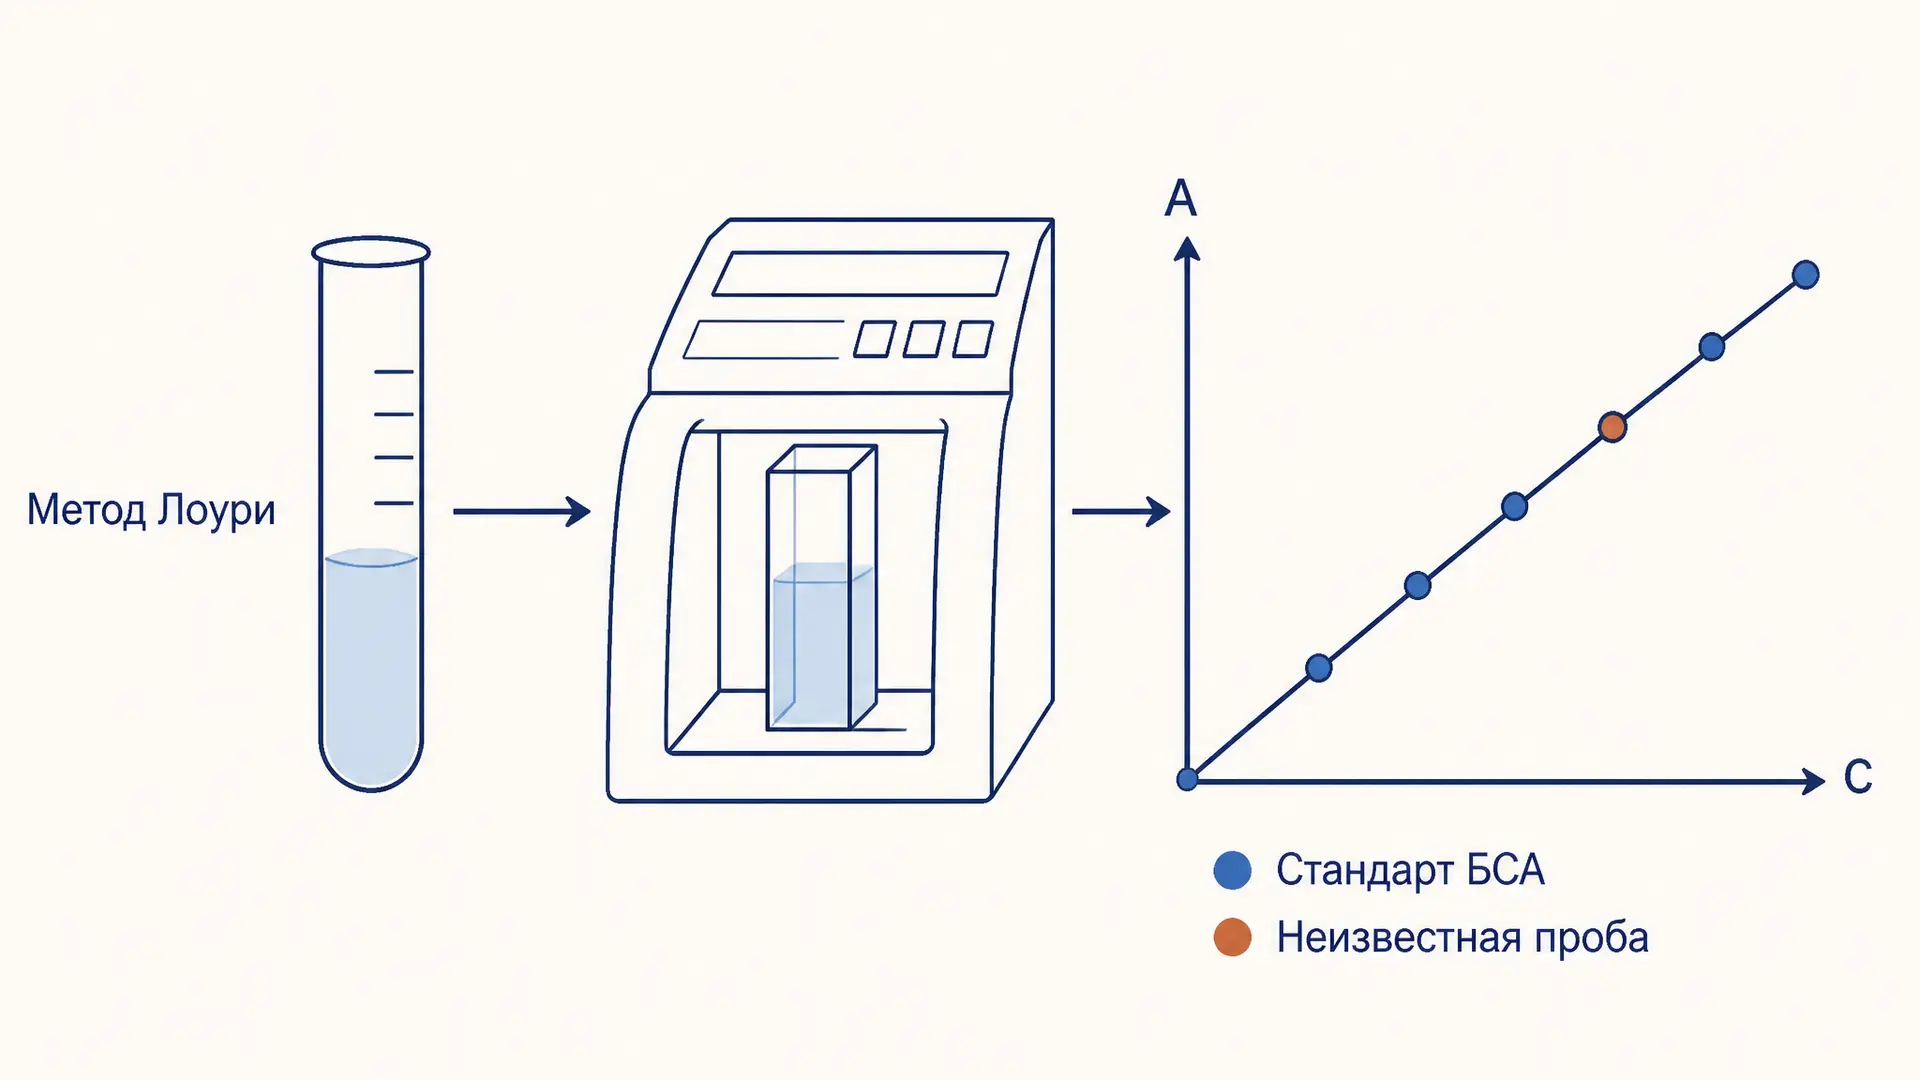
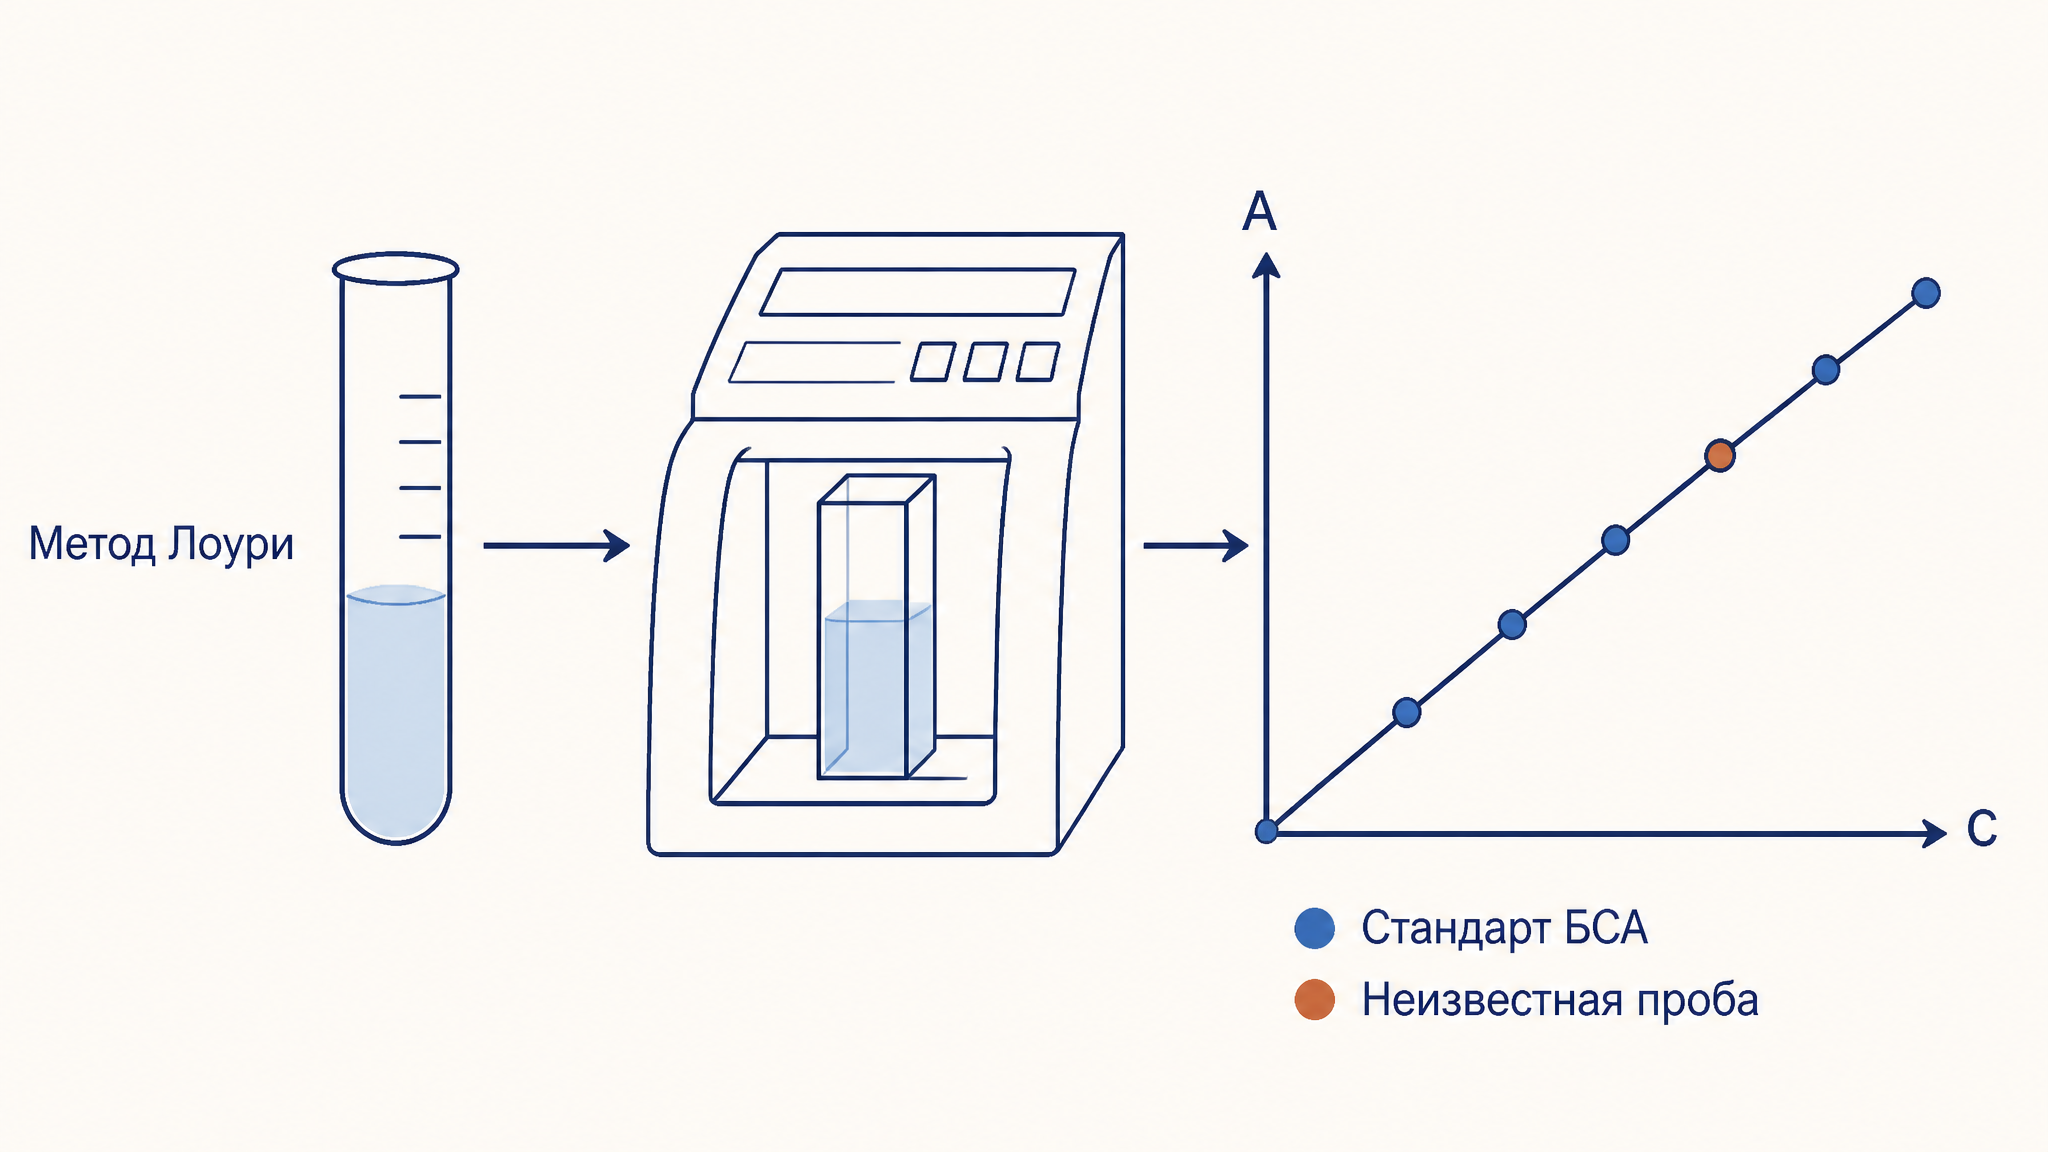
Метод Лоури - колориметрический способ оценить суммарную концентрацию белка в растворе. В статье Оливера Лоури, Ниры Роузбро, Льюиса Фарра и Роуз Рэндалл 1951 года метод описан как измерение белка реактивом Фолина после щелочной медной обработки. Это не «универсальный счётчик молекул»: интенсивность цвета зависит и от количества пептидных связей, и от состава белка. Поэтому измерение всегда связывают с калибровкой и условиями буфера. Разберём, что именно происходит в пробирке, как по БСА получить концентрацию и когда лучше выбрать другой анализ.
На чём основан метод Лоури
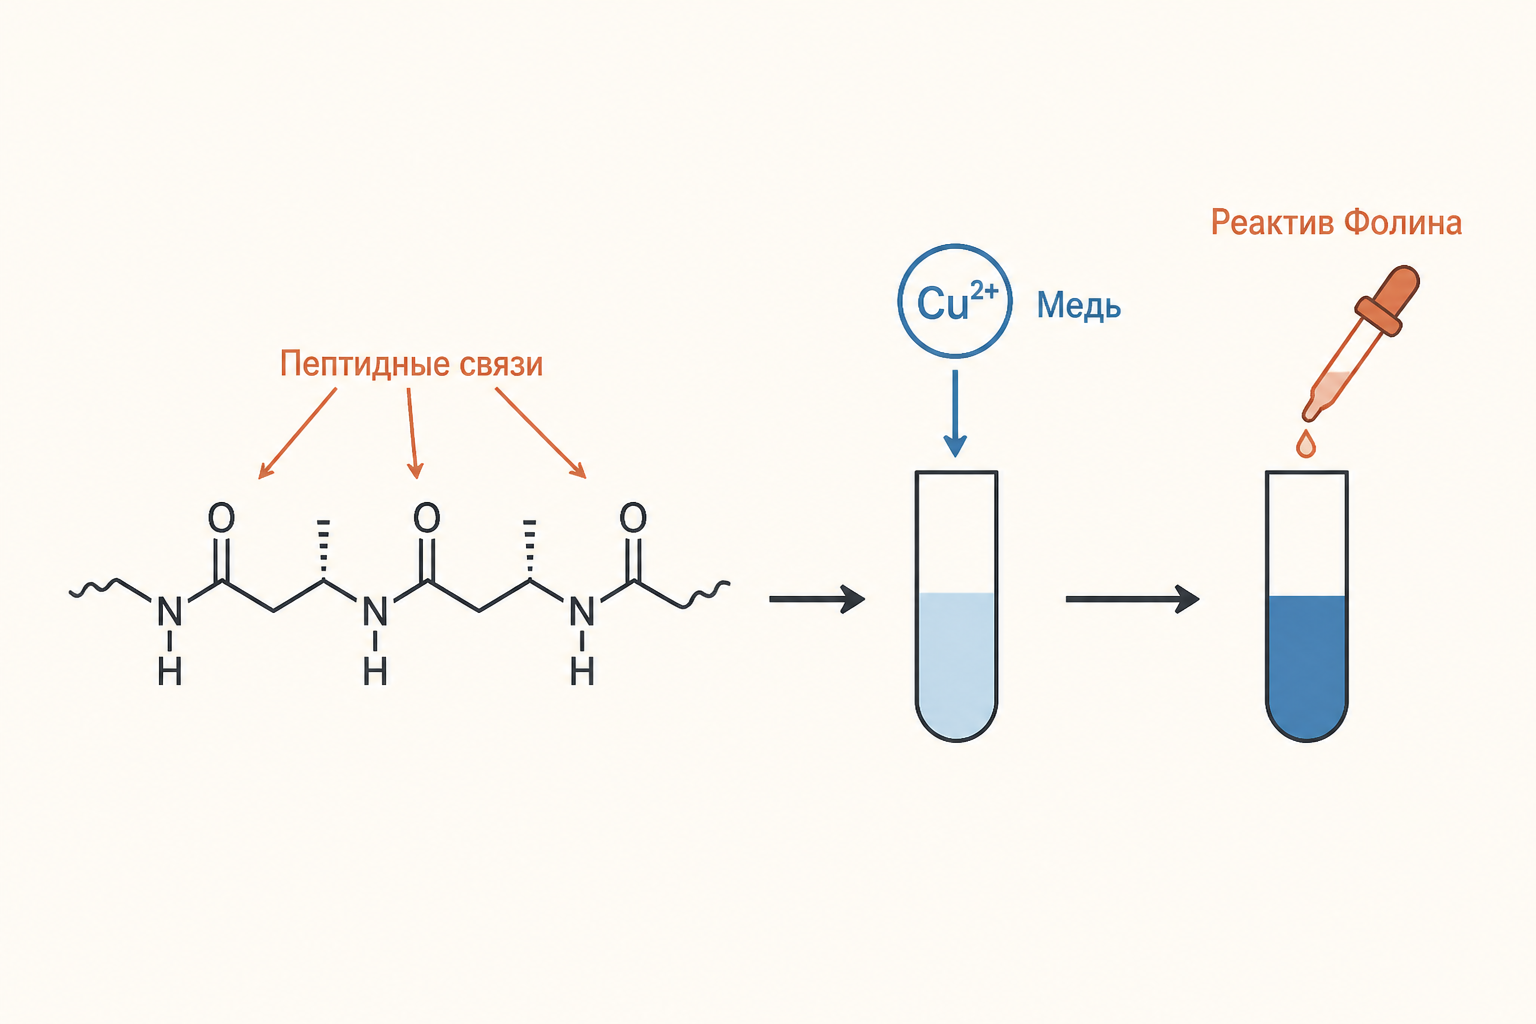
Первая стадия похожа на биуретовую реакцию. В щелочной среде пептидные связи белка координируют ионы ; образуется медно-белковый комплекс. Эта стадия сама даёт окраску, но в методе Лоури важна ещё и вторая: после добавления реактива Фолина-Чокальтеу возникает более интенсивный синий продукт. Его оптическую плотность измеряют обычно около 750 нм, но точная длина волны и режим зависят от принятого протокола.
Реактив Фолина содержит фосфомолибденовые и фосфовольфрамовые гетерополикислоты. В щелочных условиях они восстанавливаются; вклад в восстановление дают медь, связанная с пептидными группами, и боковые цепи прежде всего тирозина и триптофана. Поэтому ответ зависит от аминокислотного состава: два белка одной массовой концентрации могут дать не совершенно одинаковую плотность. Это принципиально отличается от ответа на вопрос, есть ли пептидная цепь вообще: строение самой пептидной связи объясняет медную стадию, а ароматические остатки усиливают фолиновскую.
Почему нужна калибровка по БСА
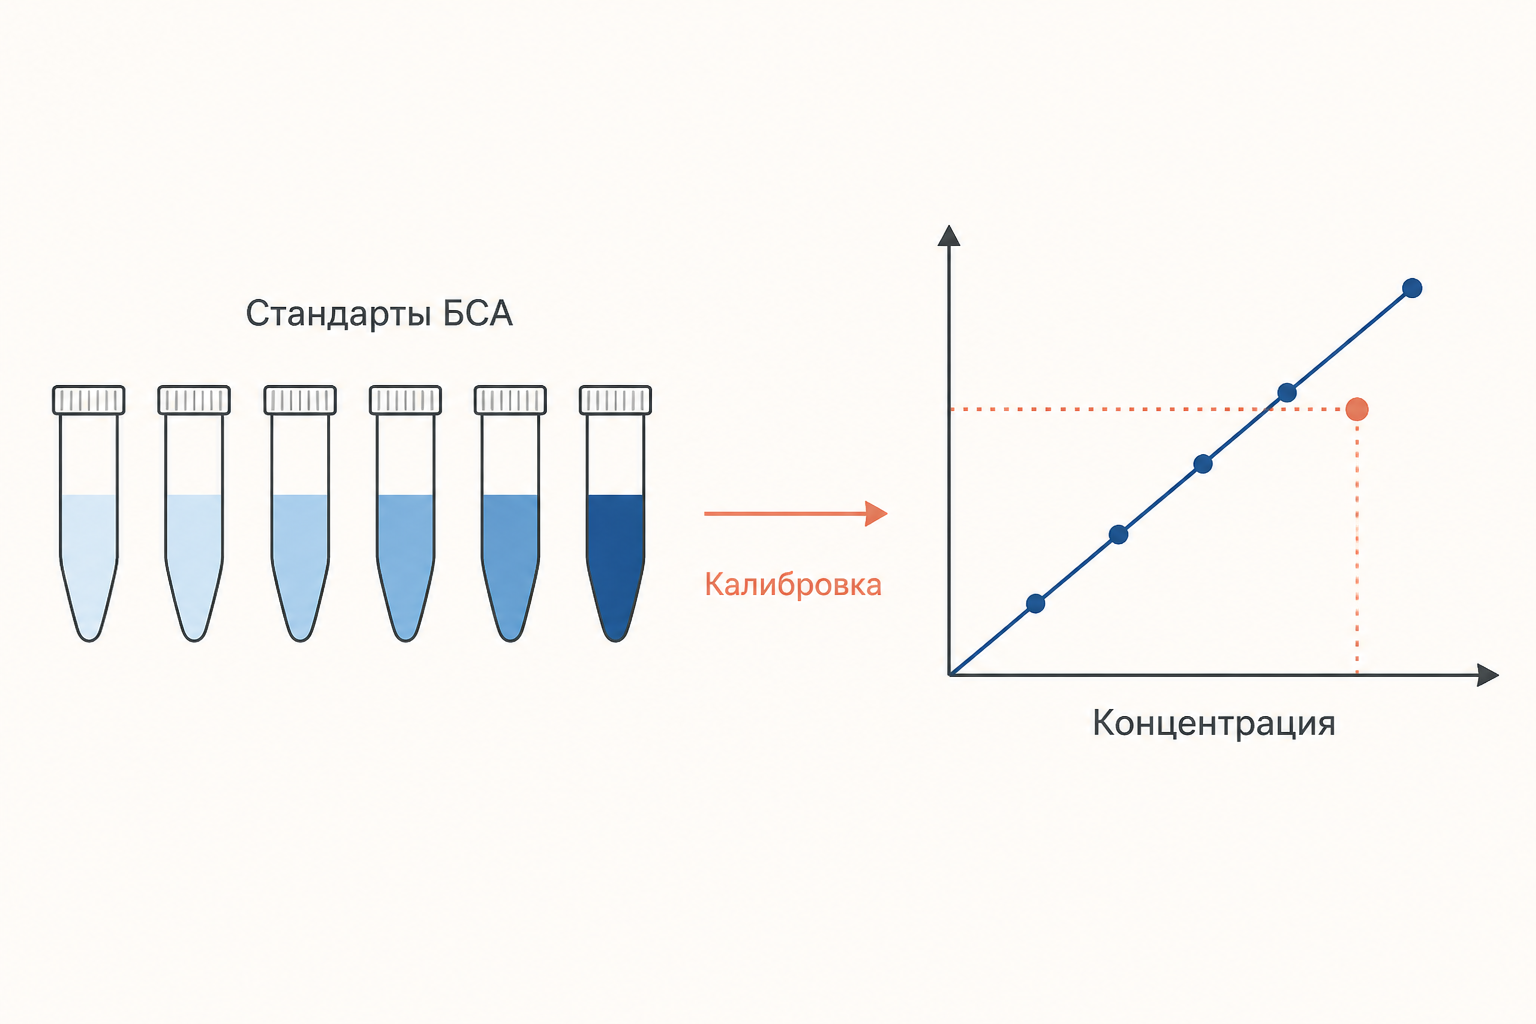
Абсолютного коэффициента «синий цвет на миллиграмм любого белка» у метода нет. Вместо него вместе с пробами готовят стандарты известной концентрации. Частый учебный стандарт - бычий сывороточный альбумин, БСА. Его растворы и неизвестную пробу разводят в одном и том же буфере, добавляют реагенты одинаково и измеряют после одинаковой выдержки. Тогда фон буфера и конкретный режим реакции одинаковы для всей серии.
Для стандарта строят график , где - оптическая плотность, а - концентрация БСА. В рабочем линейном участке прямая имеет вид
где - сигнал холостой пробы, - наклон калибровки. Это прикладной вариант закона Бугера-Ламберта-Бера: при неизменном составе окрашенного комплекса плотность растёт вместе с его количеством. Холостая проба здесь обязательна: она содержит всё, кроме белка, и показывает собственное поглощение реагентов и буфера.
Расчёт концентрации: учебный пример
Пусть стандарты БСА дали прямую , где выражена в мг/мл. У неизвестной пробы измерена . Сначала вычитают фон, затем делят на наклон:
Это концентрация именно в растворе, который попал в реакцию. Если исходный образец до постановки разбавили в 5 раз, его концентрация равна мг/мл. Нельзя подставлять точку за пределами линейной части графика: концентрированную пробу разбавляют и повторяют измерение. Синтетические числа в этом примере показывают механику расчёта, а не заменяют валидацию лабораторного протокола.
Как читать калибровочную кривую
Сначала смотрят на сами стандарты, а не только на формулу, которую выдала программа. Точки должны монотонно расти и образовывать участок, где их разумно описать прямой. Одна резко выпавшая точка может означать ошибку пипетирования, загрязнённую кювету или нарушение времени реакции; её нельзя молча исключить лишь потому, что она портит коэффициент корреляции. Повторите такой стандарт и зафиксируйте решение в журнале.
Неизвестная проба должна попадать внутрь интервала стандартов, лучше не у его края. Экстраполяция выше верхнего стандарта особенно рискованна: цветовая реакция может начать отклоняться от линейности, и расчёт даст правдоподобное, но смещённое число. Несколько разведений помогают проверить это правило. После умножения каждого результата на свой коэффициент разбавления они должны согласоваться в пределах ожидаемой аналитической погрешности. Если согласия нет, проблема может быть в матрице, а не в арифметике.
Наклон прямой имеет практический смысл: чем он больше, тем сильнее меняется сигнал при одинаковом изменении концентрации и тем легче различить близкие образцы. Однако повышать чувствительность бесконечно нельзя. У слишком малого сигнала заметны шум прибора и ошибка бланка, а слишком тёмный раствор хуже укладывается в линейную область. Поэтому рабочий диапазон определяют по своей серии стандартов и не подменяют его одним универсальным числом из чужой методички. Условия освещения, кюветы и конкретный набор реагентов тоже входят в экспериментальную систему.
Что искажает результат
Метод Лоури чувствителен, но многостадийная химия делает его уязвимым к матрице пробы. Восстановители, например DTT и -меркаптоэтанол, способны восстанавливать реагент без белка и завышать сигнал. Хелаторы вроде EDTA связывают медь и ослабляют первую стадию. Детергенты, некоторые буферы, соли аммония и фенольные соединения тоже могут менять окраску или кинетику реакции. Нельзя переносить допустимые концентрации «по памяти»: они различаются у модификаций и наборов.
Практически помогают четыре шага: сделать холостую пробу с тем же буфером, готовить БСА в той же матрице, измерить несколько разведений неизвестного образца и сравнить их с линейной областью стандартов. Если буфер мешает, компонент удаляют диализом, гель-фильтрацией или осаждением белка либо выбирают совместимый метод. Отдельно проверьте, соответствует ли БСА вашему объекту: белок с необычным содержанием ароматических аминокислот может отклоняться от альбуминовой калибровки.
Повторы важны не только для красивой таблицы. Если два технических повтора расходятся, сначала ищут пузырёк в кювете, ошибку дозирования или разную длительность инкубации, а не усредняют результат автоматически. Для независимых образцов отдельно показывают среднее, разброс и число повторов. Так калибровка остаётся измерением, а не иллюстрацией к ожидаемому ответу.
Чувствительность и выбор метода
Ни один анализ белка не оптимален для всех проб. Метод Лоури обычно выбирают, когда полезна хорошая чувствительность и можно контролировать матрицу; цена - время и заметная химическая интерференция. Ниже - ориентир для выбора, а не замена инструкции к конкретному набору.
| Метод | Принцип | Сильная сторона | Главное ограничение |
|---|---|---|---|
| Лоури | Медь и реактив Фолина | Чувствительный колориметрический анализ | Восстановители, хелаторы, детергенты и состав белка |
| Брэдфорд | Связывание красителя Кумасси | Быстрый одностадийный анализ | Детергенты и разная окрашиваемость белков |
| BCA | Восстановление и комплекс с BCA | Часто совместимее с детергентами | Восстановители дают ложный сигнал |
| Поглощение ароматических остатков | Быстро, без окрашивания | Нужны чистый белок и известный коэффициент; нуклеиновые кислоты мешают |
Брэдфорд удобен, когда нужен быстрый скрининг серии: краситель Кумасси связывается с белком, но состав и детергенты меняют ответ. BCA тоже использует восстановление меди, однако детергенты переносятся многими вариантами лучше, а вот восстановители особенно проблемны. Поглощение при 280 нм разумно для очищенного белка с известным коэффициентом экстинкции; для лизата это скорее сигнал смеси белков и нуклеиновых кислот. Если дальше изучают работу фермента, измеренная концентрация нужна ещё и для корректного сравнения скоростей в кинетике Михаэлиса-Ментен.
Как оформить результат в лабораторной работе
Запишите стандарт, концентрационный диапазон, состав буфера, длину волны, число повторов и уравнение калибровки. Для неизвестной пробы приведите исходную , вычтенную холостую пробу, рассчитанную концентрацию в измеряемом разведении и итог с учётом коэффициента разбавления. Корректный вывод звучит так: «в условиях данной калибровки ответ пробы эквивалентен такой-то концентрации БСА». Формулировка честнее, чем заявление о точной массе любого белка без учёта состава и помех.
Частые ошибки
- Считают, что реактив Фолина реагирует только с тирозином. Медно-пептидная стадия тоже определяет сигнал, а ароматические остатки лишь меняют его величину.
- Готовят стандарты в воде, а лизат оставляют в сложном буфере. Фон и помехи тогда различаются.
- Не умножают результат на коэффициент предварительного разбавления.
- Интерполируют точку за пределами линейной калибровки вместо повторного измерения разбавленной пробы.
FAQ
Почему БСА не делает ответ абсолютно точным для любого белка?
Потому что фолиновская стадия зависит от аминокислотного состава. БСА задаёт воспроизводимую рабочую шкалу, но другой белок может иметь другой выход окраски на единицу массы.
Можно ли измерить белок методом Лоури в буфере с EDTA?
Без отдельной проверки совместимости нельзя: EDTA связывает медь, нужную для первой стадии. Обычно меняют буфер, удаляют хелатор или выбирают иной анализ.
Чем метод Лоури отличается от биуретовой реакции?
Биуретовая реакция использует комплекс пептидных связей с медью. Лоури добавляет фолиновскую стадию, поэтому получает более сильный, но более зависимый от условий сигнал.
Коротко
Метод Лоури превращает белок в измеримый синий сигнал через щелочную медную и фолиновскую стадии. Надёжный ответ получается не из одной оптической плотности, а из калибровки БСА, холостой пробы, совпадающей матрицы и контроля разбавлений. Если химия буфера мешает, выбор между Лоури, Брэдфордом, BCA и определяет не привычка, а состав именно вашей пробы.
Источники
- Lowry OH, Rosebrough NJ, Farr AL, Randall RJ. Protein measurement with the Folin phenol reagent. J Biol Chem. 1951;193(1):265-275. DOI: 10.1016/S0021-9258(19)52451-6.
- Thermo Fisher Scientific. Protein Assay Technical Handbook.
- Bio-Rad. Bradford Protein Assay.
Читайте также
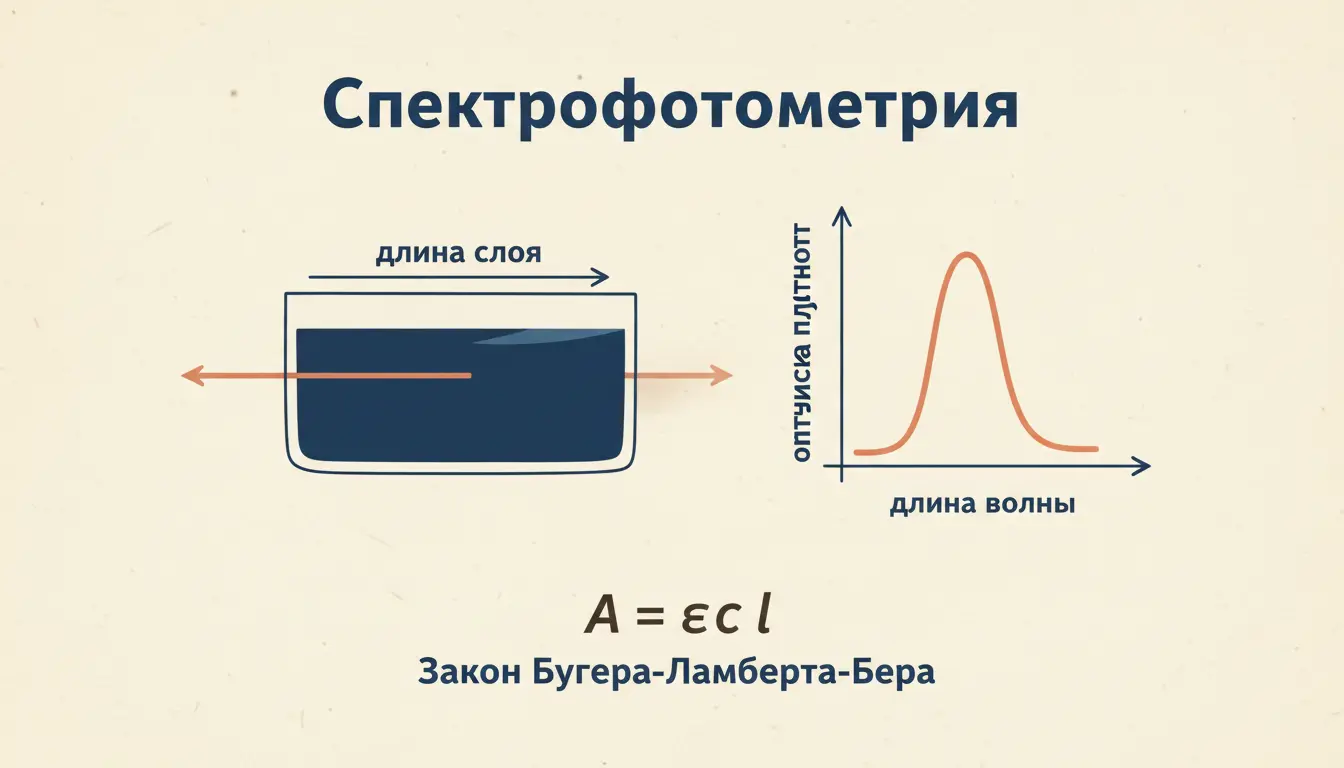
Спектрофотометрия: закон Бугера-Ламберта-Бера
Закон Бугера-Ламберта-Бера в спектрофотометрии: связь оптической плотности, концентрации и толщины слоя, молярный коэффициент поглощения, пропускание и причины отклонений от линейности.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
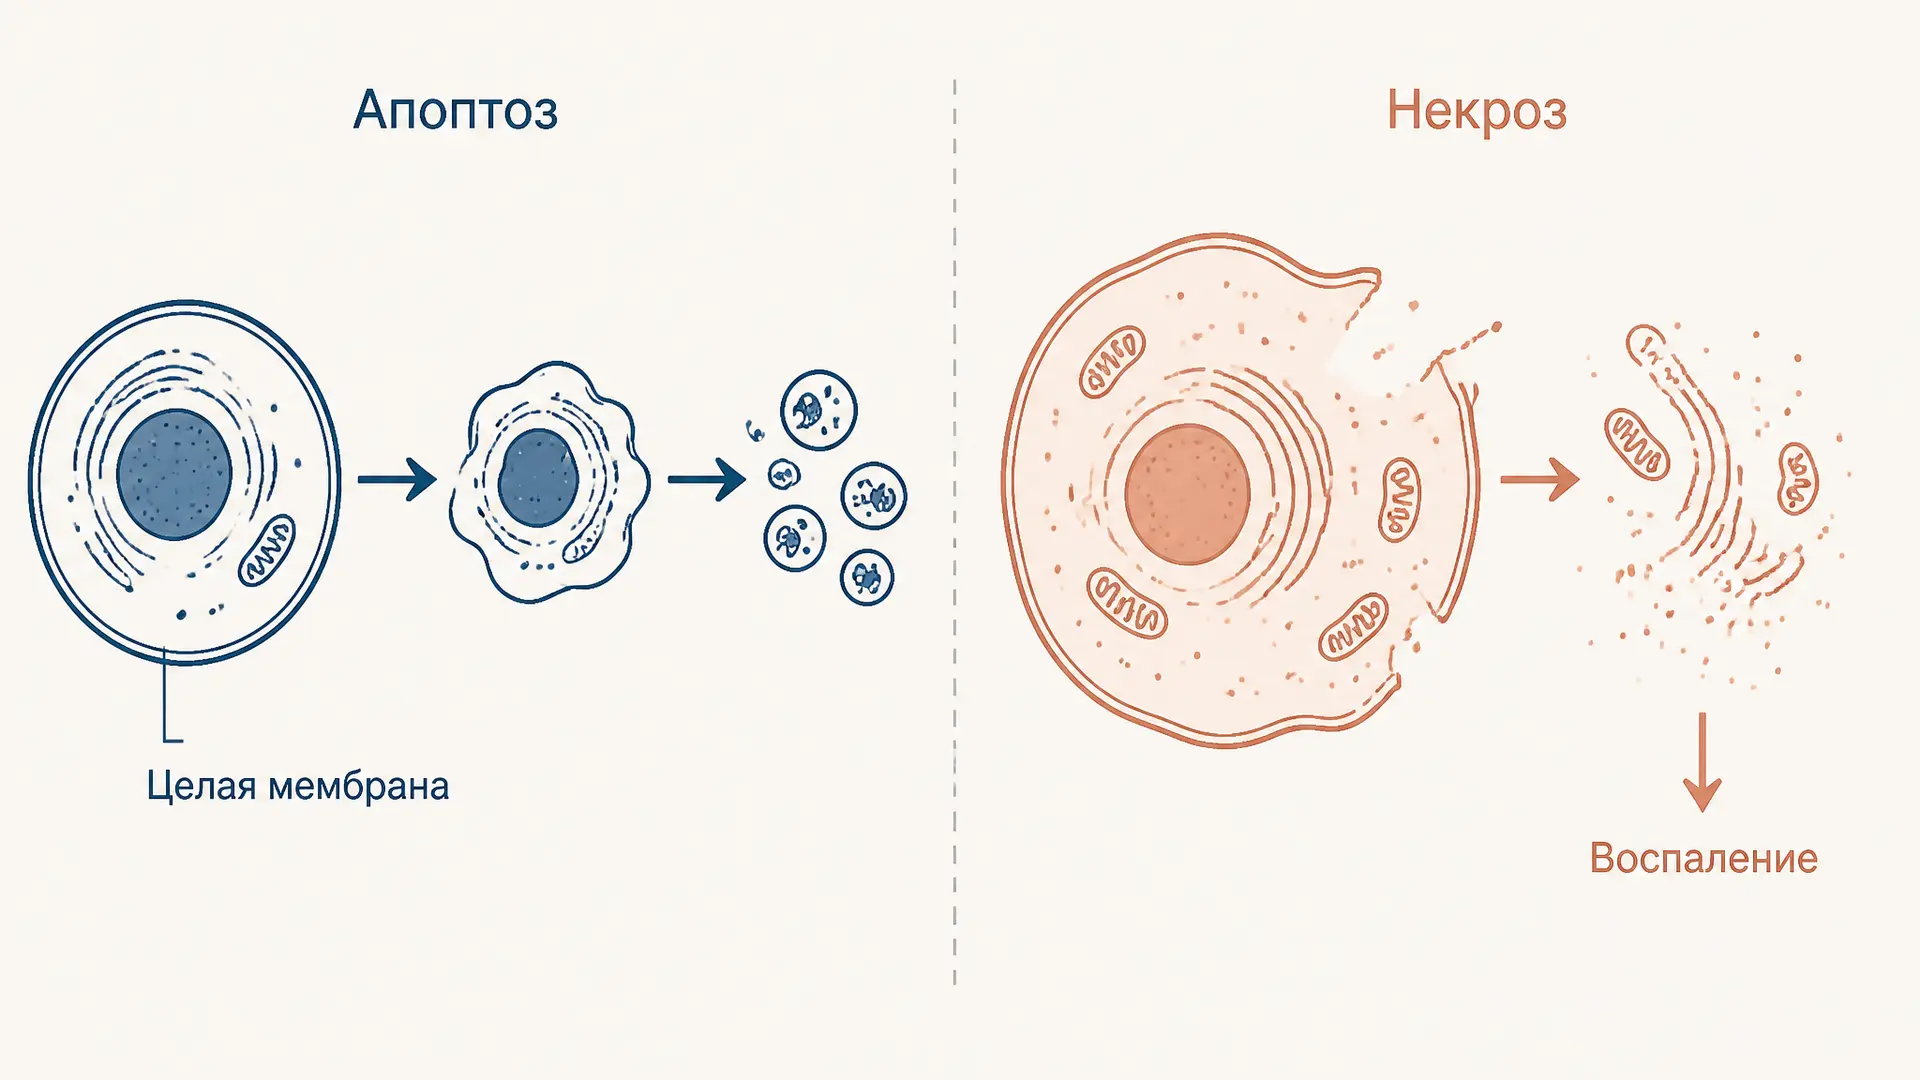
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.