Эволюция полового размножения: зачем нужен пол
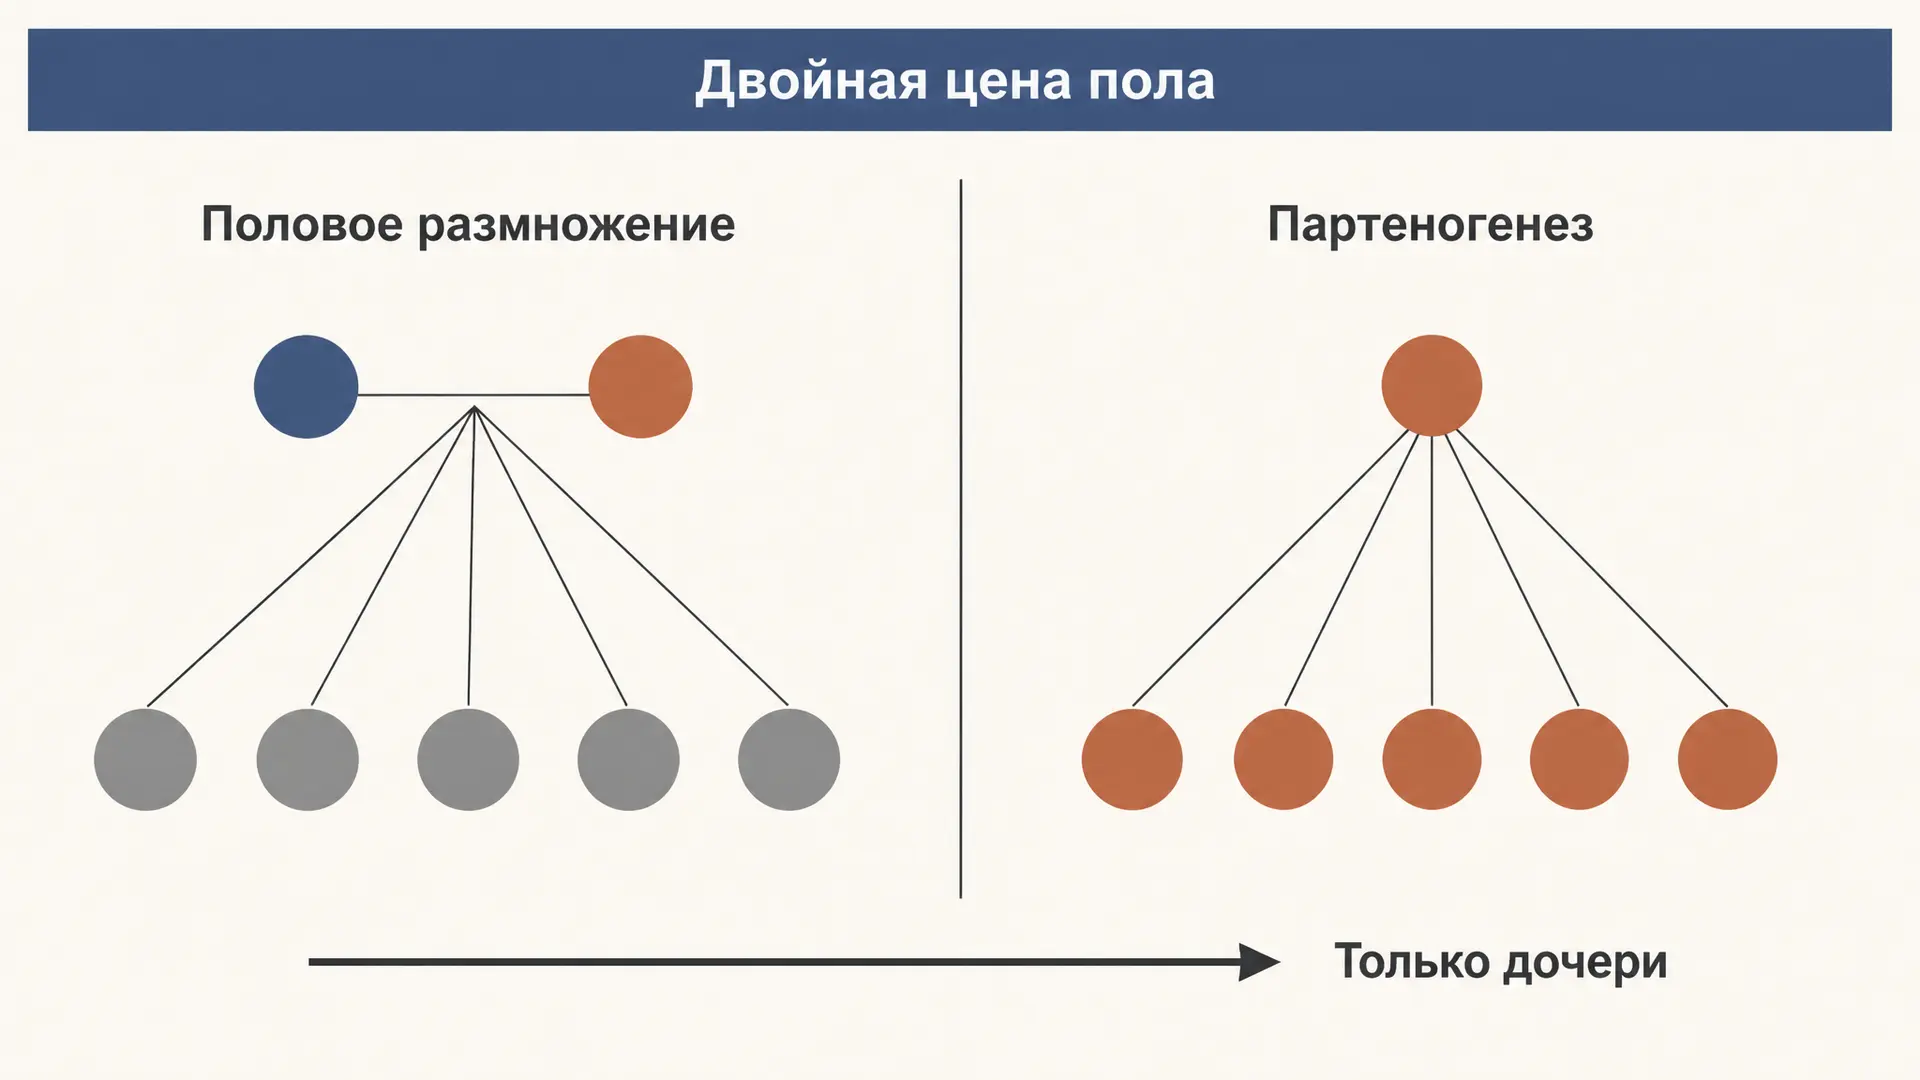
Эволюция полового размножения остаётся одной из самых упрямых загадок биологии: половой способ выглядит откровенно расточительным. Особь передаёт потомку лишь половину своих генов, тратит силы на поиск партнёра и вдобавок производит самцов, которые потомства не вынашивают. Бесполая линия свободна от этих издержек, но подавляющее большинство многоклеточных эукариот всё равно размножается половым путём. Ниже разберём, из чего складывается цена пола, какие четыре механизма её окупают и почему возвраты к партеногенезу почти всегда недолги. Модель конкуренции клона и половой популяции удобно сначала прогнать численно в калькуляторе ниже.
Двойная цена пола: в чём парадокс
Задачу в явном виде поставил Джон Мэйнард Смит в 1971 году. Представьте популяцию, где самка откладывает яиц, и доля самок в потомстве равна . Тогда число самок в следующем поколении растёт как . Партеногенетическая мутантка с той же плодовитостью рождает только дочерей, поэтому её линия растёт как . Отношение темпов роста и есть цена пола:
При обычном соотношении полов цена равна двум: пока клон редок, его доля удваивается каждое поколение. Отсюда и название. Если стартовать с одного процента бесполых мутантов, то уже к седьмому поколению они займут больше половины популяции, а к десятому их будет свыше 90 процентов. Половое размножение при таких темпах должно было исчезнуть за считаные десятки поколений.
Джордж Уильямс различал две издержки. Цена самцов: половина потомства не производит яиц. Цена мейоза: даже у гермафродита в гамету попадает только половина генома, то есть вклад родителя в потомка вдвое разбавлен. У раздельнополых видов обе цены совпадают численно, у гермафродитов остаётся вторая. Отсюда следствие: любая гипотеза о пользе пола обязана давать не менее чем двукратное преимущество.
Порог окупаемости легко получить из модели: клон вытесняется, если $(1/\sigma)(1-c) < 1$, то есть при $c > 1 - \sigma$. При $\sigma = 0{,}5$ бесполая линия должна проигрывать в приспособленности больше половины за поколение. Это огромная величина, и ни один механизм в одиночку её обычно не даёт.
Что даёт перемешивание генов
Единственное, что половое размножение делает с наследственным материалом, - перемешивает его. Мейоз с независимым расхождением хромосом и кроссинговером разрушает сцепление между локусами и создаёт комбинации, которых не было ни у одного из родителей. Фазы деления здесь пересказывать не нужно, они подробно разобраны в материале про отличия митоза и мейоза, а механику обмена участками и подсчёт частоты рекомбинации смотрите в разборе сцепленного наследования и кроссинговера.
Первое следствие сформулировали независимо Рональд Фишер (1930) и Герман Мёллер (1932). В бесполой популяции две полезные мутации у разных особей обречены конкурировать: собрать их в одном геноме нельзя, и одна линия вытесняет другую (клональная интерференция). Половая популяция сводит обе мутации в одном потомке, поэтому скорость адаптации растёт с численностью, а у клона упирается в потолок.
Второе следствие зеркально первому и касается вредных мутаций: рекомбинация отделяет поломку от полезного окружения, и отбор выбрасывает её отдельно. На этом стоят две гипотезы ниже.
Храповик Мёллера: бесполая линия копит поломки
Мёллер в 1964 году заметил: в конечной бесполой популяции есть класс особей с наименьшим числом вредных мутаций. Если по дрейфу ни одна из них не оставит потомства, класс исчезает навсегда: обратной мутацией его не восстановить, а рекомбинации, которая собрала бы чистый геном из двух испорченных, у клона нет. Минимальное число мутаций в линии растёт скачками и никогда не убывает.
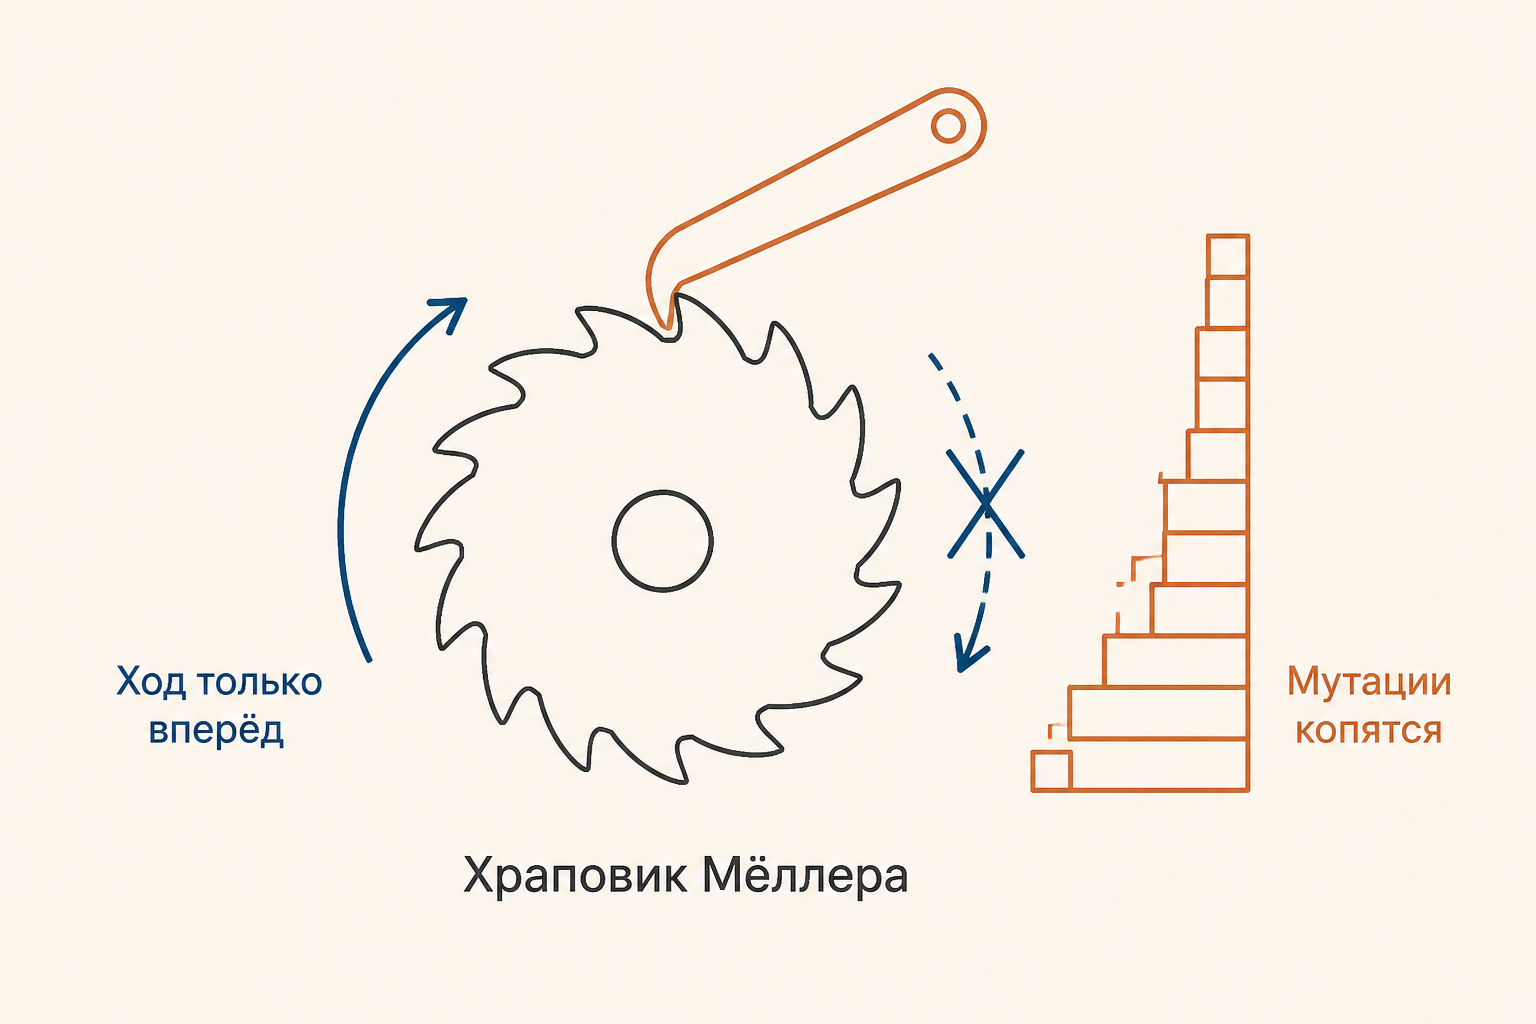
Джозеф Фельзенштейн в 1974 году показал, что скорость щелчков зависит от размера популяции, темпа мутирования и силы отбора: чем мельче популяция и чем слабее отдельная мутация, тем чаще щёлкает механизм. В пределе линия входит в мутационный коллапс: падающая приспособленность сокращает численность, а меньшая численность ускоряет храповик.
В калькуляторе выше это режим накапливающегося отставания. Задайте потерю приспособленности за поколение при стартовой доле клона в один процент: доля бесполых сначала растёт, достигает максимума около 44 процентов на тринадцатом поколении, а к двадцать шестому возвращается к исходному проценту и дальше падает почти отвесно. Момент разворота вычисляется точно:
Смысл кривой в том, что клон вполне может выиграть краткосрочную гонку и всё равно проиграть долгосрочную. Как считают груз в общем виде, разобрано в материале про генетический груз популяции.
Гипотеза Кондрашова: чистка мутаций пачками
Алексей Кондрашов в 1988 году предложил детерминистический вариант того же аргумента, не требующий малой численности. Пусть приспособленность падает с числом вредных мутаций быстрее, чем мультипликативно, то есть каждая следующая поломка вреднее предыдущей (синергический эпистаз):
При такой функции отбор работает почти как отсечение по порогу: гибнут особи с числом мутаций выше некоторого уровня, и каждая смерть уносит сразу много поломок. Но чтобы отбору было что отсекать, нужен разброс по , а его создаёт рекомбинация: у клона все потомки наследуют материнский набор.
Гипотеза даёт двукратное преимущество при геномном темпе вредных мутаций на поколение. Это её слабое место и одновременно проверяемое предсказание: у человека оценки действительно порядка единицы и выше, у дрозофилы и нематод оценки ниже и спорны, а прямые измерения синергического эпистаза дают противоречивые результаты.
Красная королева: гонка с паразитами
Метафору ввёл Ли Ван Вален в 1973 году по реплике из «Алисы в Зазеркалье»: приходится бежать изо всех сил, чтобы только оставаться на месте. Уильям Гамильтон и Грэм Белл применили её к полу: главный источник постоянно меняющегося давления отбора - паразиты, у которых поколения короче, а численность больше.
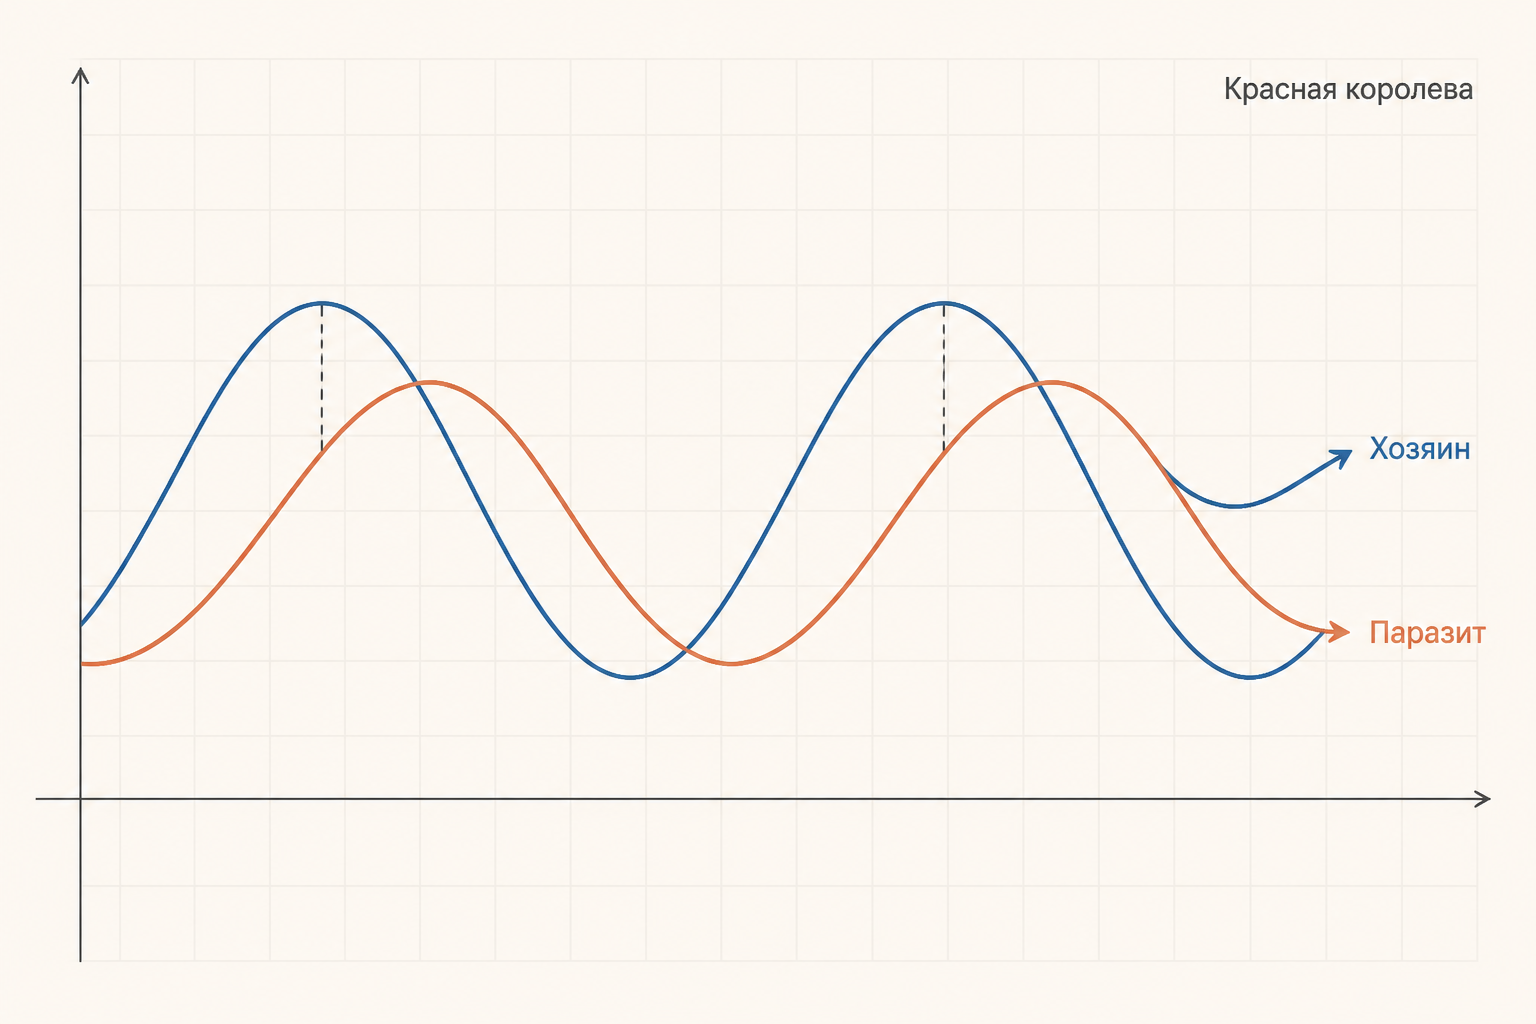
Работает частотно зависимый отбор. Паразит подстраивается под самый массовый генотип хозяина, поэтому редкий генотип получает преимущество, размножается, становится массовым и тут же теряет защиту. Частоты хозяина и паразита колеблются в противофазе, а половое размножение выигрывает именно потому, что каждое поколение выдаёт новые редкие комбинации.
Самая убедительная проверка - новозеландская улитка Potamopyrgus antipodarum, у которой половые и партеногенетические формы живут в одних озёрах. Кёртис Лайвли показал в 1987 году, что доля половых особей выше там, где выше заражённость трематодами, а многолетние пробы Джукки Йокелы подтвердили: массовый клон за несколько лет становится самым заражённым и вытесняется. Похожую картину дали дафнии из донных банков покоящихся яиц.
Эволюция анизогамии: почему гаметы стали разными
Отдельный вопрос - не «почему пол», а «почему два разных пола». У предковых форм гаметы были одинаковы (изогамия), как у многих зелёных водорослей до сих пор. Модель Джеффри Паркера, Робина Бейкера и Вернона Смита (1972) объясняет расхождение дизруптивным отбором: выживаемость зиготы растёт с её размером, а число производимых гамет обратно пропорционально их размеру.
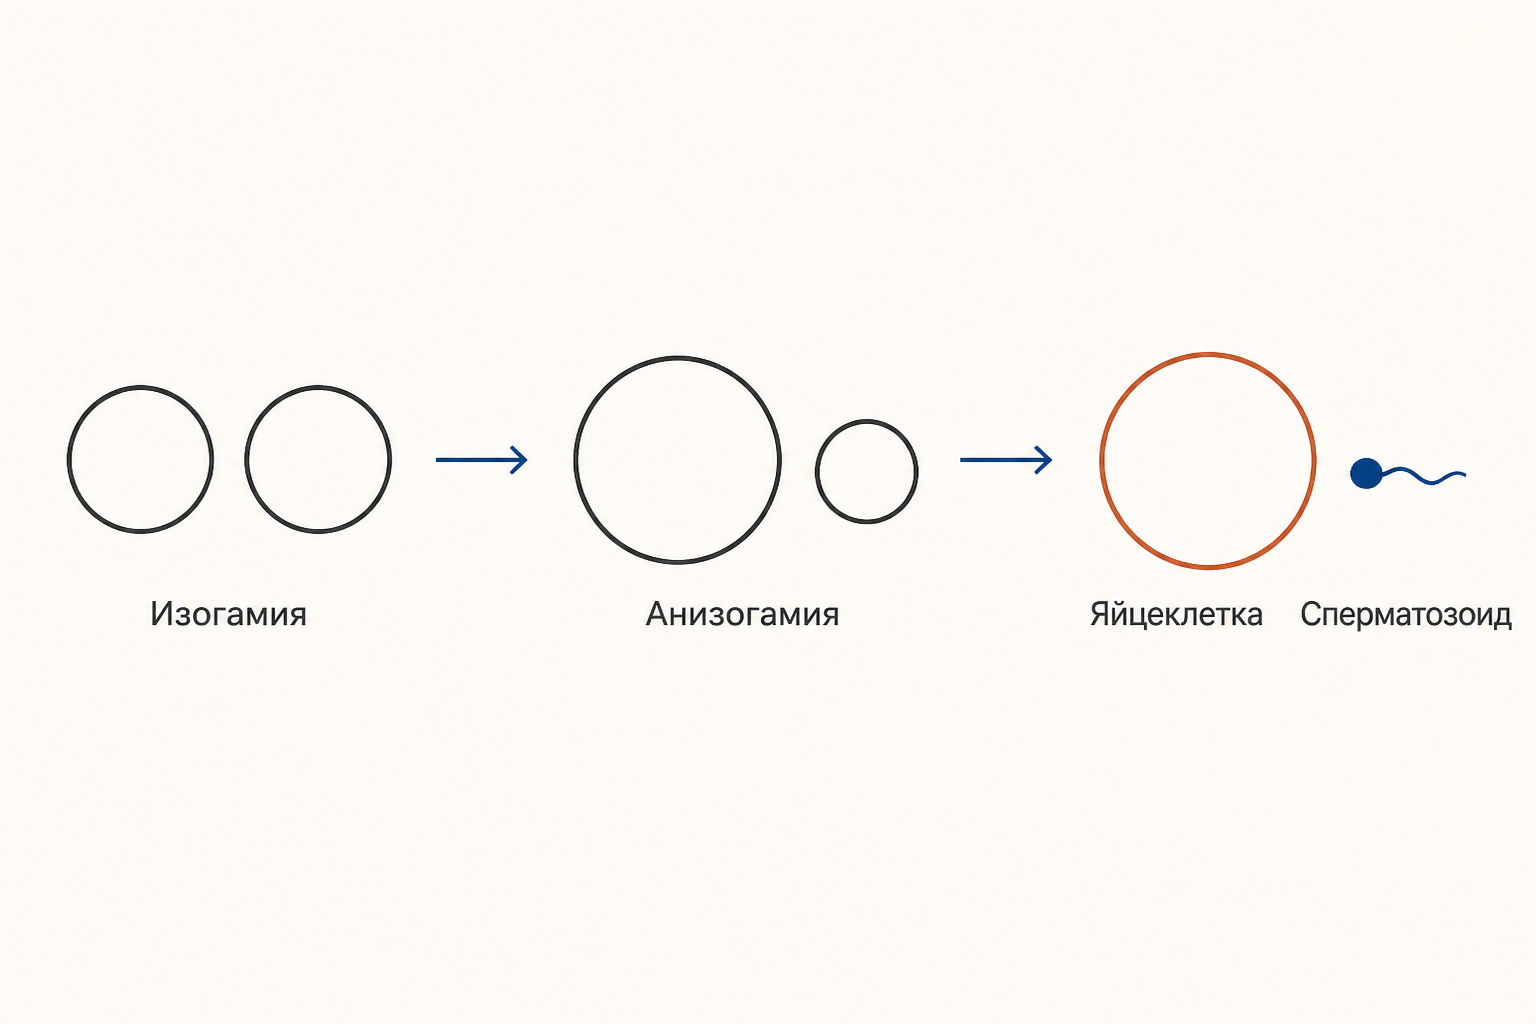
Промежуточная стратегия проигрывает обеим крайним: выгодно либо делать мало крупных гамет с запасом веществ, либо много мелких и дешёвых, лишь бы находили крупные. Так возникает анизогамия, а за ней - вся асимметрия полов: разный родительский вклад, разная дисперсия репродуктивного успеха и половой отбор. Побочный результат оогамии - однородительское наследование митохондрий: мелкая гамета почти не приносит своих органелл, что снимает конфликт между разными линиями цитоплазматических геномов.
Возвраты к партеногенезу: когда пол теряют
Переход к партеногенезу происходил многократно и в самых разных группах: у тлей, дафний, коловраток, ящериц, некоторых рыб, у растений (одуванчики, манжетки). На филогенетических деревьях такие линии почти всегда выглядят молодыми веточками на концах ветвей, а не крупными кладами. Это и есть главный аргумент против долговечности бесполости: клоны возникают часто, но быстро вымирают.
Исключения называют древними бесполыми скандалами. Коловратки-бделлоиды считались бесполыми десятки миллионов лет; у них нашли необычно много горизонтально перенесённых генов и способность чинить разрывы ДНК после высыхания, а в 2021 году в геномах обнаружили следы, совместимые с редкой рекомбинацией. Второй классический пример - остракоды дарвинуловые.
Отдельное явление - географический партеногенез: бесполые формы систематически занимают краевые местообитания, высокие широты и горы, недавно освободившиеся от ледника территории. Там паразитов меньше, а способность одной особи основать популяцию важнее долгосрочной изменчивости. Стратегический смысл такого расселения близок к логике r-стратегии отбора: быстрая колонизация ценой устойчивости.
Частые ошибки
- Считать, что пол существует «для блага вида». Это групповой отбор в наивной форме: отбор действует на особей и гены здесь и сейчас, а не на далёкое будущее популяции. Любая рабочая гипотеза обязана давать выгоду носителю в пределах нескольких поколений.
- Путать цену самцов и цену мейоза. Первая исчезает у гермафродитов, вторая остаётся всегда. Двукратной цену делает именно производство самцов при соотношении полов один к одному.
- Приравнивать партеногенез к примитивности. Бесполые формы почти всегда вторичны и произошли от половых предков, а не наоборот.
- Смешивать партеногенез, вегетативное размножение и апомиксис. Механизмы разные, объединяет их только отсутствие рекомбинации.
- Искать единственную верную гипотезу. Модели, где мутационный груз и паразиты действуют совместно, дают нужный двукратный порог, а по отдельности каждый механизм его обычно не набирает.
FAQ
Почему цена пола называется двойной, если самцы тоже участвуют в размножении? Счёт ведётся по числу потомков на особь, а не по числу родителей. Половая самка передаёт гены половине потомства и производит самцов, которые яиц не откладывают; бесполая самка при той же плодовитости даёт вдвое больше дочерей. Формально цена равна , где - доля самок в потомстве, и при равном соотношении полов она равна двум.
Есть ли прямые доказательства гипотезы Красной королевы? Есть корреляционные и экспериментальные. У новозеландской улитки доля половых особей растёт вместе с прессом трематод. В линиях нематод Caenorhabditis elegans при коэволюции с бактерией Serratia marcescens самооплодотворение вытесняется перекрёстным, а без паразита картина обратная.
Почему коловраток-бделлоидов называют скандалом? Потому что они противоречат правилу «бесполые линии живут недолго»: группа существует десятки миллионов лет и насчитывает сотни видов без наблюдаемого мейоза. Объяснения ищут в горизонтальном переносе генов и починке ДНК после высыхания; следы рекомбинации, найденные в 2021 году, смягчили парадокс, но не сняли его.
Коротко
Эволюция полового размножения - это баланс между двукратной ценой пола и выгодами рекомбинации. Цена возникает из производства самцов и разбавления генома в мейозе и требует не менее чем двукратной компенсации. Компенсацию дают четыре механизма: ускоренная сборка полезных мутаций по Фишеру и Мёллеру, остановка храповика Мёллера, эффективная чистка вредных мутаций при синергическом эпистазе (гипотеза Кондрашова) и гонка с паразитами по модели Красной королевы. Анизогамия и сами два пола - следствие дизруптивного отбора по размеру гамет. Возвраты к партеногенезу происходят часто, но такие линии обычно занимают краевые местообитания и быстро исчезают, а редкие исключения вроде коловраток-бделлоидов до сих пор считаются нерешёнными случаями.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
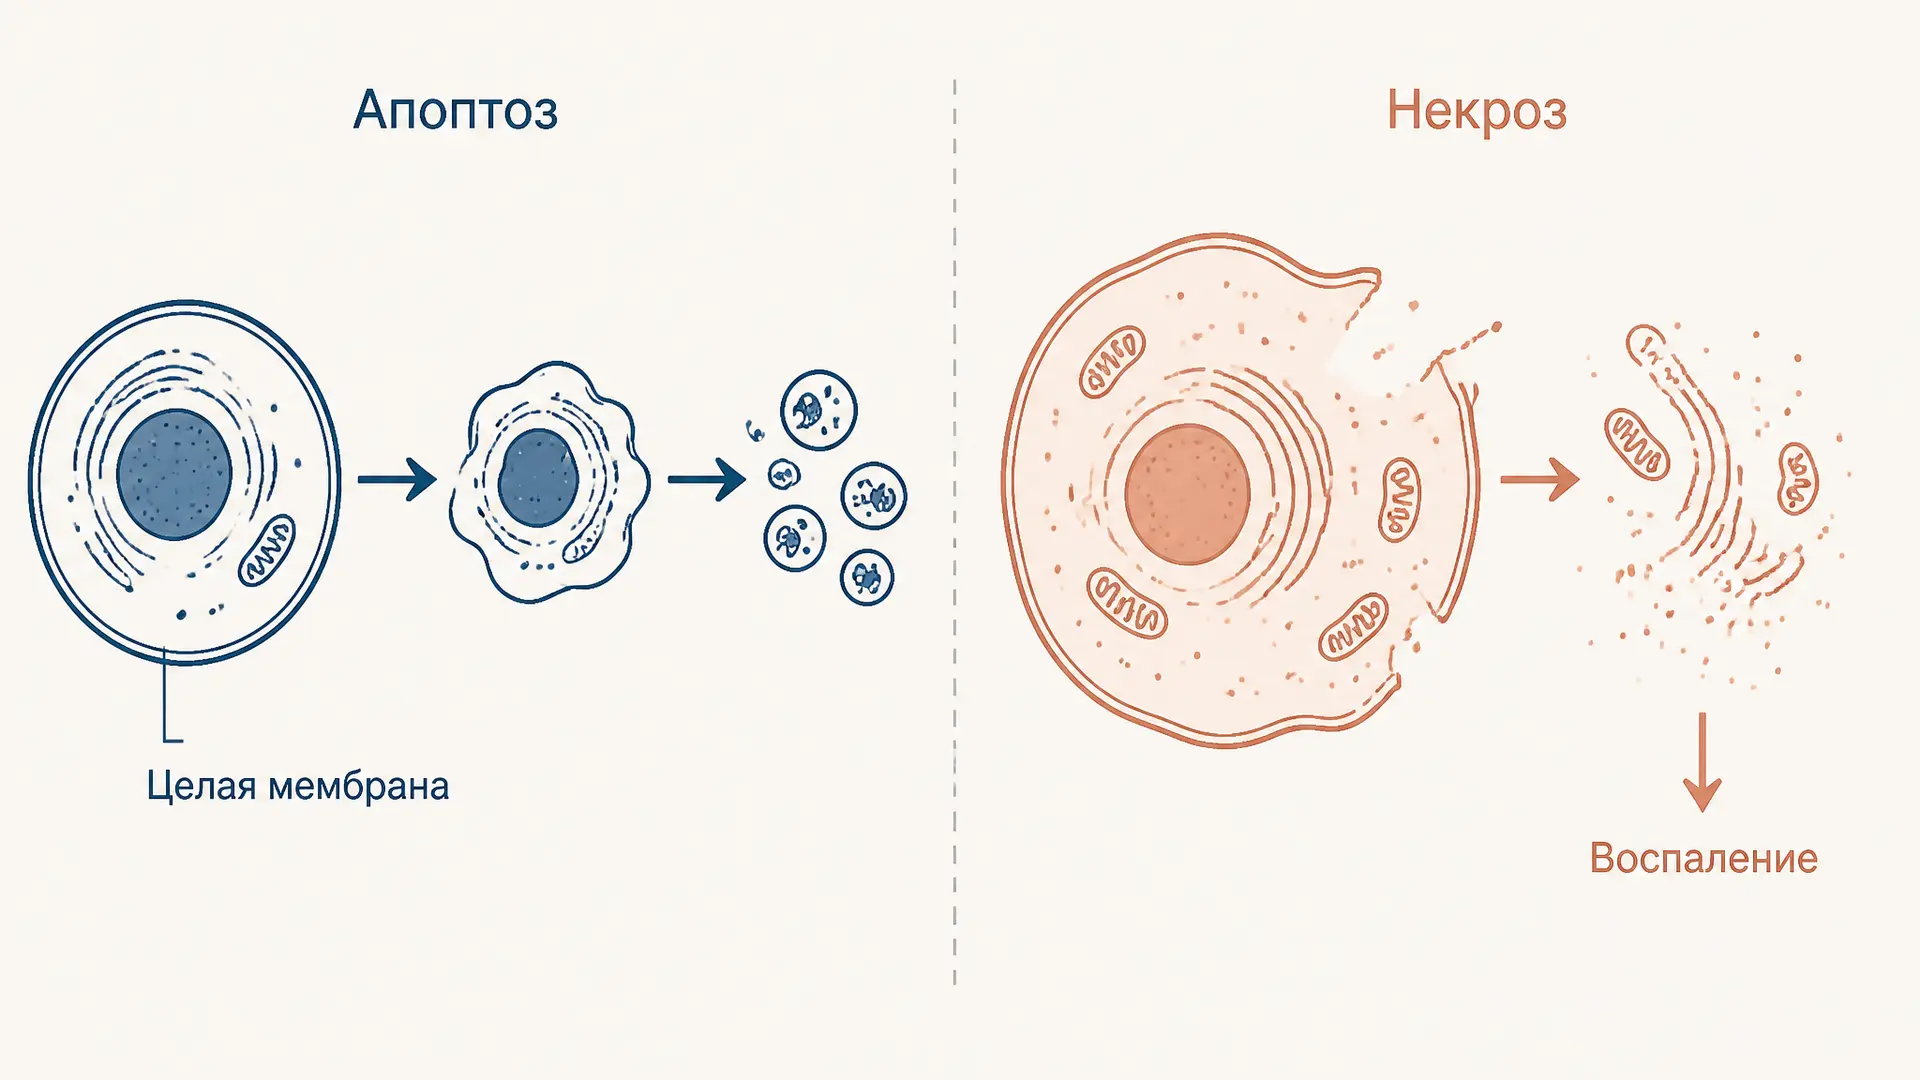
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
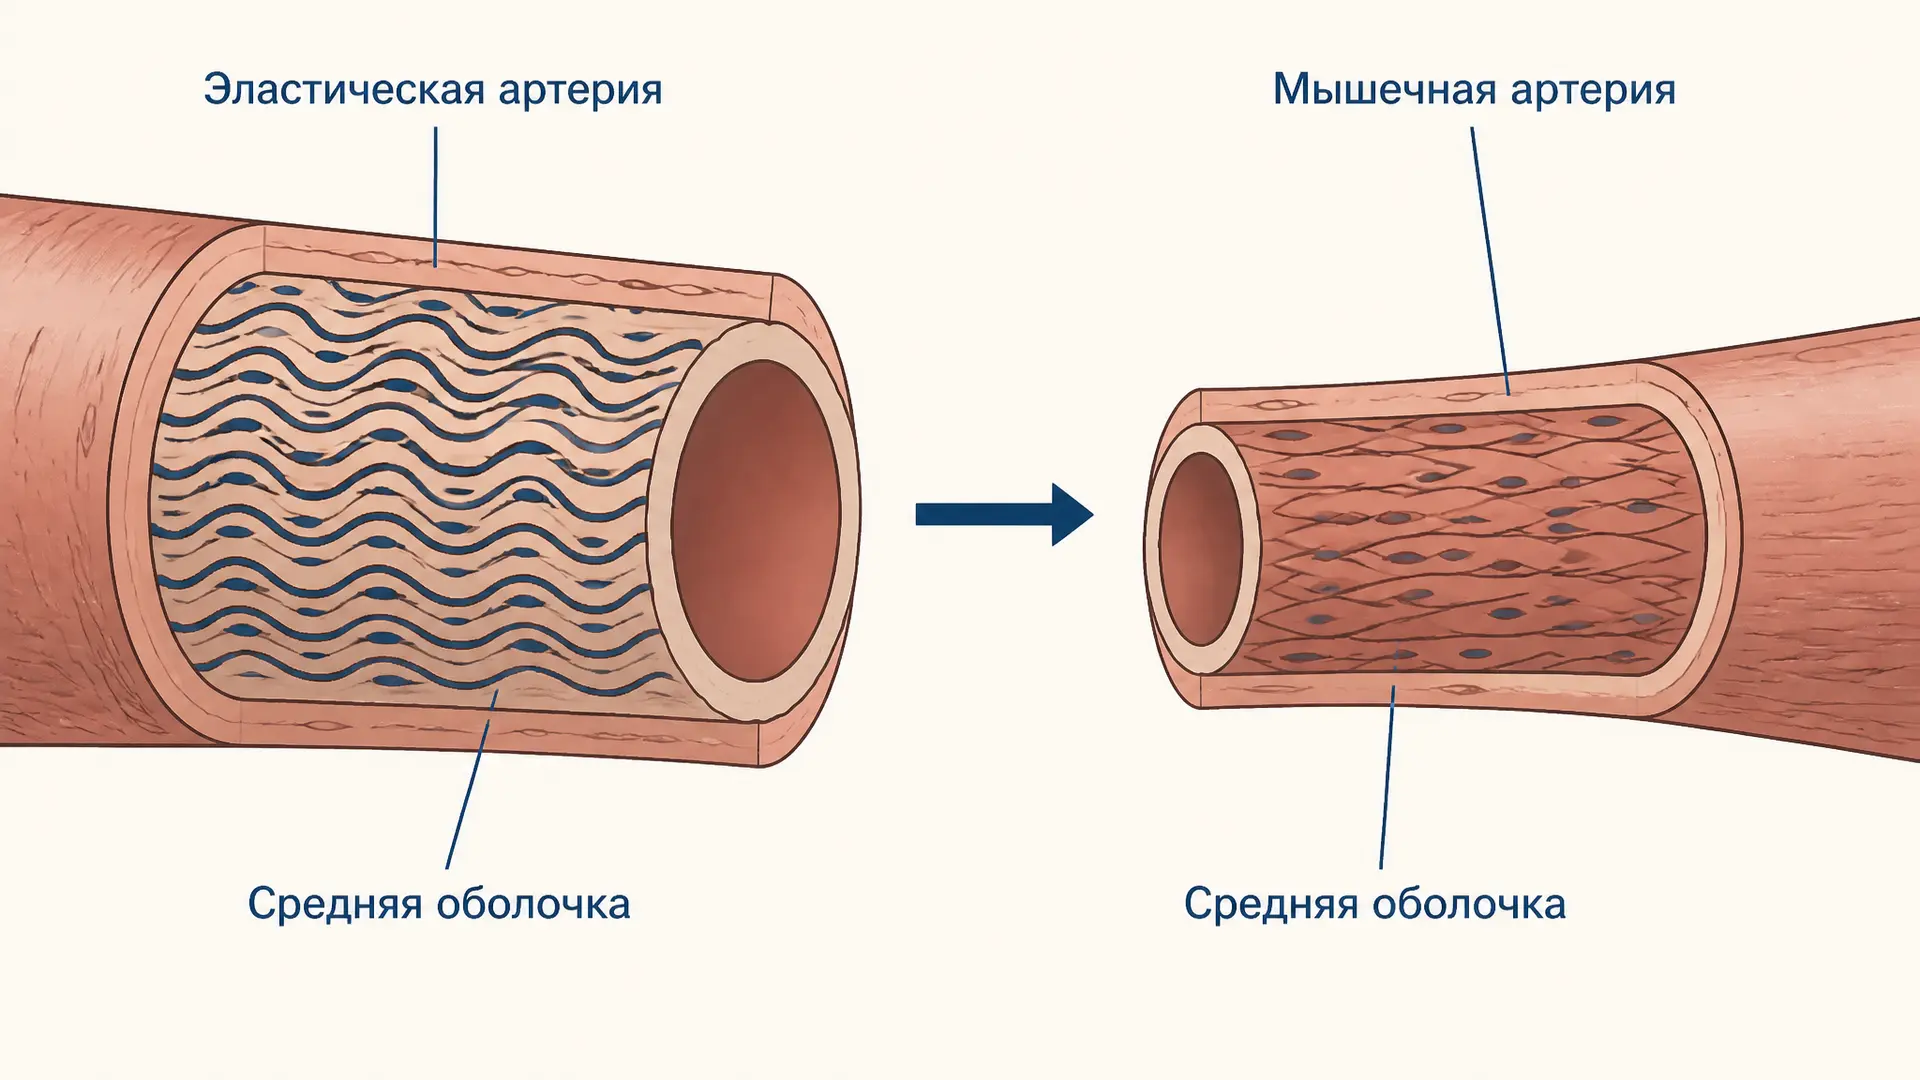
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.