Сцепленное наследование и кроссинговер: разбор задач
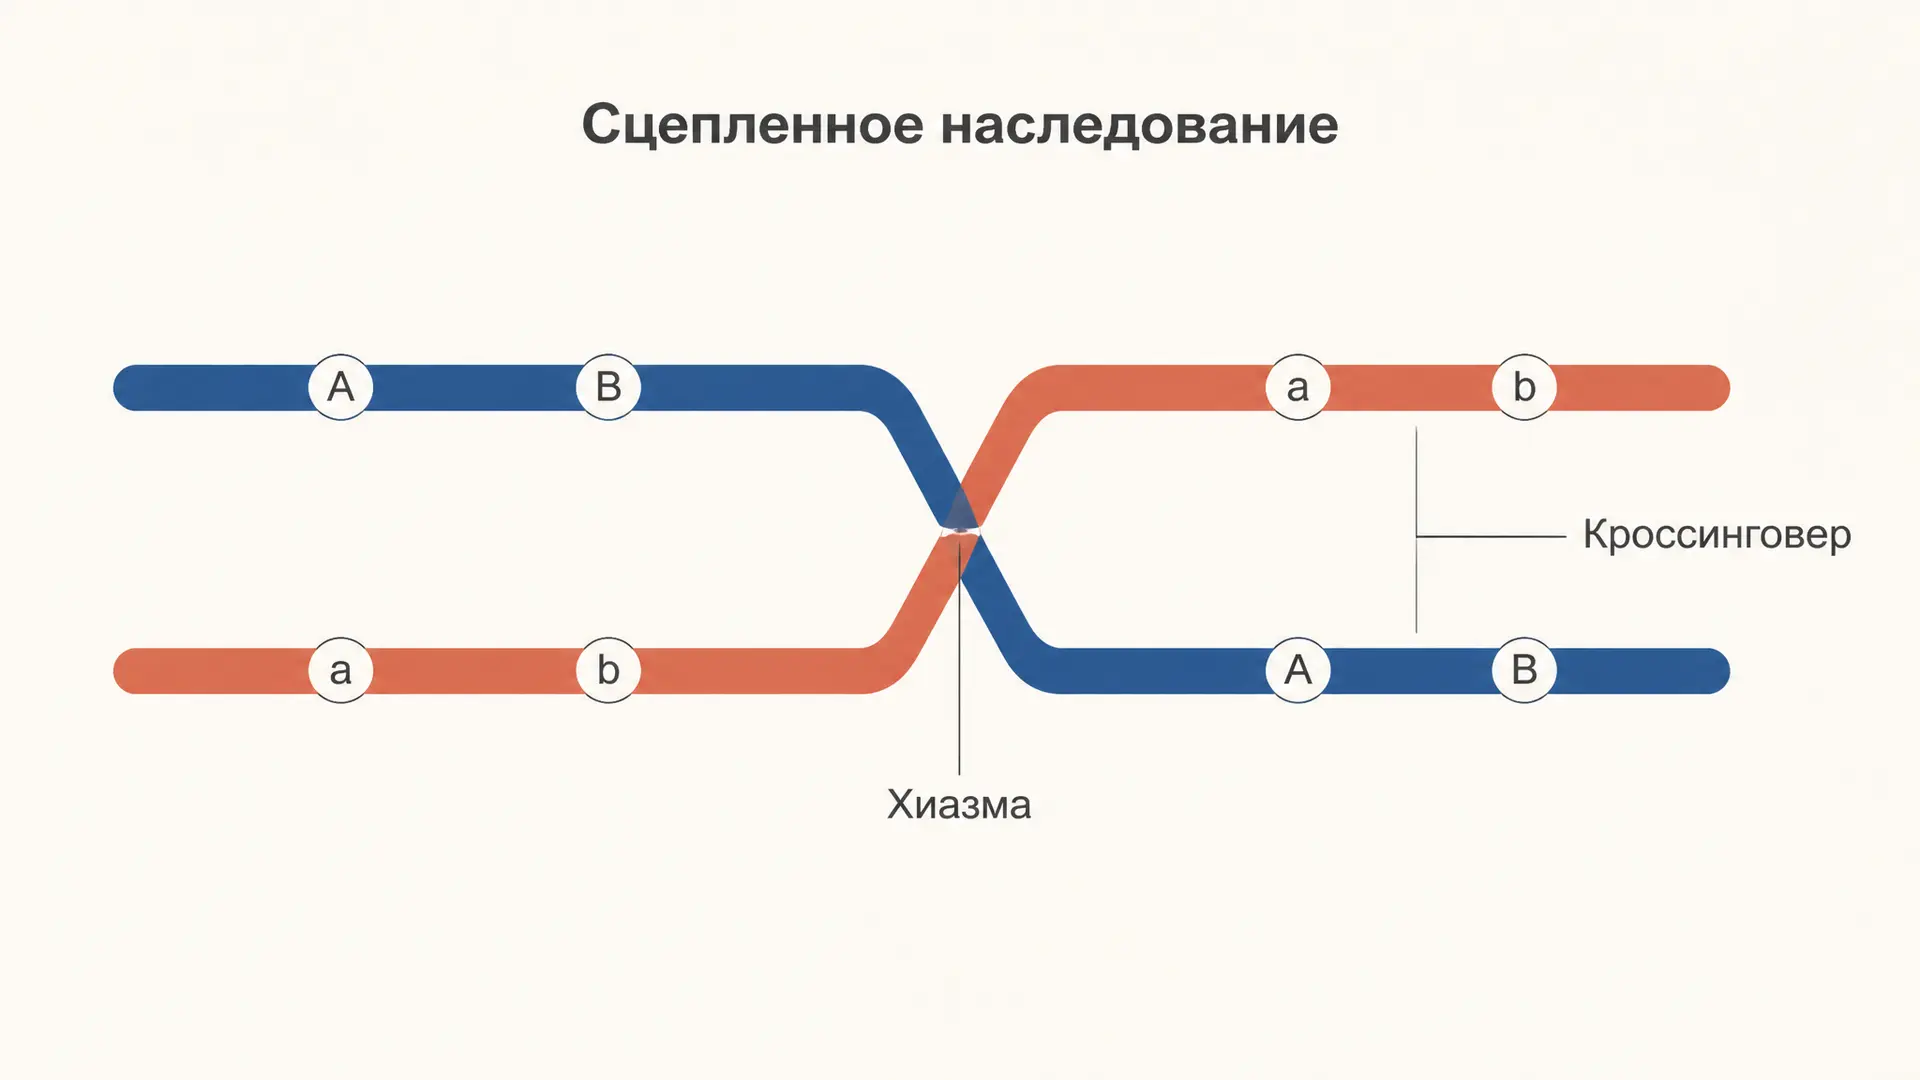
Третий закон Менделя обещает независимое комбинирование признаков, но выполняется он только для генов, лежащих в разных хромосомах. Гены одной хромосомы образуют группу сцепления и стремятся переходить к потомству вместе: это и есть сцепленное наследование. Совсем неразделимыми они, однако, не остаются, потому что в профазе первого деления мейоза гомологи обмениваются участками, и часть гамет получает новые сочетания аллелей. Такой обмен называют кроссинговером, а доля потомков с перекомбинированными признаками служит линейкой для расстояния между генами. Ниже разберём механизм, запись генотипов, расчёт частоты рекомбинации и порядок решения задачи, а калькулятор рядом покажет, как расстояние в сантиморганах превращается в ожидаемое расщепление.
Почему третий закон Менделя иногда не работает
Мендель работал с признаками, гены которых оказались в разных хромосомах гороха, поэтому дигибридное скрещивание давало у него аккуратное расщепление , а анализирующее - . Как только под руку экспериментатора попадают два гена одной хромосомы, картина меняется: родительские сочетания признаков встречаются заметно чаще новых.
Классический опыт Томаса Моргана на дрозофиле: дигетерозиготную самку с серым телом и нормальными крыльями скрестили с самцом, у которого тело чёрное, а крылья зачаточные. Вместо ожидаемых четырёх равных классов получилось примерно и родительских фенотипов против и новых. Отсюда закон Моргана: гены, расположенные в одной хромосоме, наследуются преимущественно совместно.
Число групп сцепления равно гаплоидному числу хромосом: у дрозофилы их четыре, у человека двадцать три. Все гены одной группы формально сцеплены, но чем дальше они друг от друга, тем чаще их разделяет кроссинговер и тем слабее сцепление выглядит в опыте.
Кроссинговер: обмен участками в профазе I
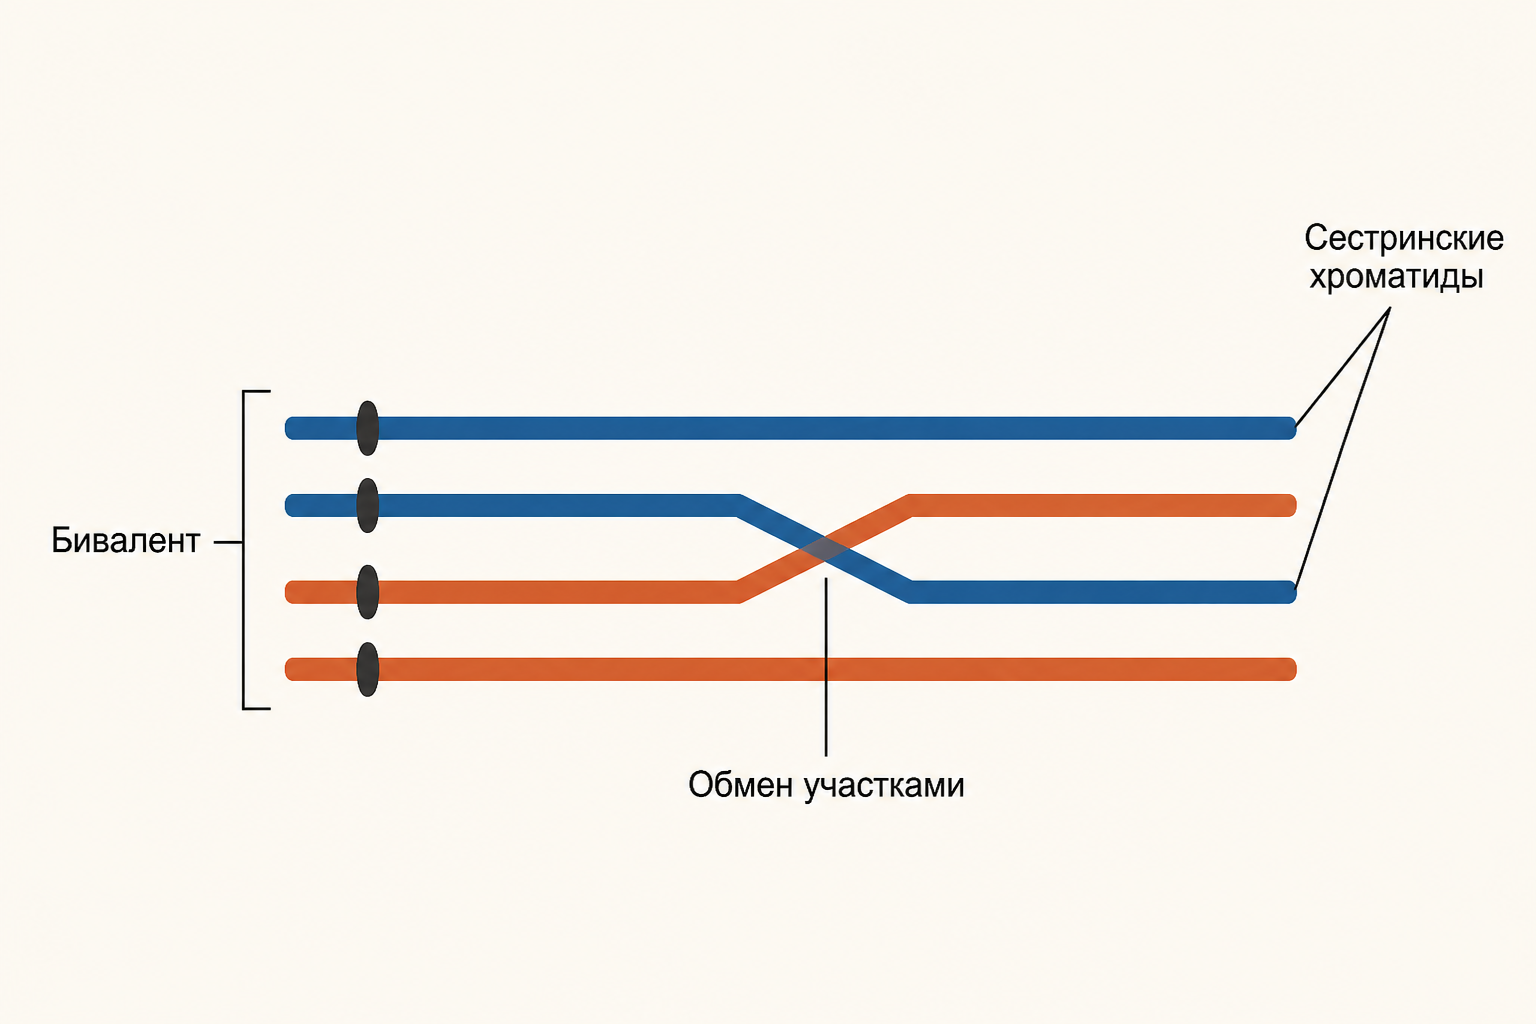
Кроссинговер идёт в профазе первого мейотического деления, на стадии пахитены. Гомологичные хромосомы к этому моменту уже удвоены и конъюгируют, образуя бивалент из четырёх хроматид. В точках контакта, которые видны в микроскоп как хиазмы, несестринские хроматиды разрываются и сшиваются крест-накрест, обменивая равные по длине участки.
Важная деталь для расчётов: одна хиазма затрагивает только две хроматиды из четырёх. Поэтому даже при обязательном обмене в каждом мейозе доля рекомбинантных гамет от одного события не превышает . Разрыв возникает случайно в любой точке хромосомы, значит вероятность попадания точки обмена между двумя генами тем выше, чем больше расстояние между ними. Это и делает кроссинговер измерительным инструментом.
Цис и транс фаза: как записать генотип
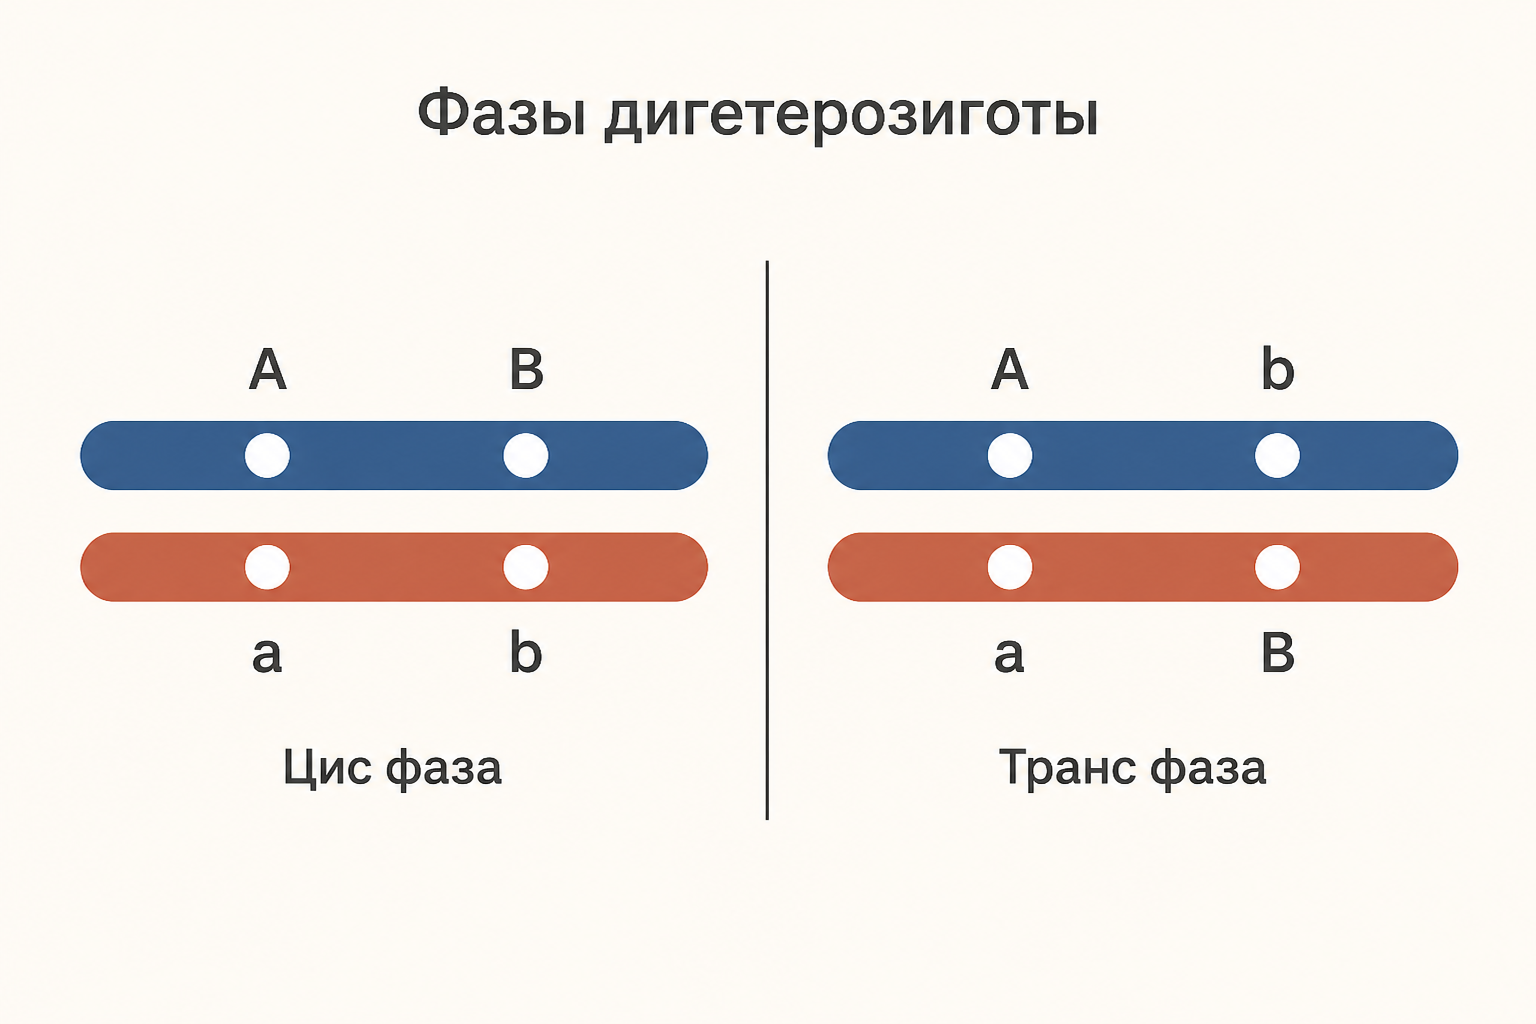
Дигетерозиготу при сцеплении нельзя записывать привычной строкой: важно, как аллели распределены по двум гомологам. Используют дробную запись, где числитель - одна хромосома, знаменатель - вторая:
В цис фазе оба доминантных аллеля сидят в одной хромосоме, в транс фазе они разведены по разным. Генотип формально один и тот же, а вот набор частых и редких гамет - противоположный. При цис фазе некроссоверными будут гаметы и , а кроссоверными - и ; при транс фазе наоборот.
Фазу определяют по родителям дигетерозиготы: аллели, пришедшие от одного родителя, лежат в одной хромосоме. Если в условии сказано, что мать была гомозиготна по обоим доминантным признакам, а отец по обоим рецессивным, у потомка гарантированно цис фаза.
Анализирующее скрещивание: четыре класса потомков
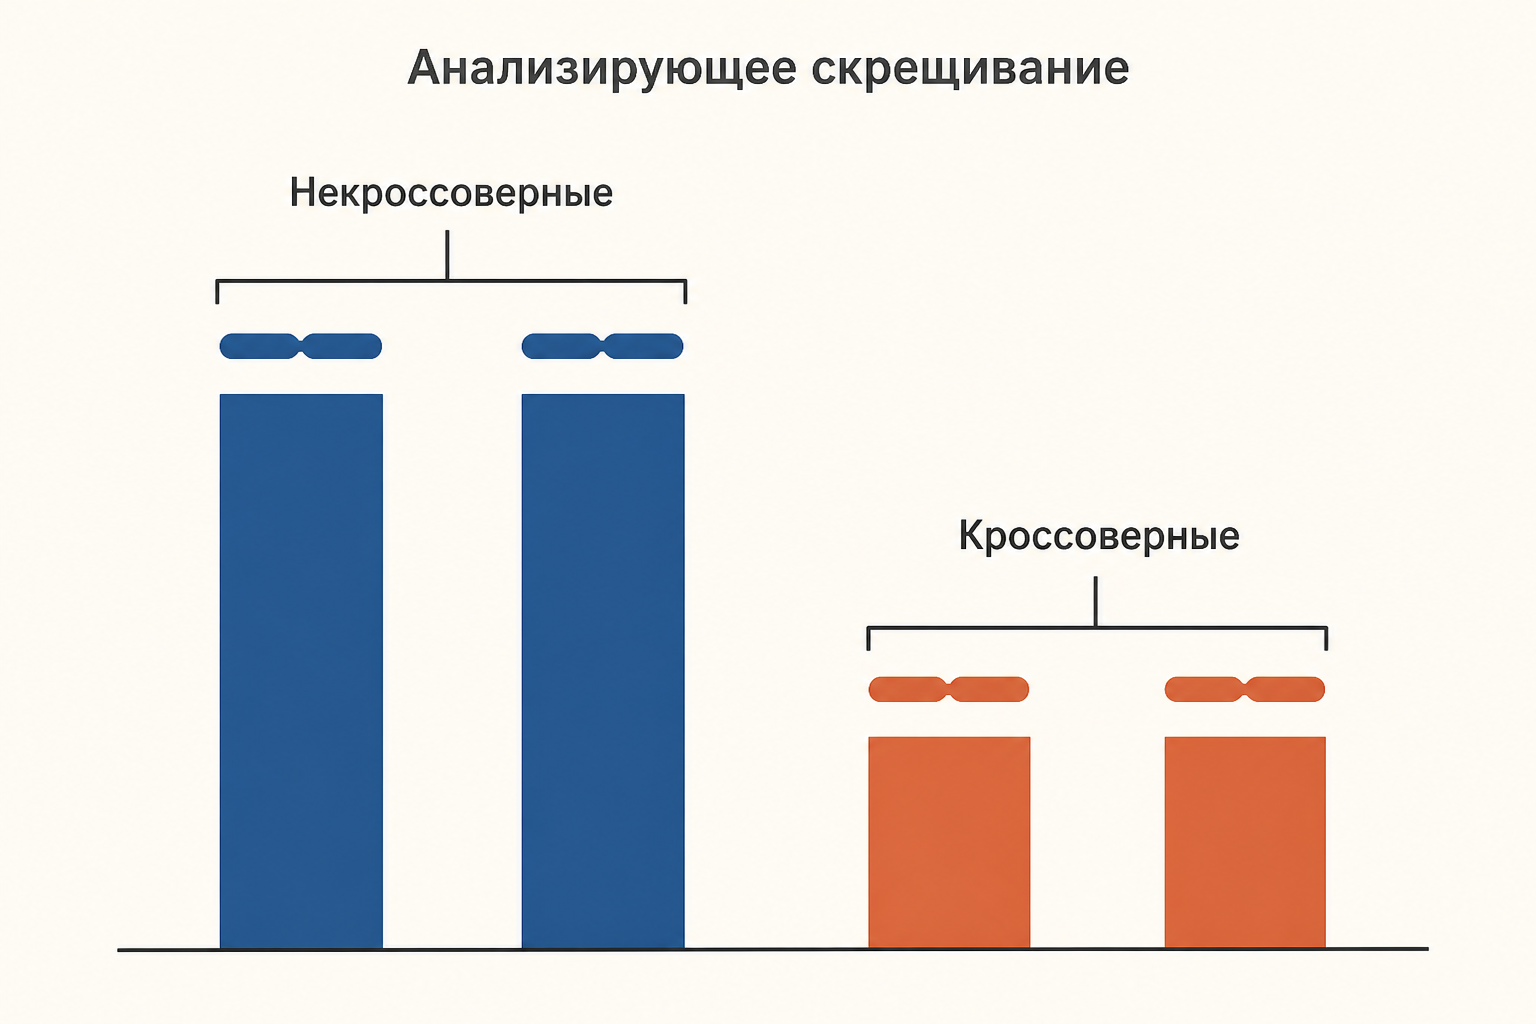
Частоту рекомбинации считают по анализирующему скрещиванию: дигетерозиготу скрещивают с рецессивной гомозиготой . Такой партнёр даёт единственный тип гамет, поэтому фенотип каждого потомка напрямую показывает, какую гамету дал анализируемый родитель. Гадать о генотипах не приходится.
Потомство распадается на четыре класса. Два многочисленных повторяют родительские сочетания признаков - это некроссоверные потомки. Два редких несут новые комбинации - это кроссоверные, или рекомбинанты. Внутри каждой пары численности примерно равны, потому что взаимный обмен даёт оба реципрокных продукта одновременно. Резкий перекос внутри пары - сигнал ошибки в подсчёте или пониженной жизнеспособности одного класса.
Частота рекомбинации и сантиморганы
Частота рекомбинации - доля кроссоверных потомков от общего числа:
Единица расстояния названа в честь Моргана: рекомбинации равен одной сантиморганиде, сМ. Для опыта с дрозофилой при потомков и классах , , , получаем
Обратная задача решается так же просто. Если известно расстояние сМ и общее число потомков , то каждый кроссоверный класс ожидается в количестве , а каждый некроссоверный - . Попарные расстояния затем складывают в линейную карту хромосомы, и по трём генам сразу видно их порядок; подробнее об этом в разборе про карты хромосом.
Полное сцепление, неполное и предел в 50 процентов
Полное сцепление означает, что кроссинговера между генами нет вовсе: потомство даёт только два родительских класса в отношении . Так ведут себя самцы дрозофилы и самки тутового шелкопряда, у которых кроссинговер отсутствует как явление. Неполное сцепление - обычный случай: .
Величина - потолок, а не просто большое число. Если гены разнесены далеко, между ними успевают пройти два обмена и более, а двойной кроссинговер возвращает аллели в исходное сочетание и в подсчёт рекомбинантов не попадает. Наблюдаемая частота из-за этого занижается и асимптотически подходит к , то есть к картине независимого наследования. Именно поэтому расстояния свыше сМ измеряют не напрямую, а суммированием коротких интервалов или пересчитывают функциями картирования Холдейна и Косамби. Локальное подавление обмена даёт и перестройка хромосомы, например инверсия участка.
Алгоритм решения задачи
- Проверьте, сцеплены ли гены: сравните расщепление с в анализирующем скрещивании или с в дигибридном. Перекос в пользу родительских сочетаний означает сцепление.
- Определите фазу дигетерозиготы по её родителям и запишите генотип дробью.
- Выпишите четыре типа гамет и отметьте, какие из них кроссоверные.
- Сложите численности двух редких классов и разделите на общее число потомков - получите частоту рекомбинации и сразу расстояние в сМ.
- Для обратной задачи распределите потомков по формулам и .
- Проверьте себя: сумма всех классов равна , редкими оказались именно перекомбинированные фенотипы, а расстояние не превысило сМ.
Частые ошибки
- Путают фазу: при транс записи частыми будут потомки с одним доминантным признаком, а не с двумя, и «очевидный» ответ оказывается перевёрнутым.
- Называют кроссоверными самые многочисленные классы. Кроссоверные всегда редкие, потому что обмен именно в этом интервале случается не в каждом мейозе.
- Делят число рекомбинантов на численность одного класса или на число родительских особей вместо общего числа потомков .
- Считают частоту рекомбинации по обычному скрещиванию двух дигетерозигот: там доминирование маскирует генотипы и фенотипы гамет напрямую не читаются, нужно анализирующее скрещивание.
- Смешивают сцепление генов друг с другом и сцепление с полом. Во втором случае речь о локализации гена в половой хромосоме, и логика решения другая, как в задачах на дальтонизм.
FAQ
Чем сцепленное наследование отличается от сцепленного с полом? Сцепленное наследование описывает совместную передачу двух генов из одной хромосомы, и она может быть любой, включая аутосому. Сцепление с полом означает, что ген лежит в X или Y хромосоме, и признак по-разному проявляется у самцов и самок. Понятия пересекаются, но не заменяют друг друга.
Может ли частота рекомбинации оказаться больше 50 процентов? В корректно посчитанном опыте нет. Значение около говорит, что гены либо в разных хромосомах, либо так далеко друг от друга, что различить эти варианты по одному скрещиванию нельзя. Превышение обычно означает арифметическую ошибку или неверно выбранные родительские классы.
Как решать задачу, если кроссинговера нет? У самцов дрозофилы и самок шелкопряда сцепление полное, поэтому анализирующее скрещивание даёт только два класса потомков в отношении , а частота рекомбинации равна нулю. Расстояние между генами по такому скрещиванию не определяется, для карты берут пол, у которого обмен идёт.
Коротко
Гены одной хромосомы наследуются совместно, но кроссинговер в профазе I разрывает это сцепление тем чаще, чем дальше гены разнесены. Частоту рекомбинации измеряют по анализирующему скрещиванию как долю двух редких классов потомков, а один процент рекомбинации принимают за одну сантиморганиду. Ключевые шаги решения: определить фазу дигетерозиготы, отличить некроссоверные гаметы от кроссоверных, посчитать долю рекомбинантов от общего числа и помнить, что наблюдаемая величина не может превысить пятьдесят процентов.
Читайте также
Карта генов в морганидах: как строят и читают
Карта генов в морганидах: что такое морганида и сантиморган, как частота кроссинговера задаёт расстояние, правило сложения и построение карты по трёхфакторному скрещиванию.
Гибридологический метод Менделя: как устроен опыт
Гибридологический метод Менделя: выбор чистых линий гороха, альтернативные признаки, учёт потомства и анализ поколений. Почему этот план опыта сделал наследование измеримым.
Испытание производителей по потомству
Испытание производителей по потомству: зачем быка оценивают по дочерям, как сравнивают сверстниц, считают учебный индекс, используют BLUP и геномную селекцию.
Массовый и индивидуальный отбор в селекции
Массовый и индивидуальный отбор в селекции: сравнение по фенотипу и потомству, чистые линии, опыт Иогансена с фасолью, семейный, бессознательный и методический отбор.
Опыт Гриффита: как бактерии меняли признаки
Опыт Гриффита 1928 года: S- и R-штаммы пневмококка, четыре варианта на мышах, трансформирующий фактор, роль контролей и последующее доказательство роли ДНК.
Первый закон Менделя: единообразие гибридов F1
Разбираем первый закон Менделя: опыт с горохом, доминантные и рецессивные аллели, запись AA × aa, решётку Пеннета, условия выполнения закона и исключения.