Эндосимбиотическая теория: доказательства и спорные места
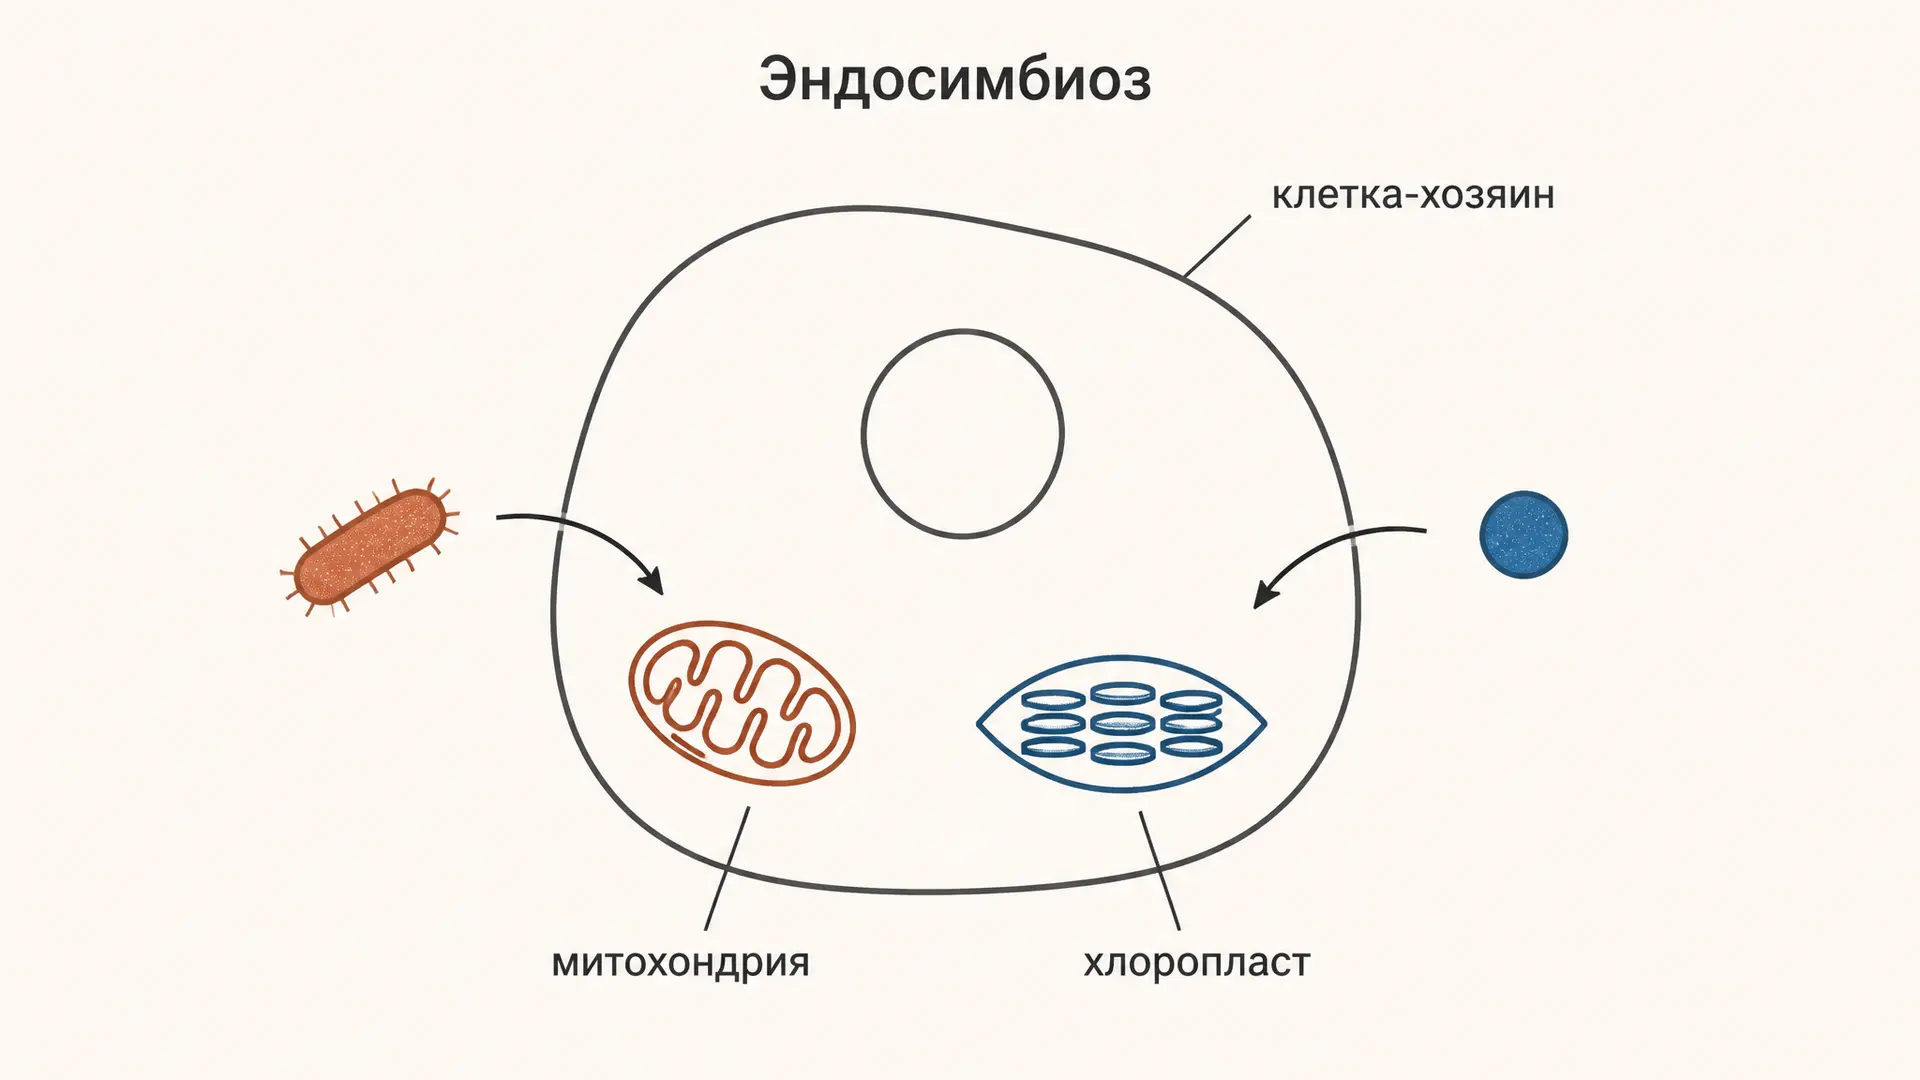
Эндосимбиотическая теория объясняет, откуда в клетках эукариот взялись митохондрии и хлоропласты. Когда-то это были свободноживущие бактерии: они попали внутрь другой клетки, не были переварены и за сотни миллионов лет превратились в органеллы. Сейчас это общепринятая часть биологии, подтверждённая сравнением геномов. Если нужно разобрать конкретную органеллу для билета или семинара, выберите её в форме ниже.
Суть теории: бактерия, ставшая органеллой
Эндосимбиоз - частный случай симбиоза, при котором один организм живёт внутри клеток другого. Общую классификацию связей (мутуализм, комменсализм, паразитизм) мы разбирали в статье о типах симбиоза. Здесь нас интересует крайний случай: партнёры срастаются так тесно, что по отдельности уже не существуют.
Теория утверждает три вещи. Первое: митохондрии происходят от аэробных бактерий из группы альфа-протеобактерий, а пластиды (хлоропласты и их родственники) от цианобактерий. Второе: бактерия попала в клетку-хозяина целиком и сохранила оболочку, геном и аппарат синтеза белка. Третье: со временем большинство генов симбионта ушло в ядро хозяина или потерялось, и органелла стала полностью зависимой от клетки. Хозяин получил кислородное дыхание или фотосинтез, симбионт получил защищённую среду и сырьё.
От Мережковского к Маргулис: как идея стала теорией
Первым самостоятельность пластид заметил немецкий ботаник Андреас Шимпер: в 1883 году он описал, что хлоропласты не возникают заново, а делятся, как отдельные организмы. Теорию построил русский биолог Константин Мережковский. В 1905 году вышла его работа «О природе и происхождении хроматофоров в царстве растений», где хлоропласты прямо названы потомками цианобактерий, поселившихся в клетке. В 1909 году он ввёл термин «симбиогенез». В 1924 году Борис Козо-Полянский распространил идею на митохондрии.
Большую часть XX века симбиогенез считали курьёзом: проверить его было нечем. Перелом наступил в 1960-е, когда в митохондриях и хлоропластах нашли собственную ДНК. В 1967 году американский биолог Линн Маргулис (тогда Линн Саган) опубликовала статью «О происхождении митозирующих клеток», которую перед этим отклонили полтора десятка журналов. Она свела данные цитологии, биохимии и палеонтологии в теорию последовательных эндосимбиозов, а в 1981 году изложила её в книге «Роль симбиоза в эволюции клетки». Спор закрыла молекулярная филогения конца 1970-х: рибосомная РНК органелл оказалась бактериальной.
Доказательства: чем органеллы выдают бактериальное прошлое
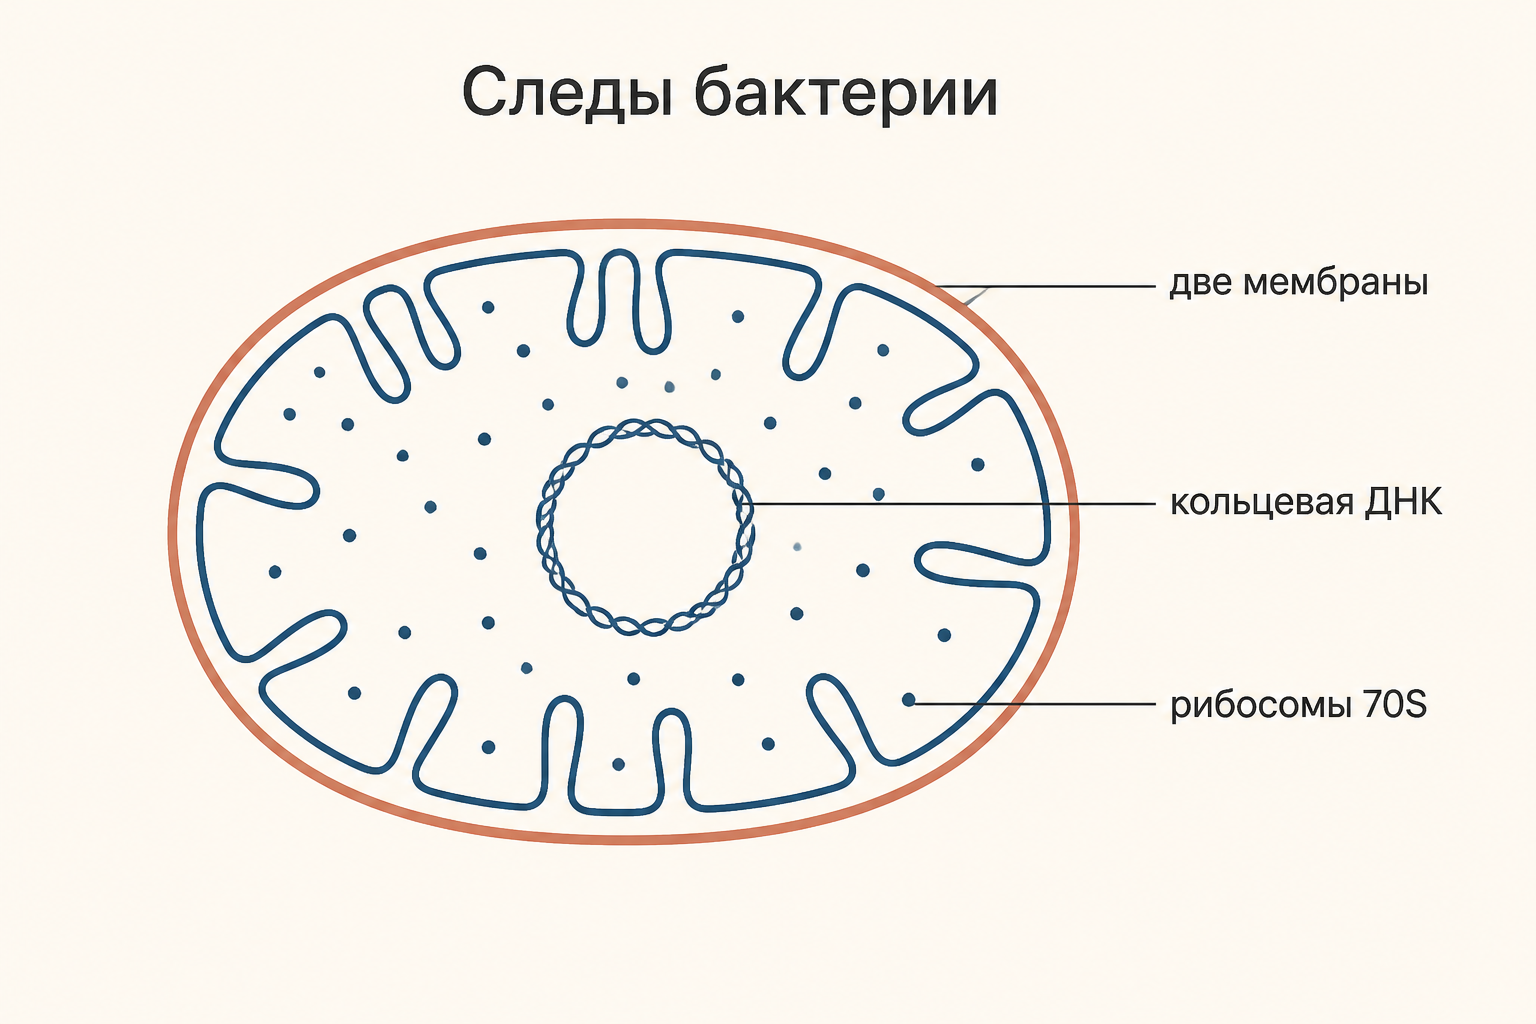
Ни один признак по отдельности теорию не доказывает, силу даёт их совпадение.
| Признак органеллы | Аналог у бактерий | Что показывает |
|---|---|---|
| Две мембраны с бактериальными липидами и белками-поринами | Оболочка грамотрицательной бактерии | Оболочка унаследована от симбионта |
| Своя кольцевая ДНК без гистонов | Кольцевая хромосома в нуклеоиде | У органеллы был свой геном |
| Рибосомы 70S, чувствительные к хлорамфениколу и стрептомицину | Те же рибосомы и мишени антибиотиков | Бактериальный синтез белка |
| Трансляция начинается с формилметионина | Тот же старт | Бактериальный синтез белка |
| Деление надвое, заново органелла не возникает | Бинарное деление, у пластид с белком FtsZ | Органелла размножается как организм |
| Гены рРНК родственны альфа-протеобактериям и цианобактериям | Прямое родство последовательностей | Названы конкретные предки |
О двухмембранной оболочке таких бактерий подробнее в статье о строении грамотрицательной клеточной стенки. Устройство рибосомы 70S и её субъединиц разобрано в материале о рибосоме прокариот. Оговорка: у митохондрий млекопитающих рибосомы уменьшились до 55S, но по белкам и рРНК остаются бактериальными. Отсюда побочное действие некоторых антибиотиков: хлорамфеникол и аминогликозиды в высоких дозах бьют и по синтезу белка в митохондриях.
Эндосимбиоз наблюдали и в лаборатории: в 1966 году культуру амёб Квана Чжона заразили бактерии, и через несколько лет выжившие амёбы уже не могли без них жить.
Кто стал митохондрией, а кто хлоропластом
Митохондрии всех эукариот образуют одну ветвь на древе бактерий, то есть симбионт был приобретён один раз, ещё до последнего общего предка эукариот. Долго ближайшими родственниками считали риккетсий, но новые анализы ставят митохондрии у основания всей ветви альфа-протеобактерий. Эукариоты, у которых митохондрий будто бы нет, на деле несут их упрощённые формы: гидрогеносомы у трихомонад, митосомы у лямблий.
Первичная пластида тоже возникла один раз, у общего предка архепластид: зелёных водорослей вместе с наземными растениями, красных водорослей и глаукофитов. У глаукофитов между двумя мембранами пластиды сохранился слой пептидогликана, остаток бактериальной клеточной стенки. Тилакоиды, на которых идёт световая фаза, есть и у свободноживущих цианобактерий; как они устроены в хлоропласте, рассказано в статье о тилакоидах и гранах. Единственный известный повтор первичного события - амёба Paulinella chromatophora: её фотосинтезирующие тельца произошли от другой цианобактерии всего около 100 млн лет назад.
По оценкам молекулярных часов, клетка с митохондрией сложилась примерно 1,8-2 млрд лет назад, первичная пластида появилась около 1,5 млрд лет назад. Разброс оценок достигает сотен миллионов лет, и почему так выходит, объясняет статья о молекулярных часах эволюции.
Первичный, вторичный и третичный эндосимбиоз
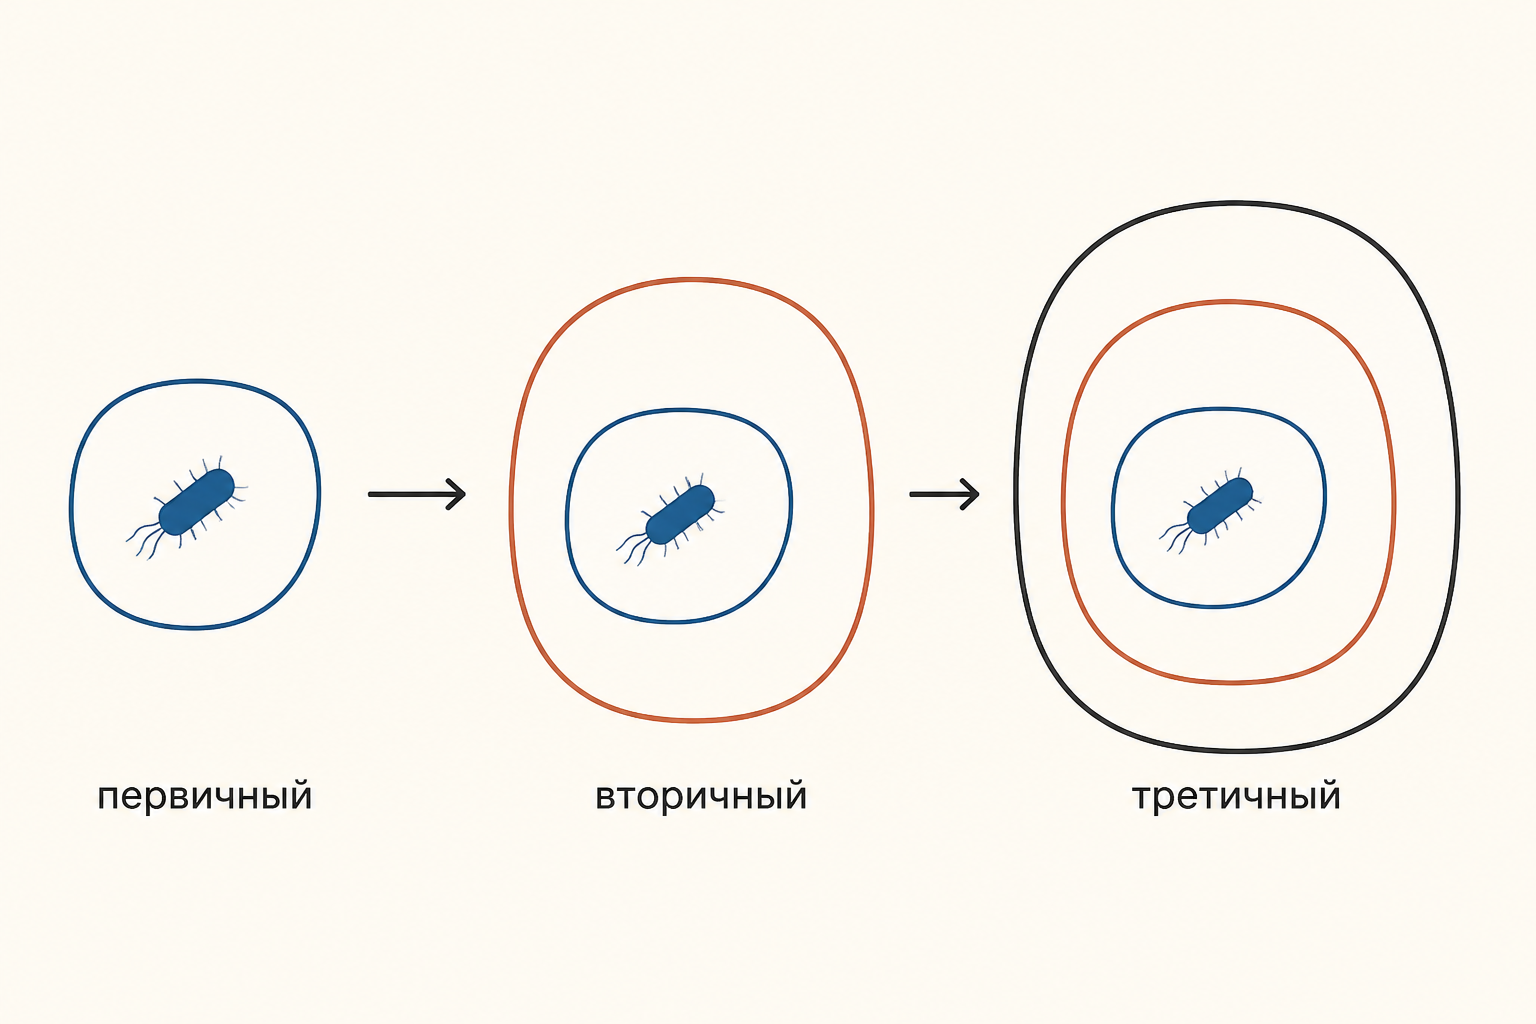
При первичном эндосимбиозе клетка захватывает цианобактерию, и у пластиды две мембраны. При вторичном эукариот захватывает уже готовую водоросль с первичной пластидой. Добавляются плазматическая мембрана водоросли и мембрана пищеварительной вакуоли хозяина, поэтому мембран становится до четырёх. У криптофитовых и хлорарахниофитовых водорослей между мембранами уцелел нуклеоморф, крошечный остаток ядра съеденной водоросли: самое наглядное доказательство вторичного эндосимбиоза. При третичном эукариот захватывает водоросль, у которой пластида уже вторичная.
| Тип | Кого захватили | Мембран у пластиды | Примеры |
|---|---|---|---|
| Первичный | Цианобактерию | 2 | Растения, зелёные и красные водоросли, глаукофиты |
| Вторичный | Водоросль с первичной пластидой | 3 или 4 | Эвглена (3), диатомовые и бурые водоросли, малярийный плазмодий (4) |
| Третичный | Водоросль со вторичной пластидой | Зависит от вида | Динофлагелляты Karenia и «динотомы» |
Пластида малярийного плазмодия (апикопласт) давно не фотосинтезирует, но нужна ему для синтеза жирных кислот, и её бактериальные ферменты стали мишенью противомалярийных препаратов.
Перенос генов в ядро: почему органелла не живёт отдельно
У свободноживущих альфа-протеобактерий тысячи генов. В митохондриальной ДНК человека 16 569 пар нуклеотидов и 37 генов: 13 белков, 22 тРНК и 2 рРНК. При этом в митохондрии работает около 1100 белков, так что своим геномом она кодирует около 1 % собственного состава. Все 13 белков входят в комплексы дыхательной цепи и АТФ-синтазу. Рекорд у простейшего Reclinomonas americana: около сотни генов, самый «бактериальный» митохондриальный геном из известных. У хлоропласта обычно 100-130 генов против нескольких тысяч у цианобактерии; у резуховидки Таля около 18 % ядерных генов имеют цианобактериальное происхождение.
Перенос идёт и сейчас: ДНК из разрушенных органелл встраивается в ядро, в геноме человека сотни таких вставок. Белки, чьи гены ушли в ядро, синтезируются в цитоплазме и доставляются обратно по сигнальной последовательности через транслоконы внешней и внутренней мембраны. Почему часть генов всё же осталась в органелле, объясняет гипотеза Джона Аллена: гены ключевых белков дыхания и фотосинтеза выгодно держать рядом с местом работы, чтобы регулировать их по состоянию самой органеллы.
Остатки собственного генома объясняют и материнское наследование органелл. Как оно проявляется в родословных, разобрано в статьях о митохондриальном наследовании и о цитоплазматической наследственности пластид.
Открытые вопросы: хозяин, ядро и асгард-археи
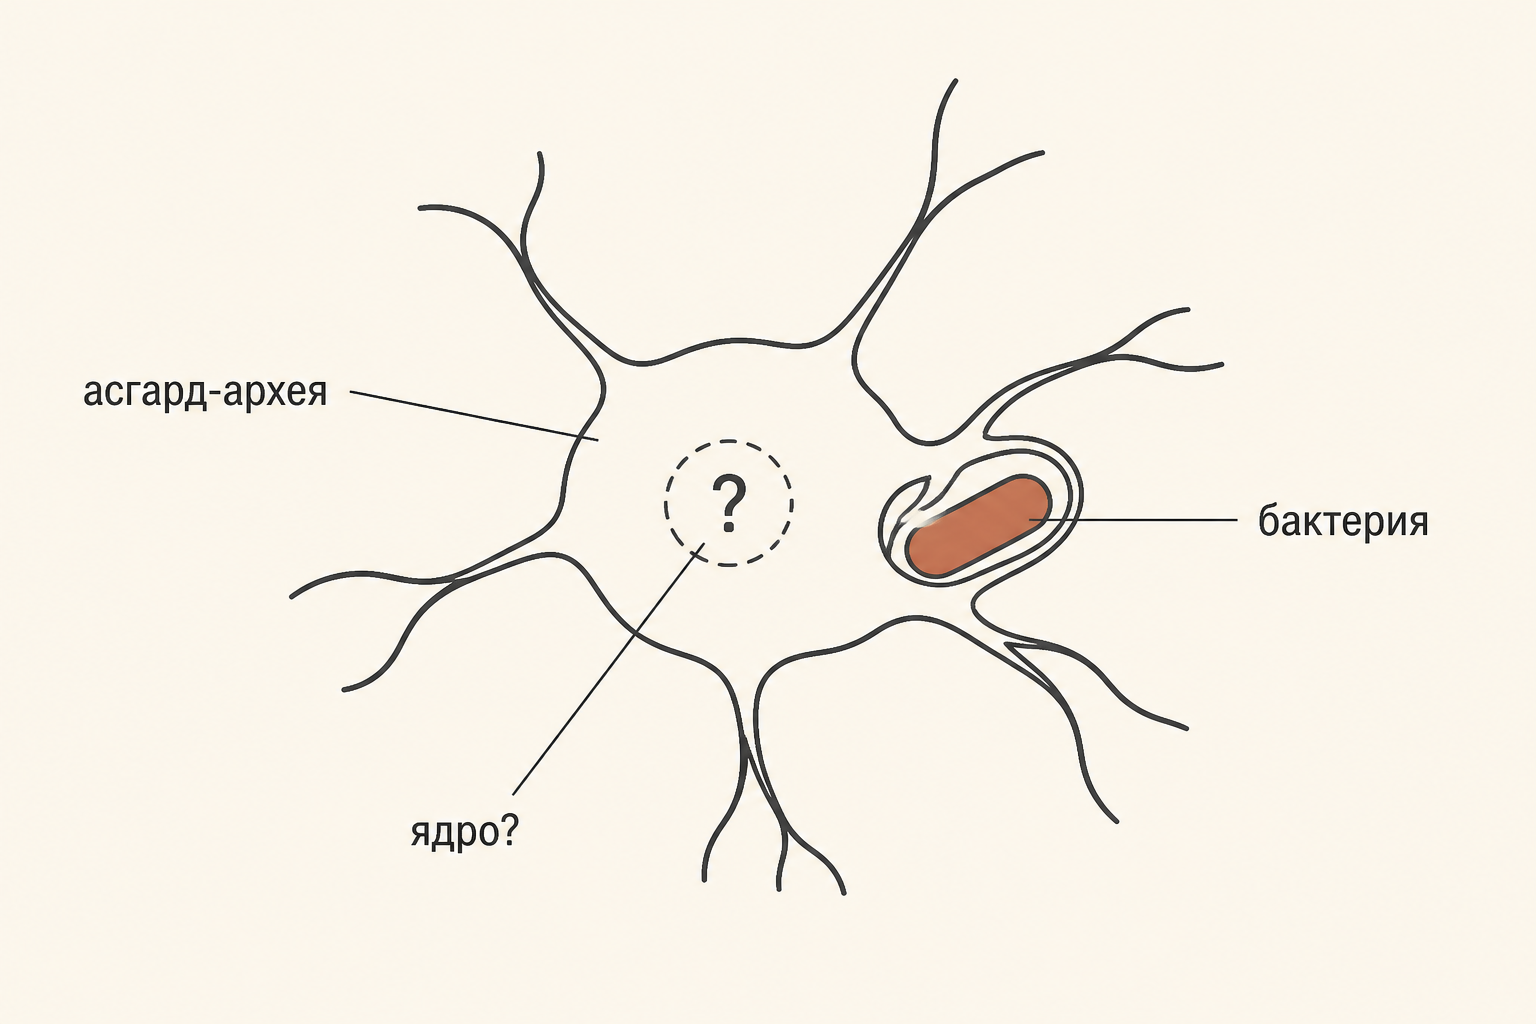
Происхождение митохондрий и пластид установлено, а вот кем был хозяин, до сих пор выясняют. В 2015 году в донных осадках у гидротермального поля «Замок Локи» между Гренландией и Норвегией нашли геномы локиархей, а затем целую группу родственных асгард-архей. В их геномах есть гены, которые считались чисто эукариотными: гомологи актина, белков мембранного транспорта и малых ГТФаз. По анализам 2023 года эукариоты вырастают изнутри асгард-архей, из группы хеймдалльархей.
В 2020 году японская группа Хироюки Имати после двенадцати лет работы вырастила асгард-архею Prometheoarchaeum syntrophicum. Это мелкие клетки с длинными ветвящимися выростами, живущие в тесной связке с бактериями. Отсюда модель «опутать, поглотить, встроить»: архея не заглатывала бактерию, как амёба, а постепенно обволакивала партнёра выростами.
Открытыми остаются два вопроса. Откуда взялось ядро: из впячивания мембраны, как защита генома от вставок из генов симбионта или вовсе от вируса. И что было раньше, фагоцитоз или митохондрия: по водородной гипотезе Мартина и Мюллера хозяин и симбионт сначала обменивались водородом, и заглатывать партнёра было не нужно.
Частые ошибки
- Путать предков. Митохондрия происходит от альфа-протеобактерии, хлоропласт от цианобактерии, а не наоборот.
- Считать, что внешняя мембрана досталась от хозяина. Эта схема ещё встречается в учебниках, но по белкам обе мембраны митохондрий и первичных пластид восходят к оболочке грамотрицательной бактерии. На экзамене безопаснее назвать обе версии.
- Расширять теорию на все органеллы. Ядро, ЭПС, аппарат Гольджи и пероксисомы симбионтами не были. Идея Маргулис о происхождении жгутиков от спирохет не подтвердилась.
- Приравнивать число мембран к числу захватов. Мембраны теряются: у эвглены пластида вторичная, а мембран три.
- Называть клептопластию эндосимбиозом. Морской слизень элизия месяцами держит хлоропласты съеденных водорослей, но они не делятся и не передаются потомству.
FAQ
Почему эндосимбиотическую теорию считают доказанной?
Потому что сходятся независимые линии данных, а решающая из них - филогения. Гены митохондрий встают на древе внутри альфа-протеобактерий, гены пластид внутри цианобактерий: это уже родство, а не внешнее сходство. Спорят о деталях: кем был хозяин и когда всё произошло.
Бывают ли эукариоты вообще без митохондрий?
Известен один надёжный случай: жгутиконосец Monocercomonoides, описанный в 2016 году. Но у его предков митохондрии были, он утратил их вторично. Гипотезу о древних эукариотах, никогда не имевших митохондрий, это не спасает.
Может ли органелла снова стать свободной бактерией?
Нет. Большинства генов у неё не осталось, почти все белки приходят из ядра, а в митохондриях человека даже генетический код изменён: кодон UGA читается как триптофан, а не как стоп-сигнал.
Коротко
Эндосимбиотическая теория утверждает, что митохондрии произошли от альфа-протеобактерий, а пластиды от цианобактерий, поглощённых древней клеткой. Идею выдвинул Мережковский в 1905 году, Маргулис в 1967 году развила её, молекулярная филогения доказала. Главные доказательства: две мембраны, кольцевая ДНК, рибосомы 70S, деление надвое и родство генов. Пластиды передавались и дальше, при вторичном и третичном эндосимбиозе, отсюда три и четыре мембраны. Большинство генов симбионтов ушло в ядро, поэтому органеллы не живут отдельно. Открытыми остаются вопросы о хозяине, которым, по-видимому, была асгард-архея, и о происхождении ядра.
Читайте также
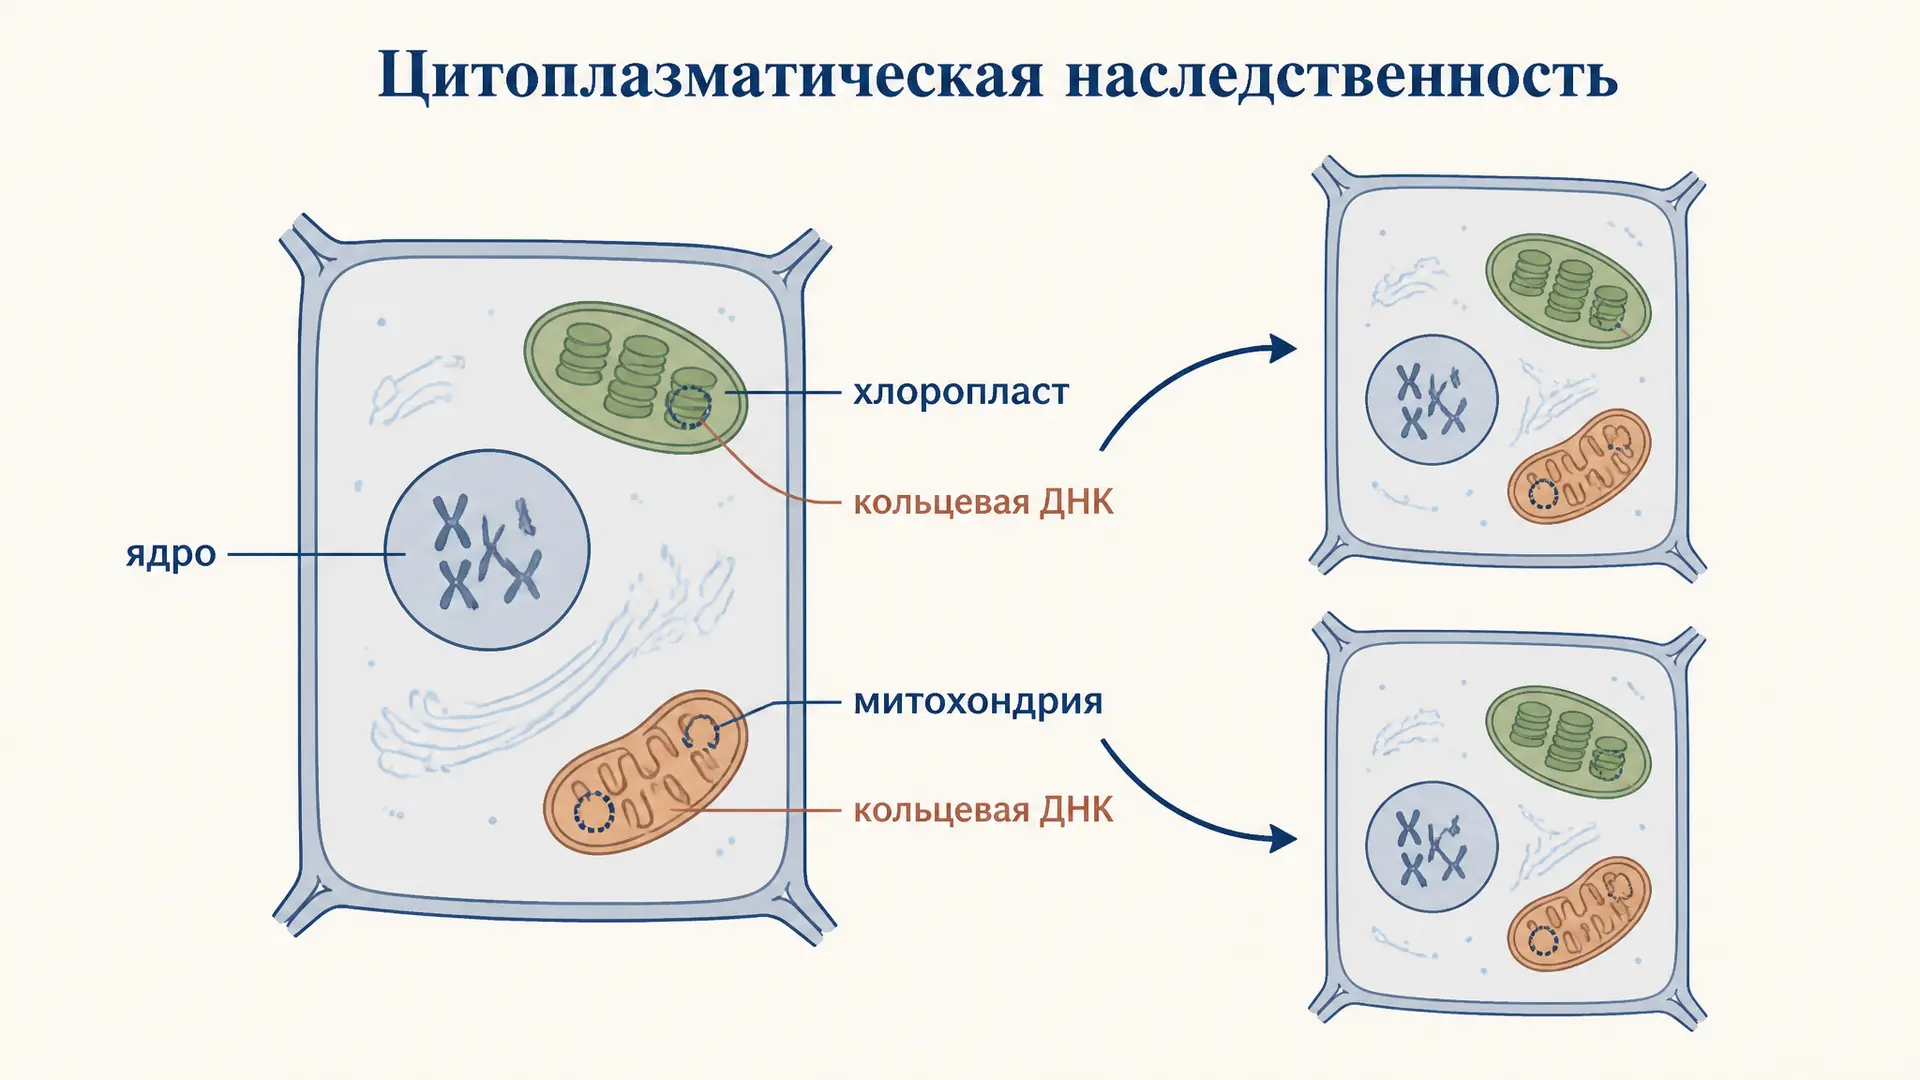
Цитоплазматическая наследственность: пластиды и митохондрии
Цитоплазматическая наследственность и пластиды: что такое внеядерные гены, почему признак наследуется по матери, как объясняется пёстролистность и опыты Корренса с ночной красавицей.
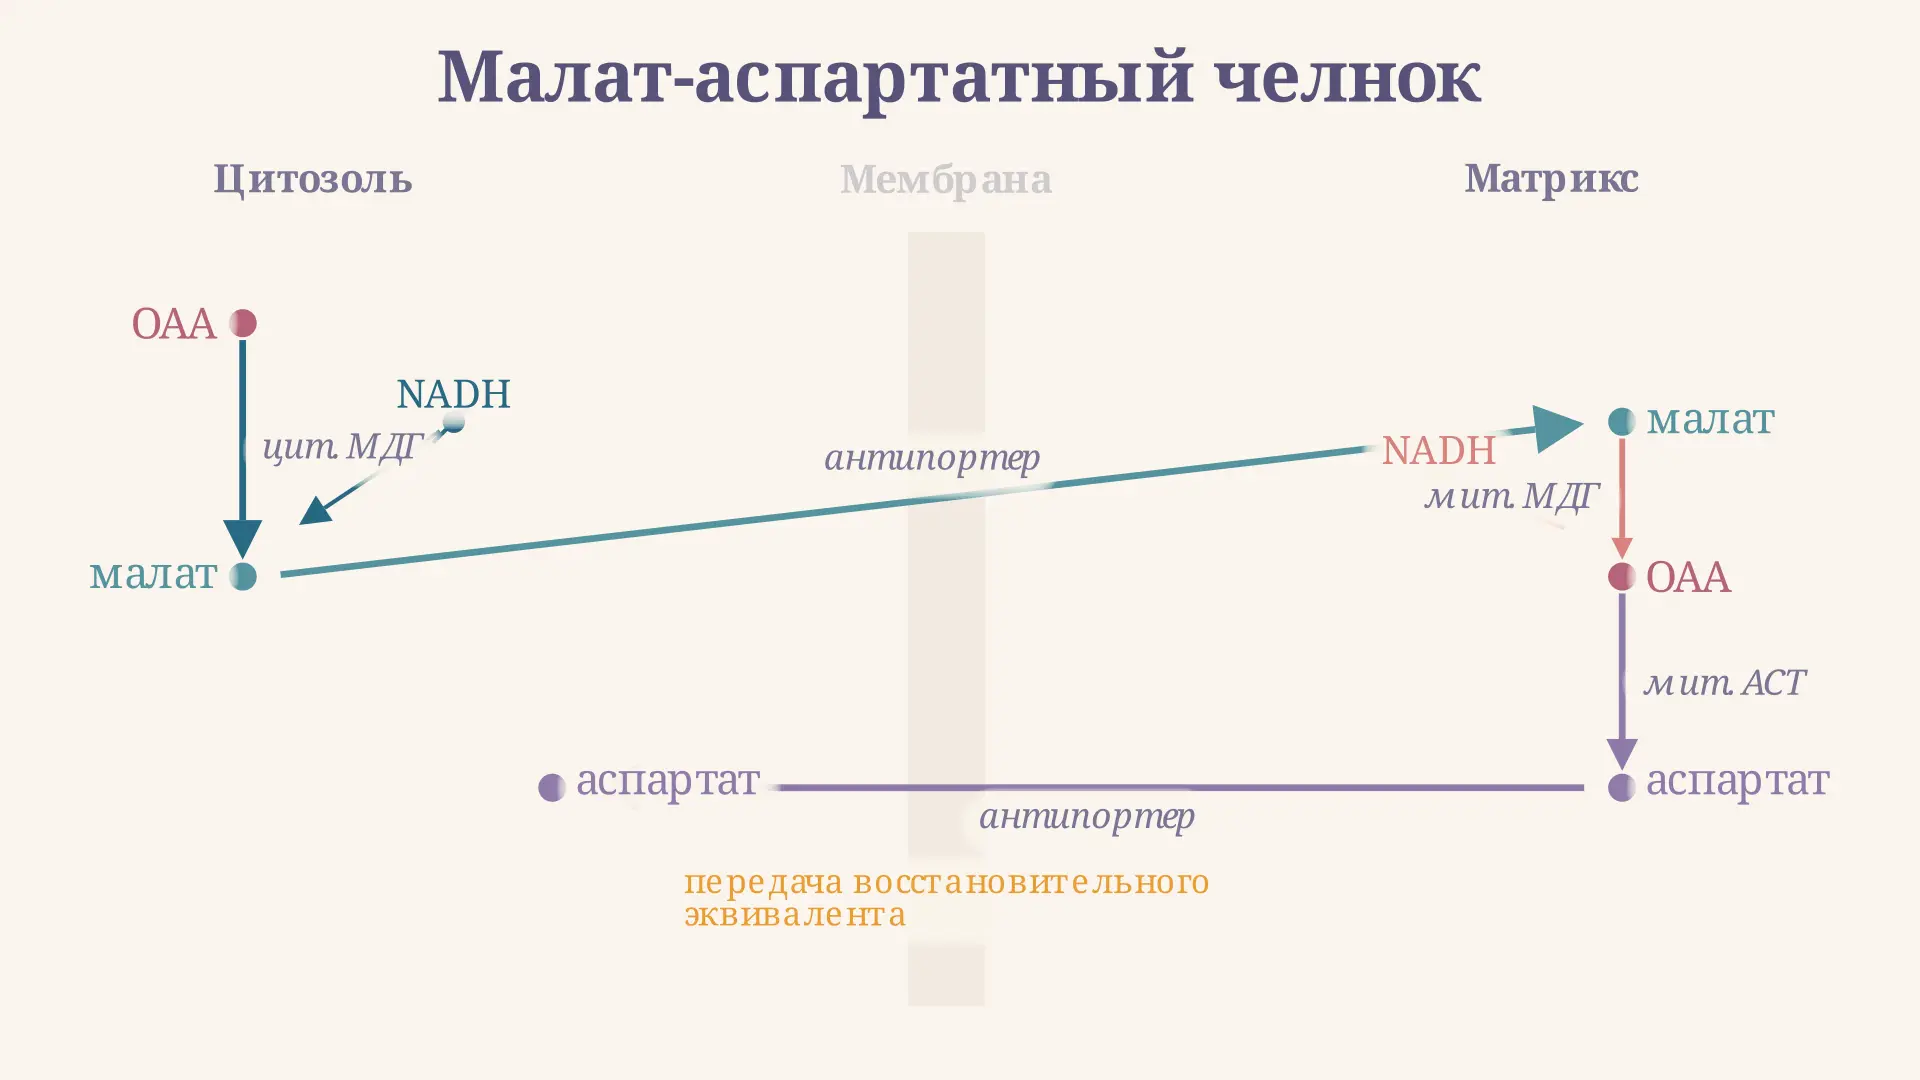
Малат-аспартатный челнок: механизм и выход АТФ
Малат-аспартатный челнок переносит NADH из цитозоля в митохондрии. Разбираем четыре реакции, сравниваем с глицерофосфатным, считаем выход АТФ из глюкозы.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.