TUNEL-метод: метка разрывов ДНК в клетках
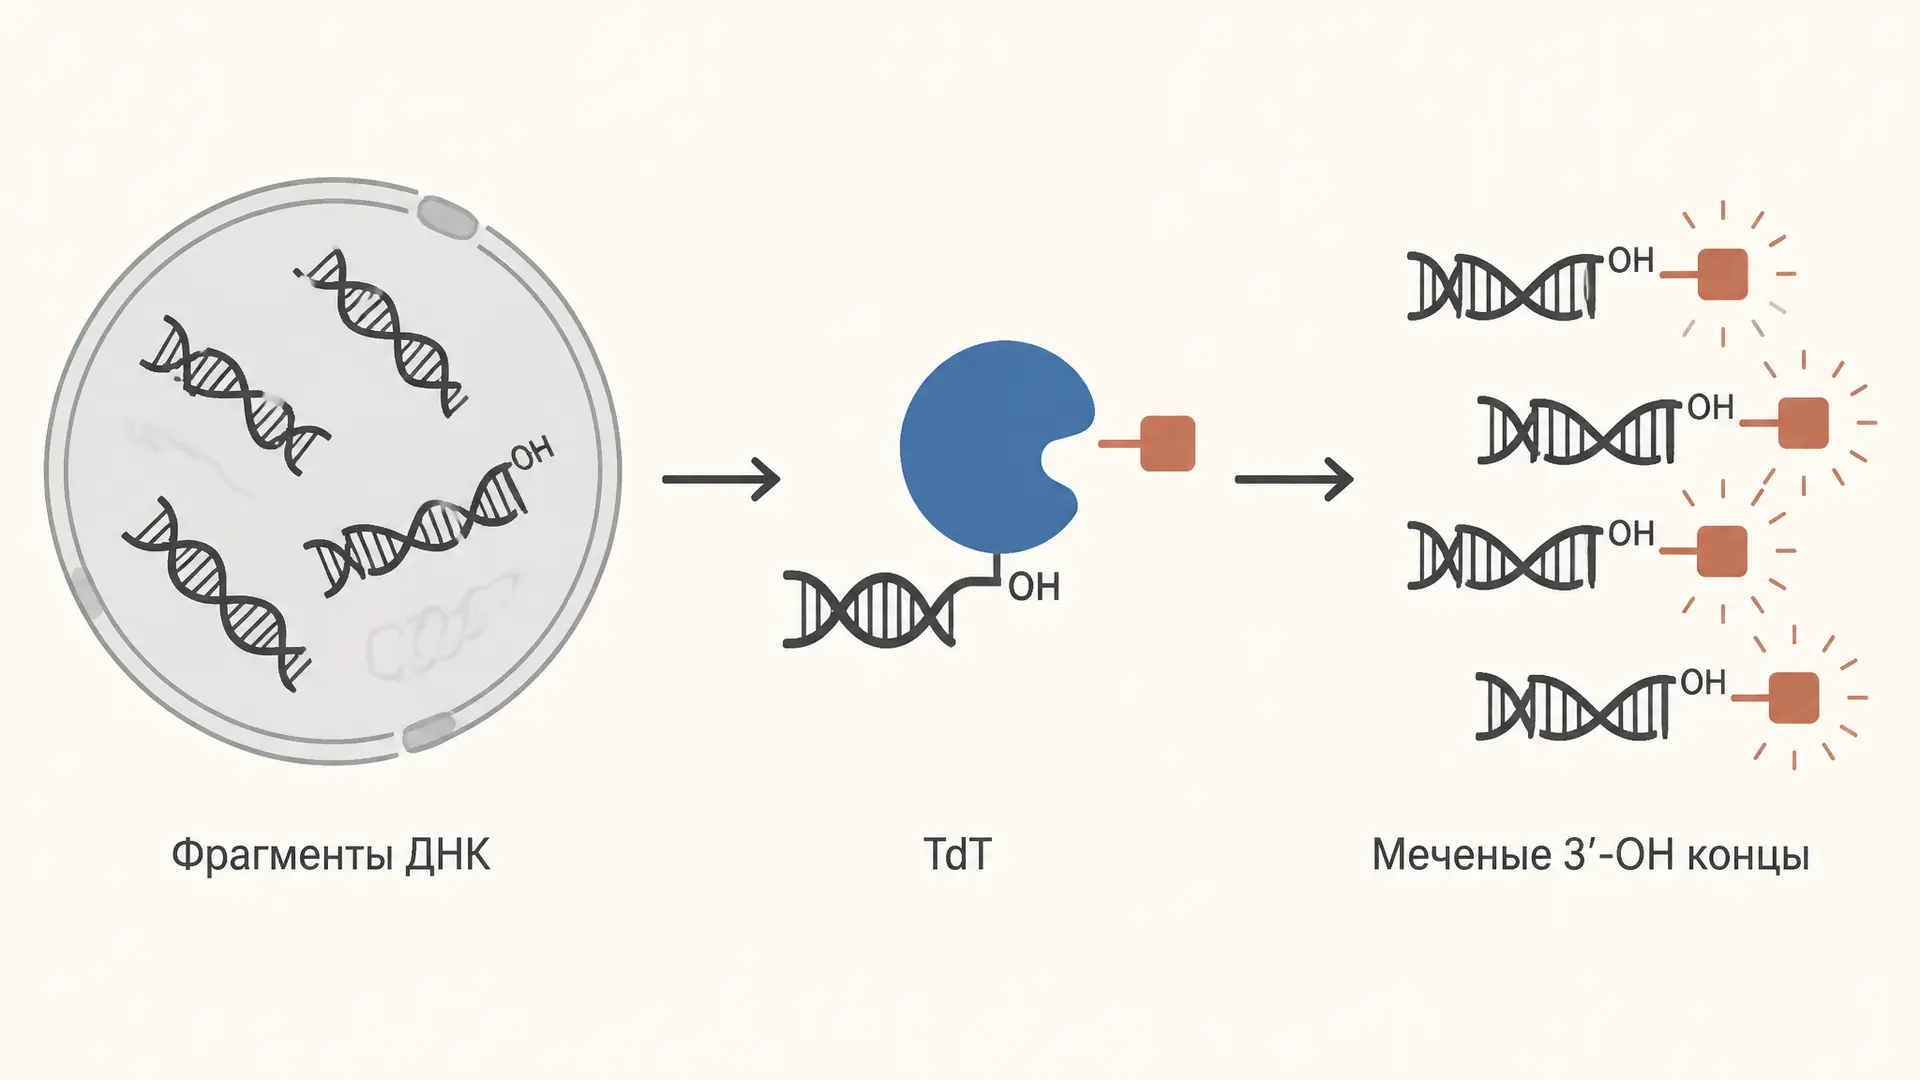
TUNEL-метод нужен, когда исследователь хочет увидеть в отдельных клетках разрывы ДНК прямо на срезе ткани или в культуре. Название расшифровывают как terminal deoxynucleotidyl transferase dUTP nick end labeling: терминальная дезоксинуклеотидилтрансфераза, или TdT, достраивает меченый нуклеотид на свободных 3′-OH концах ДНК. Таких концов становится много при фрагментации хроматина, поэтому ядра становятся заметны при флуоресценции либо после ферментной окраски.
Метод описали Я. Гавриели, Й. Шерман и С. Бен-Сассон в 1992 году для визуализации фрагментации ДНК в ткани. Важно сразу назвать предмет измерения точно: TUNEL выявляет концы разрывов ДНК, а не «апоптоз вообще». Это сильный маркер в правильном контексте, но не самостоятельный приговор клетке. Ниже соберём механизм, рабочий порядок реакции, контроли и логику интерпретации.
Что именно метит TUNEL
ДНК состоит из двух антипараллельных цепей с сахарофосфатным остовом; его базовое устройство полезно вспомнить в статье о строении нуклеотида. При разрыве цепи образуется свободный конец. TdT отличается от обычной ДНК-полимеразы тем, что может присоединять дезоксинуклеотиды к 3′-OH концу без матричной цепи. В реакционную смесь добавляют dUTP с флуорофором, биотином или другой меткой. Энзим встраивает его, а метку затем видят напрямую либо через связывающий реагент.
При классическом апоптозе эндонуклеазы разрезают хроматин на множество фрагментов, и концентрация доступных концов резко возрастает. Однако разрывы возникают не только здесь: ДНК может повреждаться при ишемии, некротическом лизисе, воздействии токсина или во время репарации. Поэтому корректная формулировка результата звучит так: «доля TUNEL-положительных ядер», а не «доля апоптотических клеток», пока вывод не подтверждён другими данными.
Принцип реакции по шагам
Подробности времени, буферов и температуры зависят от набора, ткани и способа фиксации: их берут из валидированного протокола конкретного реагента. Но логика эксперимента постоянна.
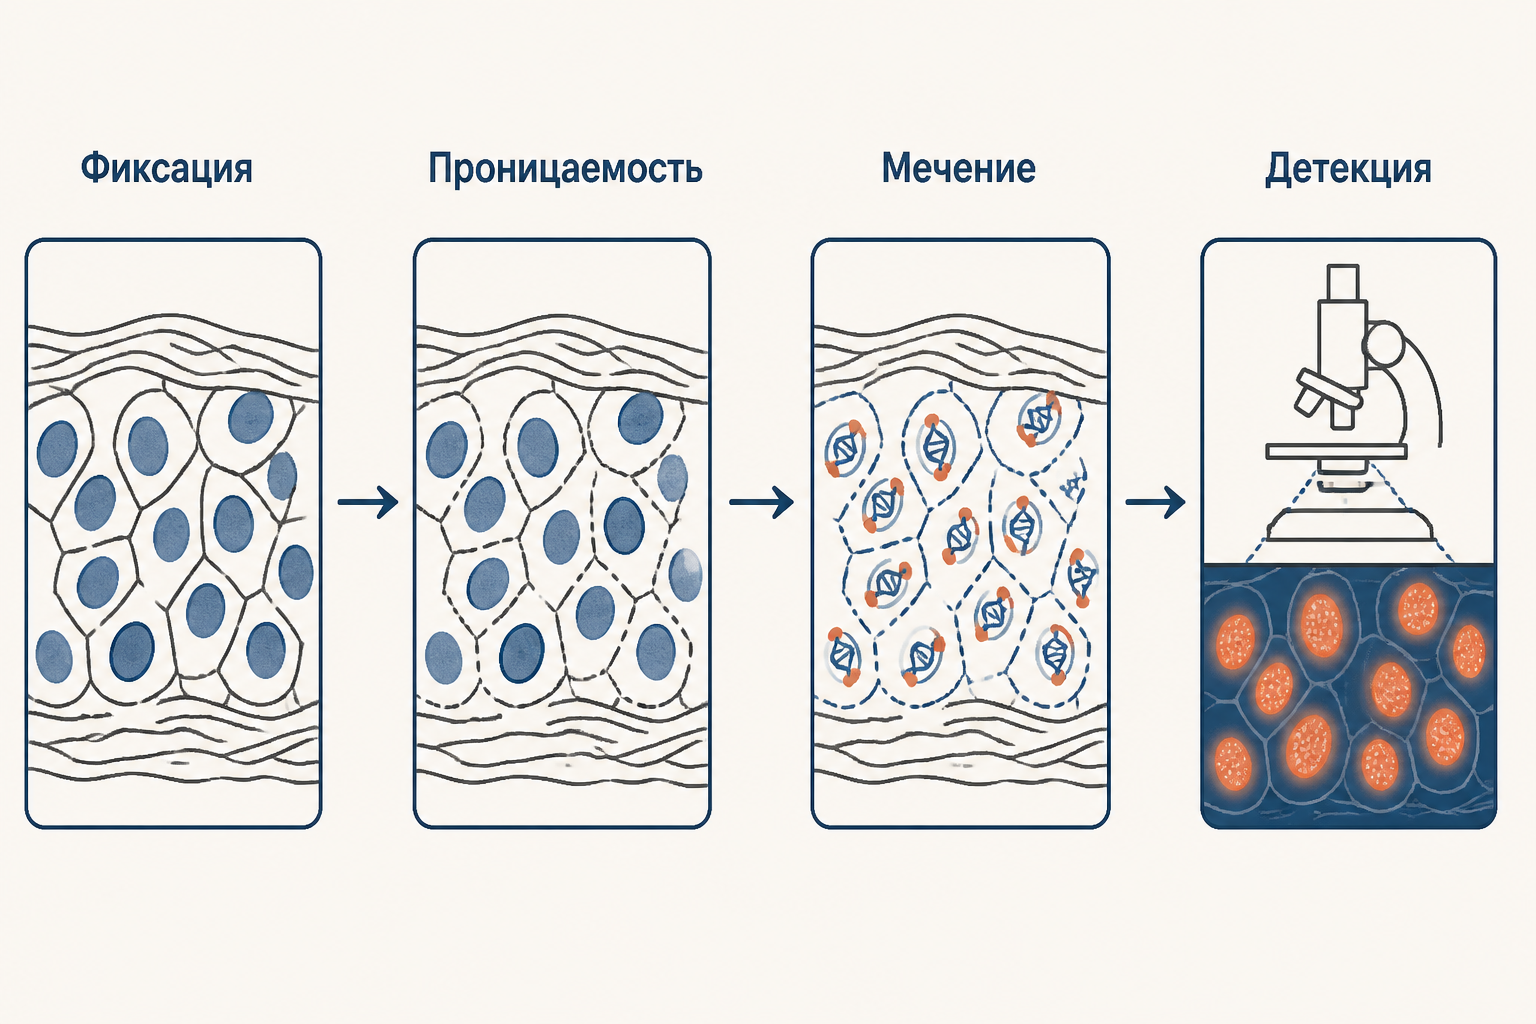
- Фиксация. Клетки или срез фиксируют, чтобы сохранить морфологию и остановить процессы. Слишком жёсткая фиксация способна закрыть доступ к ДНК, а плохая сохранность ткани повысит фон.
- Пермеабилизация. Детергент, протеиназа или иной щадящий приём делает мембраны и белковую сеть проницаемыми для TdT. Здесь легко ошибиться: чрезмерная обработка сама создаёт повреждения и ложный сигнал.
- Мечение. На образец наносят смесь TdT и меченого dUTP. Энзим добавляет нуклеотиды к доступным 3′-OH концам.
- Отмывка и детекция. Невстроенный реагент удаляют. Флуоресцентную метку считывают микроскопом или цитометром; биотиновую обычно раскрывают через связанный фермент и хромоген, например пероксидазный сигнал.
- Сопоставление с ядрами и морфологией. Контрастное ядерное окрашивание даёт знаменатель для подсчёта, а соседний срез с H&E или иммунометкой показывает, какие именно клетки дали сигнал.
Контроли: без них сигнал не отвечает на вопрос
Контроли проверяют, что система вообще способна показать разрывы и что окраска не появилась без ферментативного присоединения метки. Их готовят на материале и с обработкой, максимально близкими к основным образцам.
| Контроль | Что меняют | Ожидаемый результат | Что проверяет |
|---|---|---|---|
| Положительный | После пермеабилизации обрабатывают ДНКазой I | Ядра дают сильную метку | Реактивы, доступ TdT к ДНК и детекция работают |
| Отрицательный | Вносят ту же смесь, но без TdT | Сигнал минимален | Несвязавшаяся метка и неспецифическая детекция не создают фон |
| Биологический | Известная модель гибели или интактная ткань | Различие по заранее заданному критерию | Вся процедура различает ожидаемые состояния |
ДНКаза I намеренно режет ДНК и открывает множество 3′-OH концов: это технический, а не «апоптотический» положительный контроль. Если он отрицателен, заключение о настоящих образцах делать нельзя. Если ярко окрашен контроль без TdT, сначала ищут фон, промывают лучше или пересматривают способ детекции.
Почему TUNEL не равен апоптозу
У TUNEL высокая чувствительность к фрагментации, но происхождение разрывов он не распознаёт. При позднем некрозе мембрана разрушается, активируются или высвобождаются нуклеазы, и ядра тоже могут стать положительными. Репарация ДНК способна дать более слабый, но заметный сигнал. На результат влияют фиксация, пермеабилизация, срезание ткани и порог изображения.
Отсюда практическое правило: не публиковать одну фотографию с яркими ядрами как доказательство механизма гибели. Считать клетки в слепых полях, заранее задать порог, показать отрицательный и DNase I-контроль, сопоставить сигнал с морфологией. Связь повреждения ДНК с остановкой цикла и решением клетки о восстановлении разбирает статья о контрольных точках клеточного цикла. Если работа посвящена повреждениям, нужно развести их с репарацией: например, NER вырезает объёмные дефекты и затем достраивает участок ДНК.
TUNEL, аннексин V и каспазы: что выбрать
Методы смотрят на разные события, поэтому полезнее сочетать их, чем искать единственный «золотой» тест. Выбор зависит от материала и от того, нужен ли ранний живой анализ или локализация сигнала в архитектуре ткани.
| Метод | Что измеряет | Когда особенно полезен | Главное ограничение |
|---|---|---|---|
| TUNEL | Свободные 3′-OH концы разрывов ДНК | Срезы, локализация в ядре, поздние стадии | Положителен не только при апоптозе |
| Аннексин V | Выход фосфатидилсерина на внешнюю мембрану | Ранний анализ живой клеточной суспензии, проточная цитометрия | Фосфатидилсерин доступен и в иных состояниях; нужен кальций |
| Активная каспаза-3 | Протеолитическая активация эффекторной каспазы | Подтверждение каспазозависимого пути в ткани или культуре | Не охватывает каспазонезависимую гибель и зависит от времени отбора |
| Морфология ядра | Конденсация хроматина, фрагментация ядра, клеточные тельца | Проверка смысла любого маркера в срезе | Нужен опыт и возможна субъективность |
Аннексин V с красителем мембранной непроницаемости помогает разделить ранние и поздние состояния в культуре, но плохо заменяет гистологическую карту ткани. Активная каспаза-3 ближе к механизму, но её отсутствие не доказывает отсутствие любой формы программируемой гибели. Разумная связка для среза: TUNEL + ядерная морфология + клеточно-специфичный маркер либо активная каспаза-3. Для общей логики распознавания и удаления погибших клеток полезен разбор фагоцитоза.
Как интерпретировать результат в отчёте
Сначала определяют единицу анализа: ядро, клетка определённого типа или площадь ткани. Затем во всех группах одинаково получают изображение, не меняя экспозицию и порог после просмотра результата. Считают не только число позитивных ядер, но и общее число ядер и сообщают долю с разбросом между биологическими повторами. Колокализация с маркером типа клетки предотвращает ошибку, когда сигнал в инфильтрате принимают за гибель паренхимы.
Фраза «в группе воздействия выросла доля TUNEL-положительных ядер» описывает наблюдение. Фраза «воздействие усилило апоптоз» требует, помимо TUNEL, согласованной морфологии и независимого маркера пути. Лесенка ДНК при электрофорезе может дополнить картину фрагментации на уровне смеси молекул, но электрофорез ДНК не покажет, в каких клетках среза произошло событие.
Как спланировать убедительный эксперимент
Начинают не с выбора красителя, а с вопроса. Если важно узнать, какие клетки в сохранённой архитектуре ткани несут разрывы ДНК, TUNEL сочетают с маркером клеточного типа и микроскопией. Если нужно быстро оценить ранние изменения в суспензии живых клеток, удобнее запланировать аннексин V с красителем проницаемости мембраны и проточную цитометрию. Если гипотеза касается каспазозависимого механизма, добавляют антитело к расщеплённой каспазе-3 или измерение активности каспаз-3/7.
Сильный дизайн включает как минимум три независимых биологических повтора, одинаковую обработку всех групп и заранее выбранный способ подсчёта. Для каждого животного, донора или независимого посева сначала получают отдельную долю позитивных ядер, а уже потом сравнивают группы: множество полей одного среза не заменяет независимые повторы. Стоит заранее решить, кто и по каким признакам исключает некачественное поле, и сохранять исходные изображения. Тогда TUNEL не превращается в поиск наиболее яркой картинки, а остаётся измерением с понятным объектом, контролями и границами вывода.
Частые ошибки
- Называть все TUNEL-положительные ядра апоптотическими. Метод показывает разрывы ДНК; вывод о механизме требует подтверждения.
- Пропускать DNase I-контроль. Тогда неизвестно, была ли доступна ДНК и сработала ли сама система мечения.
- Считать яркость разных фотографий без единых настроек. Автокоррекция экспозиции способна создать видимость различий.
- Не отмечать тип клеток. Сигнал в лейкоцитах, строме и эпителии имеет разный биологический смысл.
FAQ
Можно ли делать TUNEL на парафиновых срезах?
Да, но после депарафинизации и подходящего раскрытия образца. Условия подбирают и валидируют на своём материале вместе с контролями.
Почему отрицательный контроль делают без TdT?
Он показывает, не создают ли фон сама меченая смесь, вторичный реагент или система визуализации. При отсутствии фермента метка не должна присоединяться к 3′-OH концам.
Достаточно ли TUNEL для статьи об апоптозе?
Нет. TUNEL убедительно описывает фрагментацию ДНК, но апоптоз обосновывают сочетанием независимых признаков и корректных контролей.
Коротко
TUNEL использует TdT, чтобы пометить свободные 3′-OH концы фрагментированной ДНК и увидеть их в отдельных клетках. Его сила - локализация в ткани; его граница - неспособность назвать причину разрывов. Положительный контроль с ДНКазой I, отрицательный без TdT, морфология и второй маркер превращают красивую окраску в проверяемый результат.
Источники
- Gavrieli Y., Sherman Y., Ben-Sasson S. A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation. Journal of Cell Biology, 1992. DOI: 10.1083/jcb.119.3.493.
- Promega. DeadEnd Fluorometric TUNEL System: Technical Bulletin TB235. Протокол положительного контроля с ДНКазой I.
- Galluzzi L. et al. Do TUNEL and Other Apoptosis Assays Detect Cell Death in Preclinical Studies? International Journal of Molecular Sciences, 2020. DOI: 10.3390/ijms21239096.
Читайте также
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
Базальное тельце: основание реснички и жгутика
Базальное тельце, или кинетосома: строение 9×3, превращение центриоли, запуск аксонемы, переходная зона, первичная ресничка, Hedgehog и цилиопатии кратко.
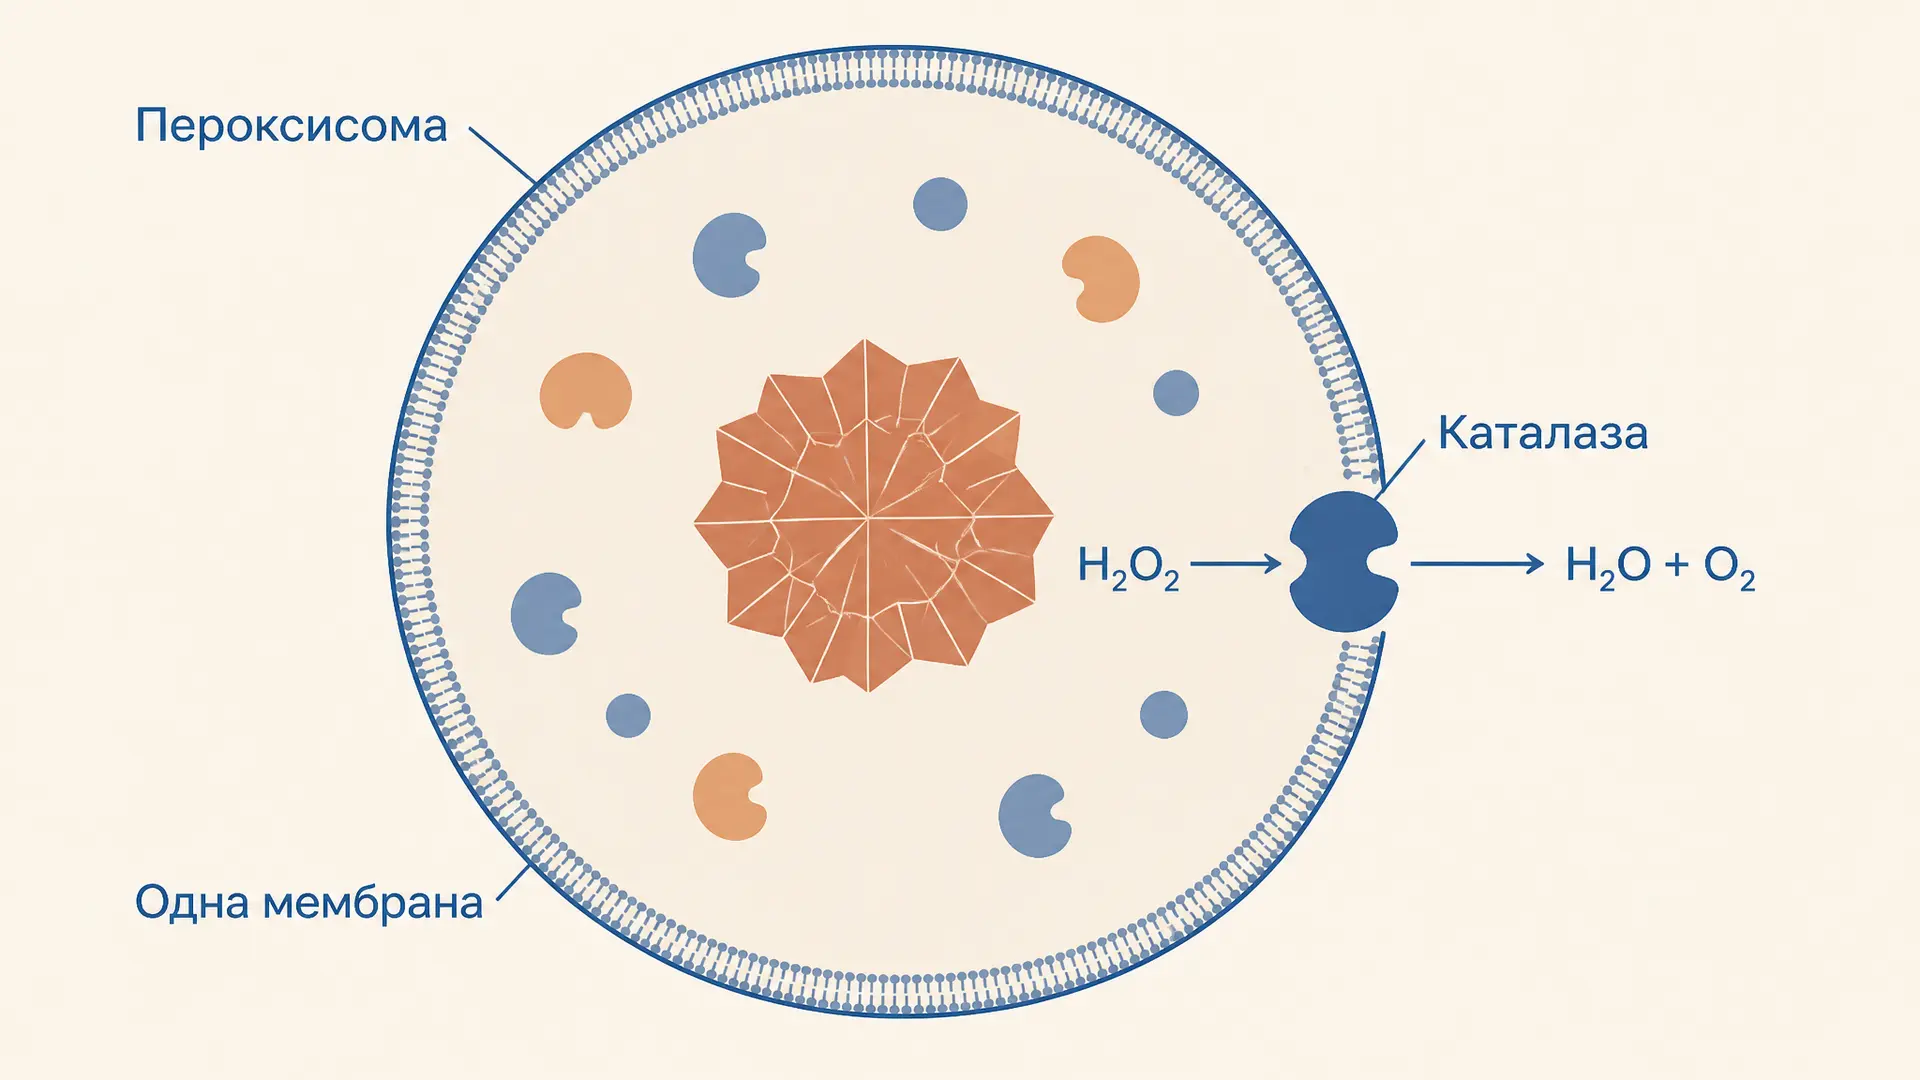
Пероксисомы: строение и функции
Пероксисомы: строение одномембранной органеллы, работа оксидаз и каталазы, окисление очень длинных жирных кислот, синтез плазмалогенов, импорт белков и болезни.
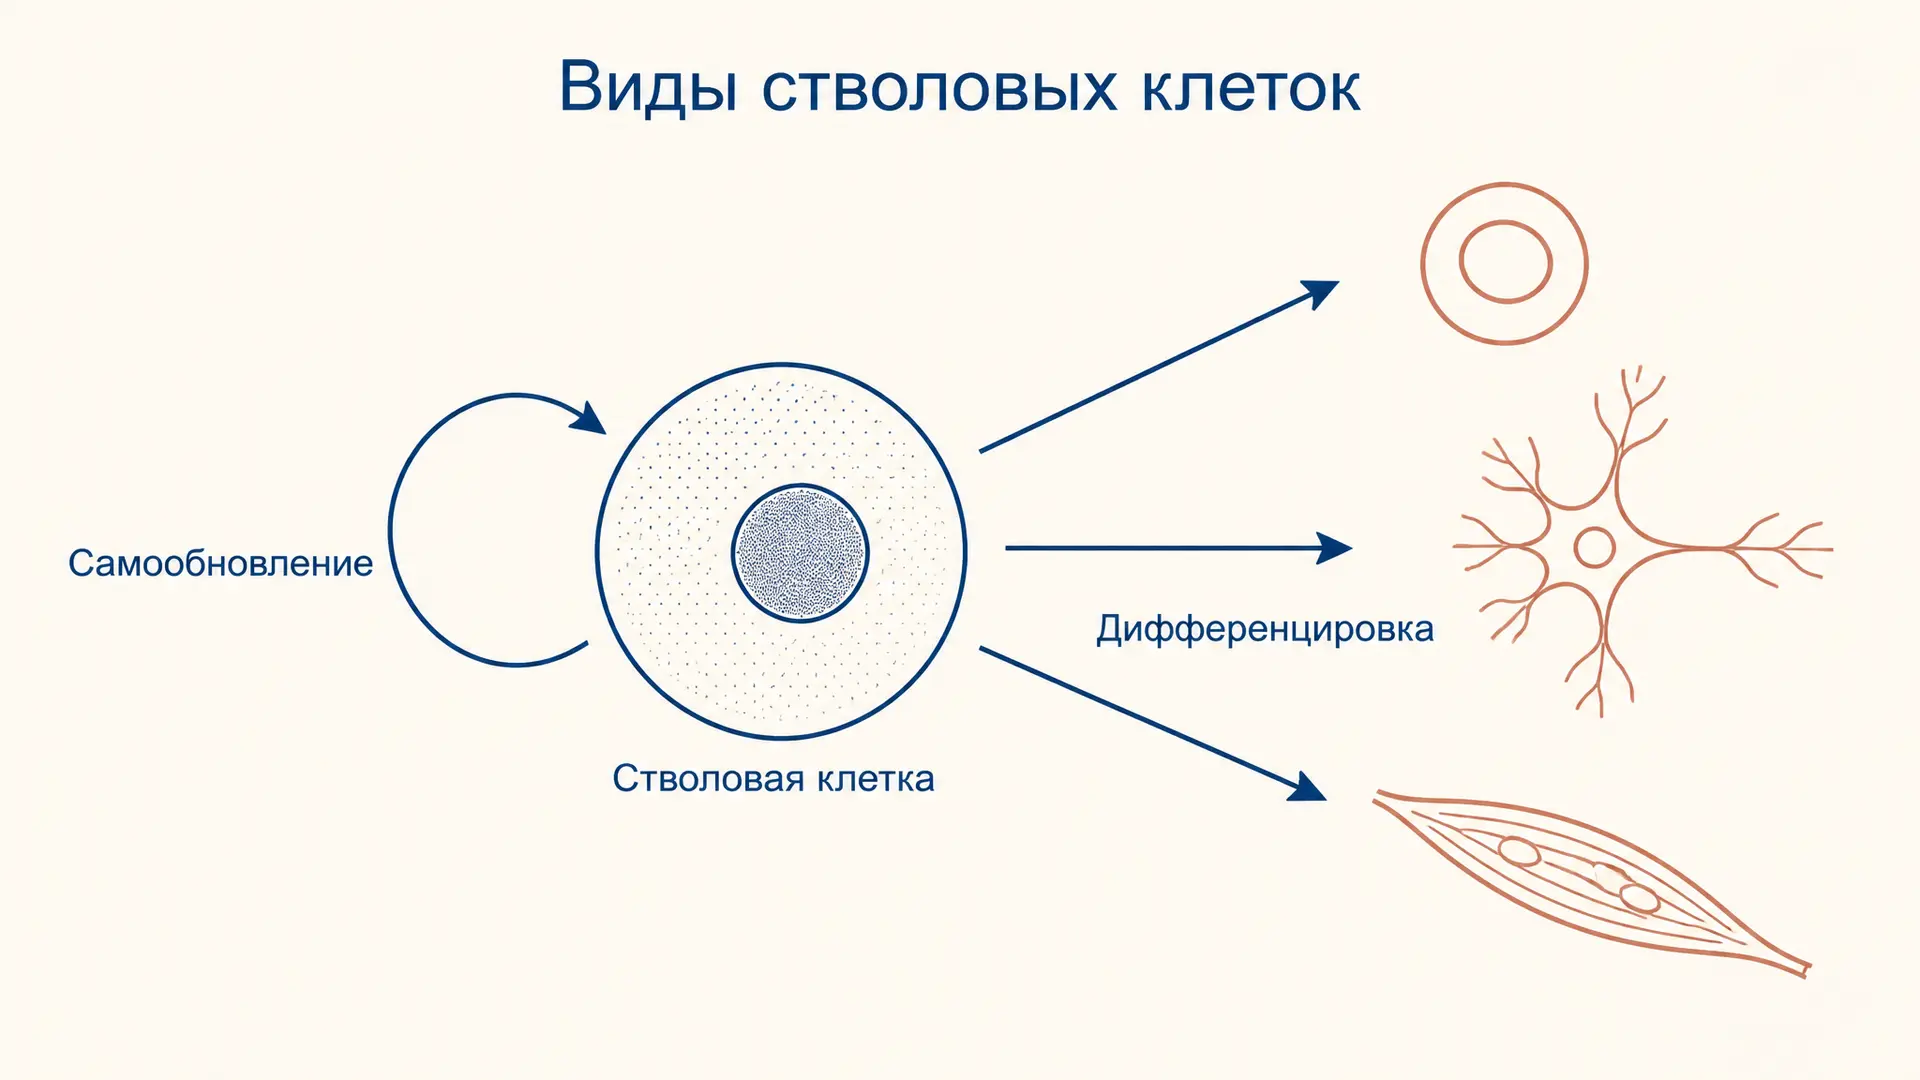
Стволовые клетки: виды по потентности и источнику
Виды стволовых клеток: классификация по потентности от тотипотентных до унипотентных и по источнику - эмбриональные, фетальные, взрослые и индуцированные иПСК, маркеры и применение.
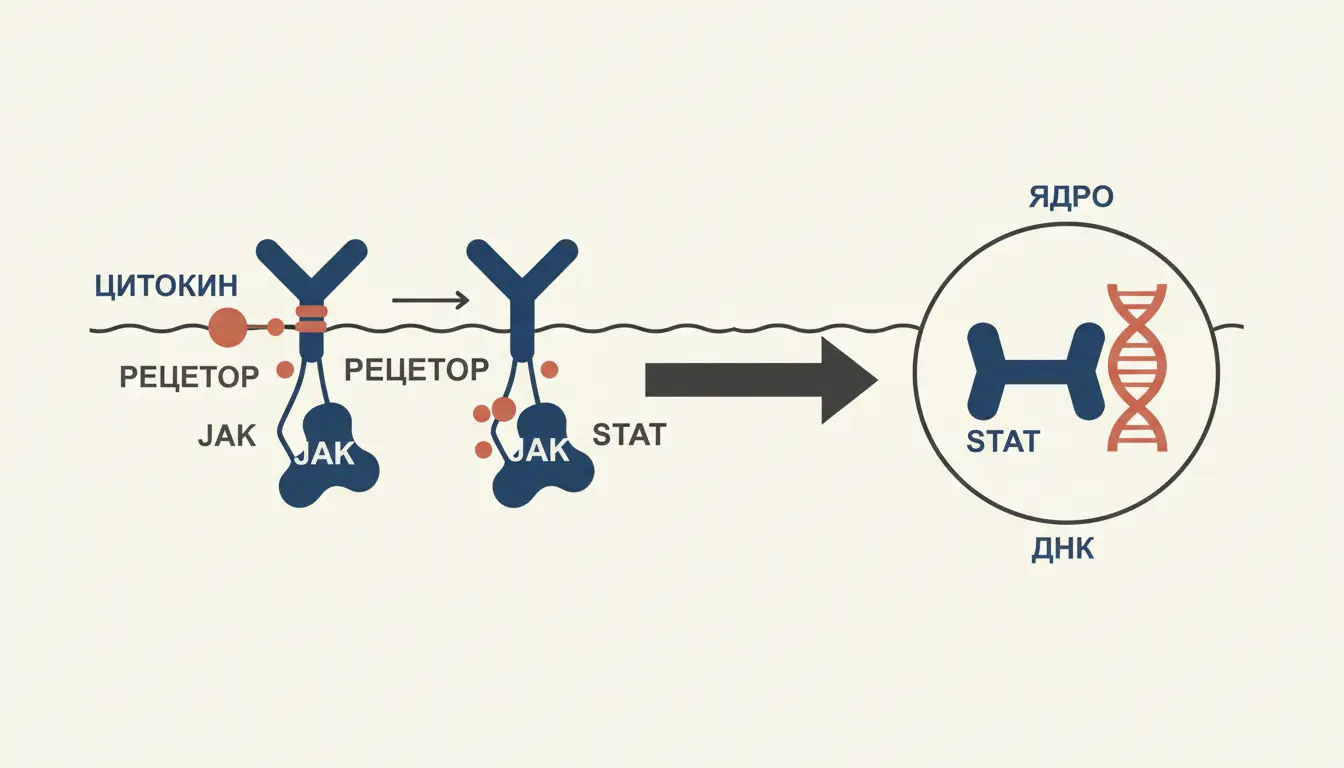
Путь JAK STAT: рецепторы, фосфорилирование и транскрипция
Путь JAK STAT - быстрый сигналинг от цитокинового рецептора в ядро. Разбираем янус-киназы, STAT-факторы, фосфорилирование тирозина, димеризацию, SOCS, болезни и ингибиторы JAK.
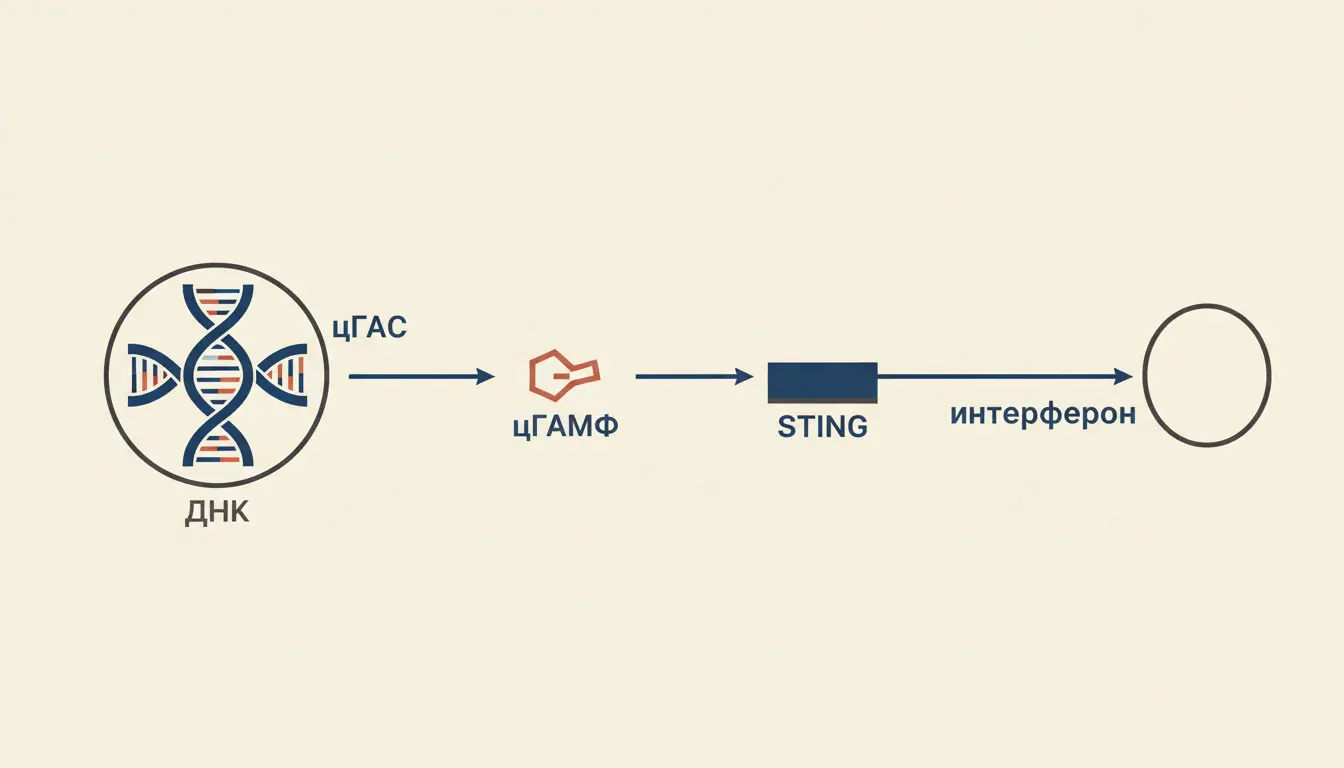
Путь cGAS STING: сенсор цитозольной ДНК и иммунитет
Путь cGAS STING: как клетка ловит чужую ДНК в цитозоле. Разбираем сенсор cGAS, синтез мессенджера cGAMP, активацию STING, запуск TBK1 и IRF3 и продукцию интерферонов I типа.