Последовательность Шайна-Дальгарно: посадка рибосомы
Бактериальная рибосома не умеет искать начало гена перебором: она садится сразу в нужную точку матрицы, потому что эта точка помечена коротким сигналом. Последовательность Шайна-Дальгарно и есть такая метка - участок из нескольких пуринов в лидерной области мРНК, за который малую субъединицу цепляет её собственная рибосомная РНК. Джон Шайн и Линн Дальгарно описали его в 1974 году, сравнив 3′-концы 16S рРНК и начала бактериальных матриц, и обнаружили прямую комплементарность. Сам ход синтеза белка от гена до готовой цепи разобран в статье про этапы биосинтеза белка, здесь же речь про одну деталь - про то, как рибосома вообще находит, откуда начинать. Разобрать конкретный лидер удобнее не на словах: вставьте свою последовательность в форму ниже и посмотрите, что с ней не так.
Что такое сайт связывания рибосомы у прокариот
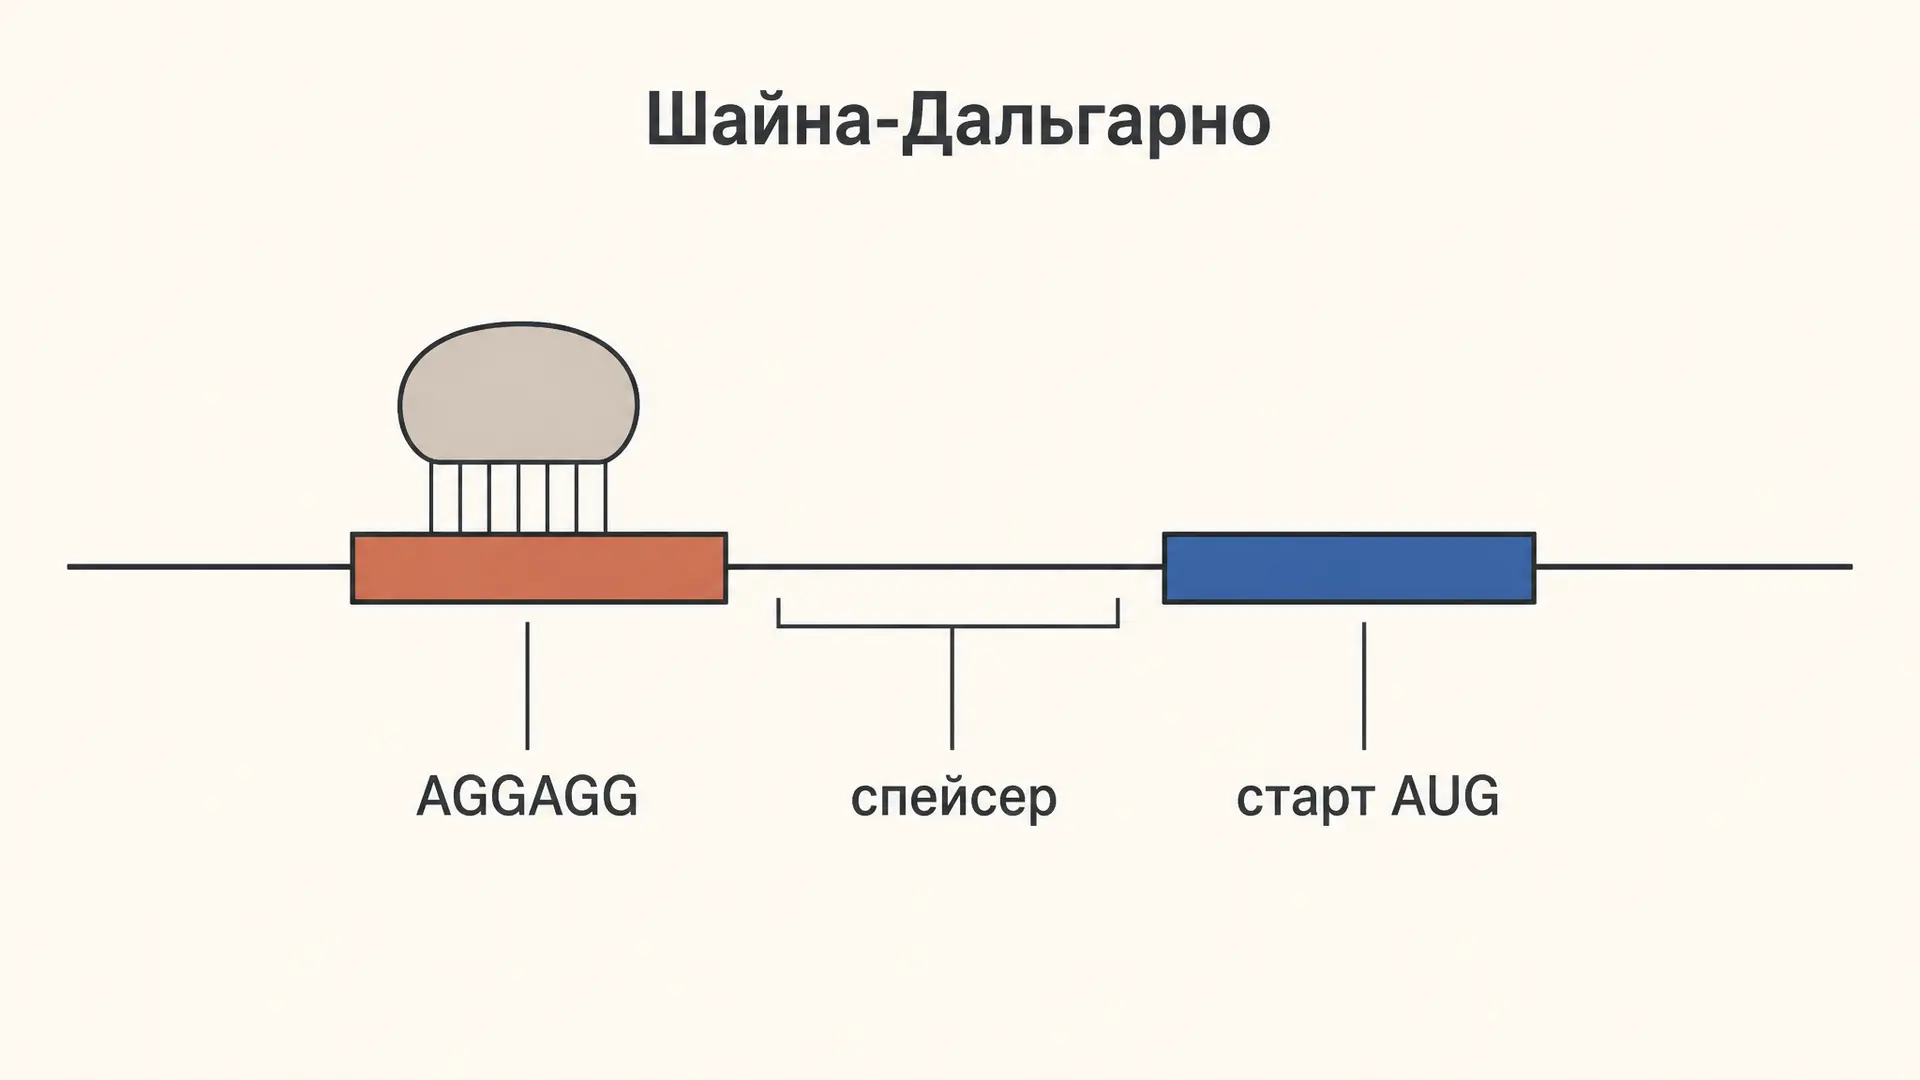
Сайт связывания рибосомы (RBS, ribosome binding site) - это не одна последовательность, а связка из трёх элементов, расположенных в лидерной, то есть нетранслируемой, части мРНК перед геном:
- участок Шайна-Дальгарно - короткий пуриновый мотив, чаще всего от 4 до 8 нуклеотидов;
- спейсер - промежуток между мотивом и стартовым кодоном;
- старт-кодон - обычно AUG, реже GUG или UUG.
Работает эта связка только целиком. Мотив без правильного расстояния до старта даёт посадку рибосомы не в том регистре, а идеальное расстояние без мотива не даёт посадки вовсе. Именно поэтому при анализе лидера считают не одно число, а два: силу спаривания и длину спейсера.
Консенсус AGGAGG и спаривание с 16S рРНК
Классический консенсус участка - AGGAGG, иногда его записывают шире как AGGAGGU. Смысл этих букв становится понятен, если посмотреть на 3′-конец 16S рРНК малой субъединицы: там находится анти-SD участок 3′-AUUCCUCCACUAG-5′, коровая часть которого - 3′-UCCUCC-5′. Приложите к нему комплементарную цепь по правилу A с U и G с C, соблюдая антипараллельность, и получится ровно 5′-AGGAGG-3′.
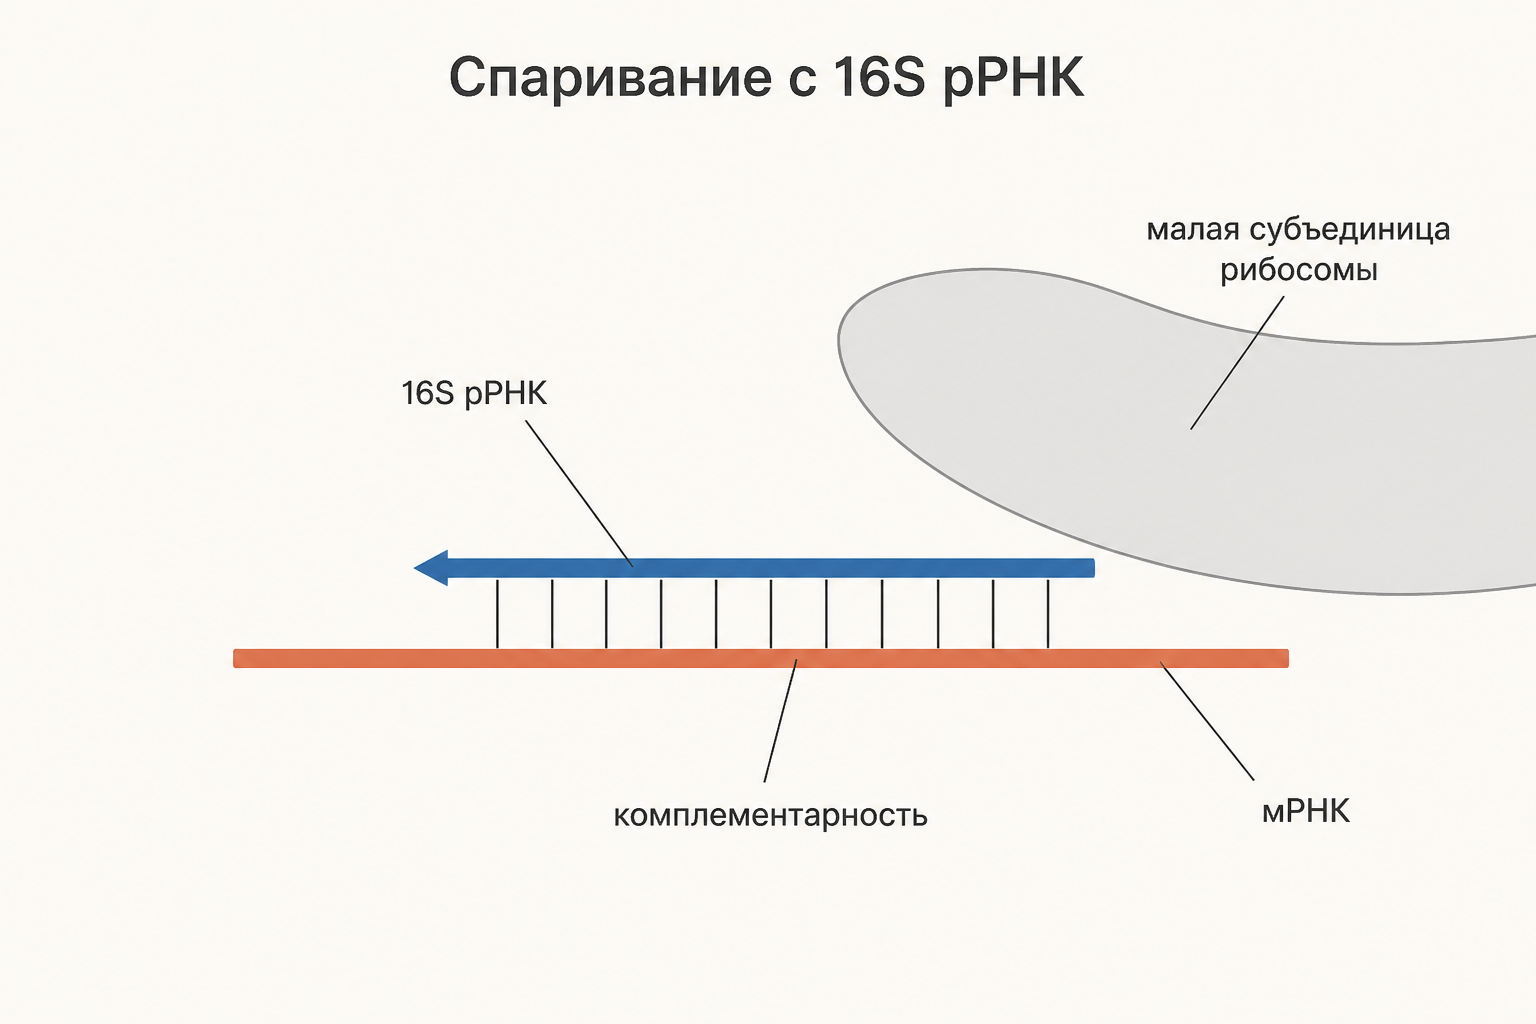
Дуплекс получается коротким, но прочным: он богат парами G-C с тремя водородными связями. Реальные бактериальные гены редко несут полный консенсус - типична частичная комплементарность в 4-5 пар, и этого достаточно, чтобы удержать 30S на матрице те доли секунды, за которые формилметиониновая тРНК успевает встать на старт-кодон. Само спаривание идёт в специальном канале между головкой и платформой малой субъединицы, устройство которой разобрано в статье про строение рибосомы 70S.
Важная деталь: спаривание бывает и слишком сильным. Полный консенсус из шести-семи пар удерживает рибосому так крепко, что она задерживается на старте и хуже переходит к элонгации. Природный отбор поэтому держит силу сайта в среднем диапазоне, а не на максимуме.
Спейсер: почему оптимум 5-9 нуклеотидов
Расстояние измеряют от последнего нуклеотида мотива до первой буквы старт-кодона. Геометрия здесь жёсткая: канал, где сидит дуплекс SD с анти-SD, и сайт P, куда должен попасть старт-кодон, разнесены в 30S на фиксированное расстояние. Поэтому у мРНК есть только узкое окно длины, при котором обе точки совпадают одновременно.
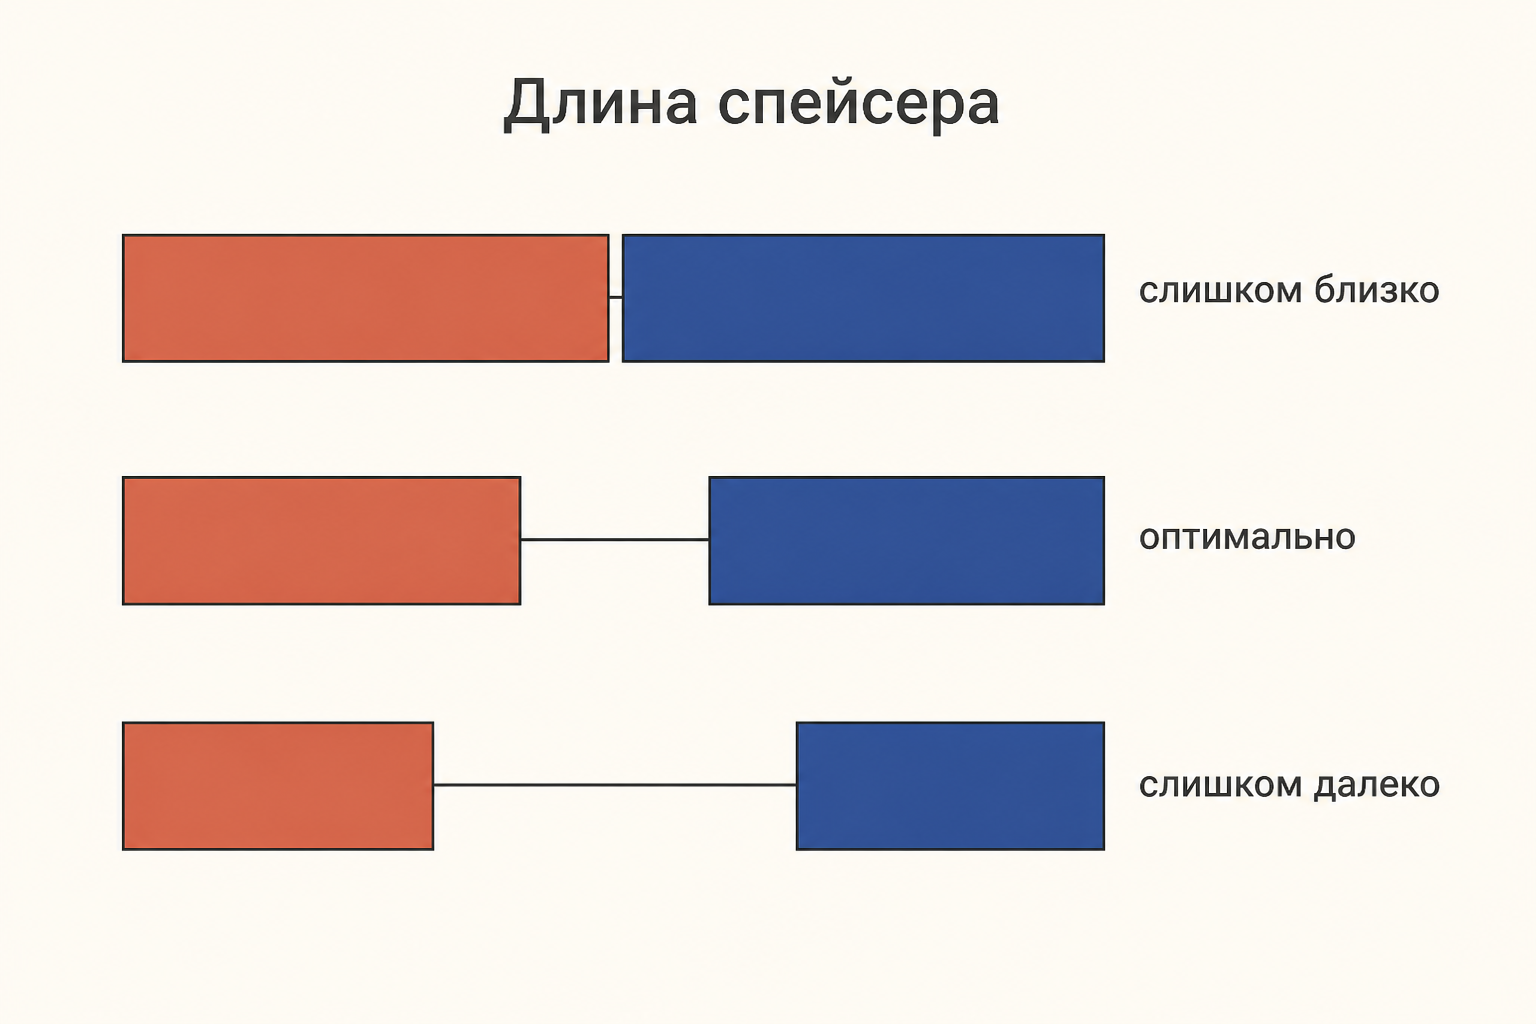
Статистика по геному кишечной палочки даёт распределение с максимумом около 7 нуклеотидов и рабочим диапазоном примерно от 5 до 9. Что происходит за его границами:
- спейсер короче 4 нуклеотидов - мРНК приходится натягивать, дуплекс и сайт P конкурируют за один и тот же отрезок цепи, инициация падает в разы;
- спейсер длиннее 12 нуклеотидов - рибосома садится, но старт-кодон оказывается за пределами сайта P; она либо соскальзывает, либо инициирует на первом попавшемся ниже AUG;
- нулевой спейсер - сайт практически не работает.
Состав спейсера тоже не безразличен: A-U-богатый промежуток без вторичной структуры лучше, чем G-C-богатый, который норовит свернуться в шпильку и спрятать сам мотив.
От чего ещё зависит сила сайта инициации
Эффективность инициации (translation initiation rate) неплохо описывается термодинамической моделью: скорость растёт экспоненциально с выигрышем свободной энергии при сборке комплекса.
Читается это так. Выигрыш дают спаривание мотива с 16S рРНК и удачный старт-кодон; штраф - отклонение спейсера от оптимума и вторичная структура лидера, которую надо расплести. Отсюда практические следствия:
- старт-кодон: AUG сильнее GUG, GUG сильнее UUG; замена AUG на GUG в среднем снижает выход в несколько раз;
- шпилька поверх мотива может обнулить даже идеальный AGGAGG - этот приём природа использует для регуляции, в том числе в системах с аттенуацией транскрипции;
- первые кодоны самого гена тоже влияют: сильная структура в районе от +1 до +15 мешает рибосоме стартовать, поэтому начало кодирующей части часто оптимизируют синонимичными заменами.
Полицистронные мРНК: свой сайт у каждого гена
У бактерий гены одного пути обычно собраны в оперон и переписываются в одну длинную мРНК. Рибосома не может дочитать первый цистрон и «перескочить» на второй по инерции: после терминации субъединицы расходятся. Поэтому перед каждым цистроном стоит собственный участок Шайна-Дальгарно, и трансляция каждого гена инициируется независимо, прямо изнутри матрицы. Это и есть внутренняя инициация - то, чего почти нет у эукариот.
Отсюда две наблюдаемые вещи. Во-первых, белки одного оперона нарабатываются в разных количествах, хотя мРНК одна: сила сайтов у них разная. Во-вторых, существует трансляционная сопряжённость - когда стоп-кодон одного гена перекрывается со стартом следующего (типичное сочетание AUGA), рибосома, закончившая первый цистрон, реинициирует на втором. Так регулируется, например, соотношение белков в лактозном опероне.
Посадка против сканирования: прокариоты и эукариоты
У эукариот механизм принципиально другой. Малая субъединица 40S садится не на внутренний мотив, а на 5′-кэп, после чего скользит по лидеру до первого подходящего AUG. Контекст старта задаёт не комплементарность рРНК, а последовательность Козак вокруг самого кодона.
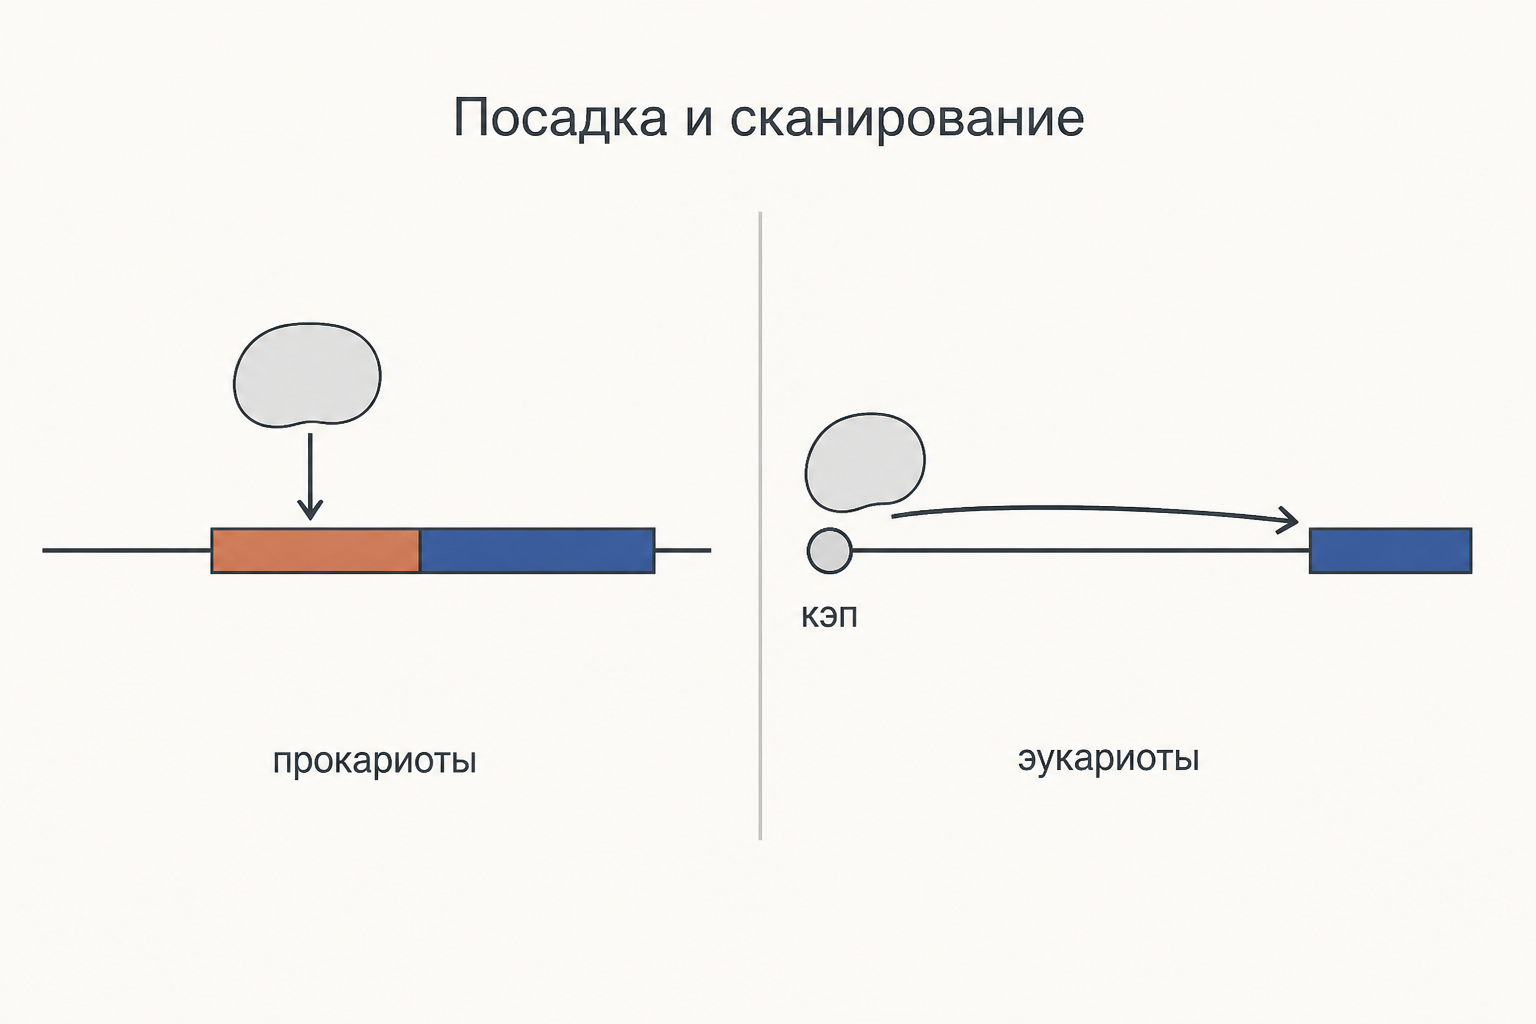
Практическое следствие этой разницы знает каждый, кто пробовал экспрессировать ген в чужой системе: эукариотическая мРНК без бактериального RBS в клетке кишечной палочки не транслируется вовсе, а бактериальная полицистронная матрица в эукариотической системе даёт только первый белок. Заметим и обратное исключение: у части бактерий и архей встречаются безлидерные мРНК, начинающиеся прямо с AUG, - они узнаются целой 70S без всякого участка Шайна-Дальгарно.
Шайна-Дальгарно в экспрессионных векторах
В генной инженерии этот сайт - рабочий регулятор выхода белка. В векторах серии pET перед полилинкером стоит RBS фага T7 (мотив AAGGAG и спейсер около 7 нуклеотидов), настроенный на максимальную инициацию; общее устройство таких конструкций разобрано в статье про плазмиду как вектор. Что с ним делают на практике:
- усиливают - приближают мотив к консенсусу и выводят спейсер в окно 5-9 нуклеотидов;
- ослабляют намеренно - если белок токсичен или сворачивается в тельца включения, сильный сайт вреден, и его специально портят;
- балансируют - в многоферментных путях каждому гену подбирают свой сайт, чтобы промежуточный метаболит не накапливался;
- считают заранее - калькуляторы RBS предсказывают выход по той же термодинамической модели и позволяют собрать библиотеку вариантов вместо перебора вслепую.
Что бывает при неудачном спейсере
Ошибка в этом коротком участке видна не как «чуть меньше белка», а как полный провал эксперимента. Типичные сценарии: гель показывает пустую дорожку, хотя плазмида на месте и мРНК нарабатывается; вместо целевого белка идёт укороченная форма, потому что рибосома стартовала на ближайшем AUG внутри рамки; продукт нарабатывается, но в неверной рамке считывания и потому лишён активности. Диагностика проста: сначала проверить лидер вручную, а не менять промотор или штамм-хозяин.
Частые ошибки
- Ищут SD у эукариот. У них кэп-зависимое сканирование и контекст Козак; участка Шайна-Дальгарно в ядерных мРНК нет.
- Меряют спейсер от начала мотива. Считать надо от последнего нуклеотида SD до первой буквы старт-кодона, иначе оценка сдвигается на длину мотива.
- Считают, что чем сильнее сайт, тем лучше. Полный консенсус нередко тормозит переход к элонгации, а токсичный белок с сильным RBS просто убивает культуру.
- Забывают про вторичную структуру. Идеальный AGGAGG внутри шпильки не работает: сначала лидер нужно расплести.
- Путают сайт с промотором. Промотор определяет, сколько будет мРНК, а участок Шайна-Дальгарно - сколько белка снимется с каждой копии матрицы.
FAQ
Обязателен ли участок Шайна-Дальгарно для трансляции у бактерий? Нет. Значительная доля генов кишечной палочки обходится слабым мотивом или вовсе безлидерной мРНК: тогда посадку обеспечивают белок S1, A-U-богатые «стендбай»-области и доступность старт-кодона. Но у высокоэкспрессируемых генов сайт почти всегда выражен чётко.
Какое расстояние до старт-кодона считать оптимальным? От 5 до 9 нуклеотидов, с пиком около 7. Диапазон 3-4 и 10-12 ещё работает с потерями, за его пределами инициация падает резко.
Чем анти-SD отличается от SD? Участок Шайна-Дальгарно (SD) лежит на мРНК, анти-SD - на 3′-конце 16S рРНК внутри рибосомы. Это две комплементарные цепи одного дуплекса: SD переменный и свой у каждого гена, анти-SD консервативный и один на все матрицы клетки.
Коротко
Последовательность Шайна-Дальгарно - пуриновый мотив с консенсусом AGGAGG в лидере бактериальной мРНК, комплементарный анти-SD участку на 3′-конце 16S рРНК. Спаривание сажает малую субъединицу в нужную точку матрицы, а спейсер длиной 5-9 нуклеотидов ставит старт-кодон точно в сайт P. Сила сайта складывается из числа комплементарных пар, длины и состава спейсера, типа старт-кодона и вторичной структуры лидера. У полицистронных мРНК свой сайт стоит перед каждым цистроном, что даёт внутреннюю инициацию, невозможную при эукариотическом сканировании от кэпа. В генной инженерии этот участок служит регулятором выхода белка: его усиливают, ослабляют или балансируют, а провал экспрессии часто объясняется именно неудачным спейсером.
Читайте также
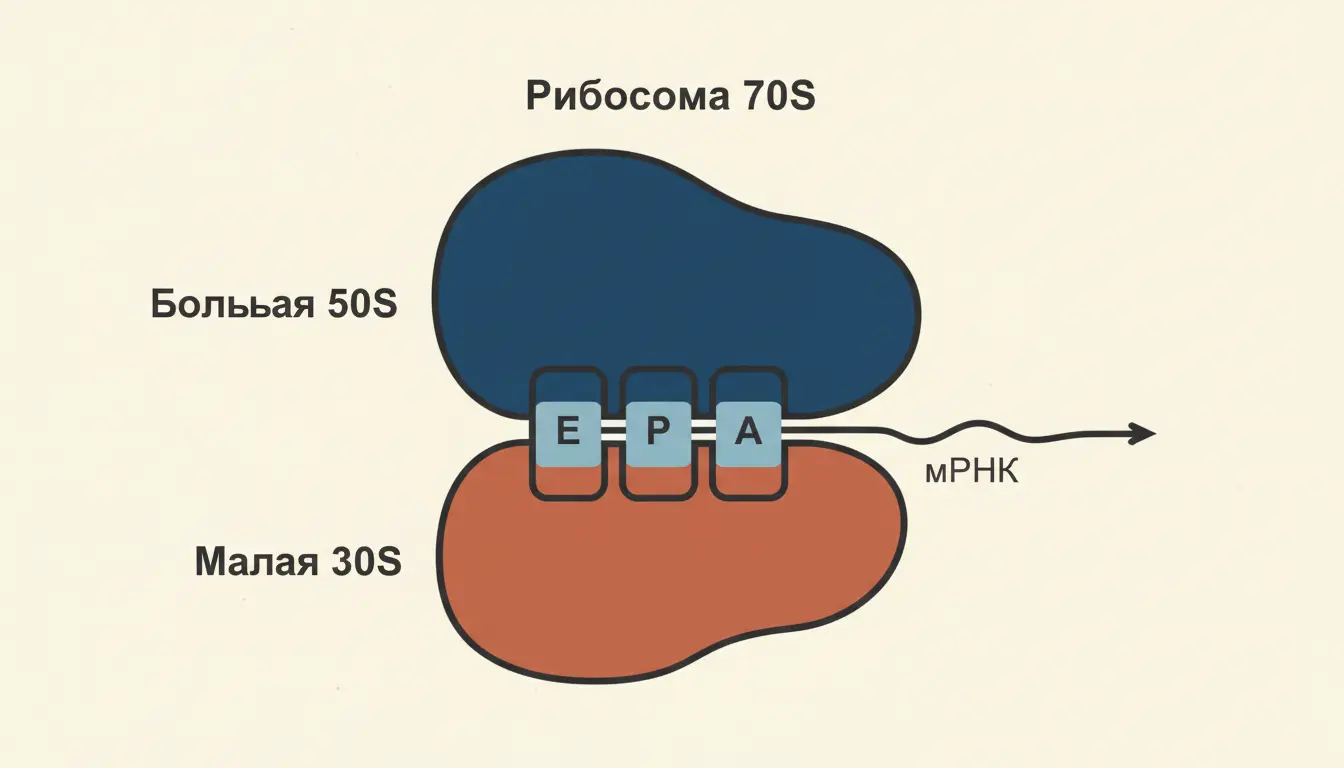
Рибосома прокариот 70S структура: разбор по субъединицам
Рибосома прокариот 70S структура: из чего состоят большая и малая субъединицы, какие рРНК и белки входят, где сайты A, P и E, как идёт трансляция и роль антибиотиков.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.
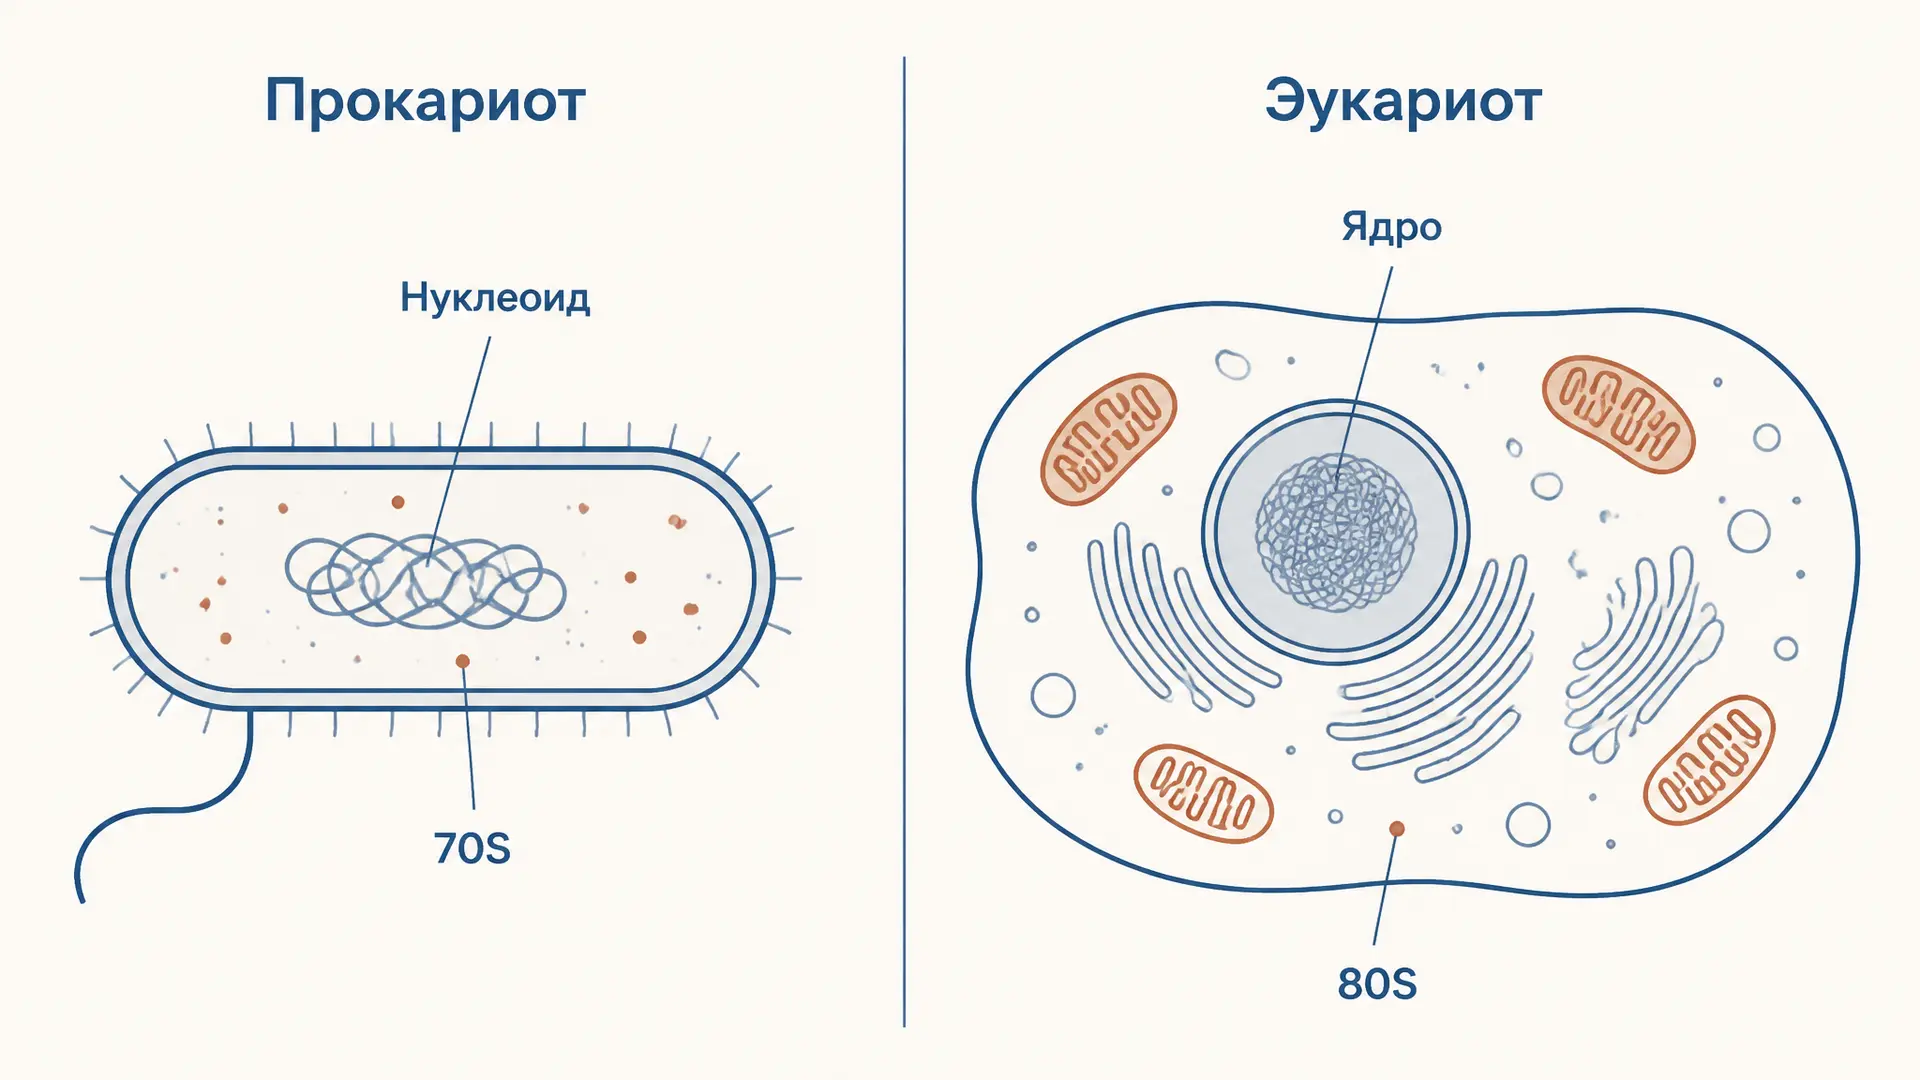
Сравнение прокариот и эукариот: главные отличия
Сравнение прокариот и эукариот по ядру и нуклеоиду, ДНК, рибосомам, органоидам, клеточной стенке, жгутикам, делению и экспрессии генов с ролью архей кратко.
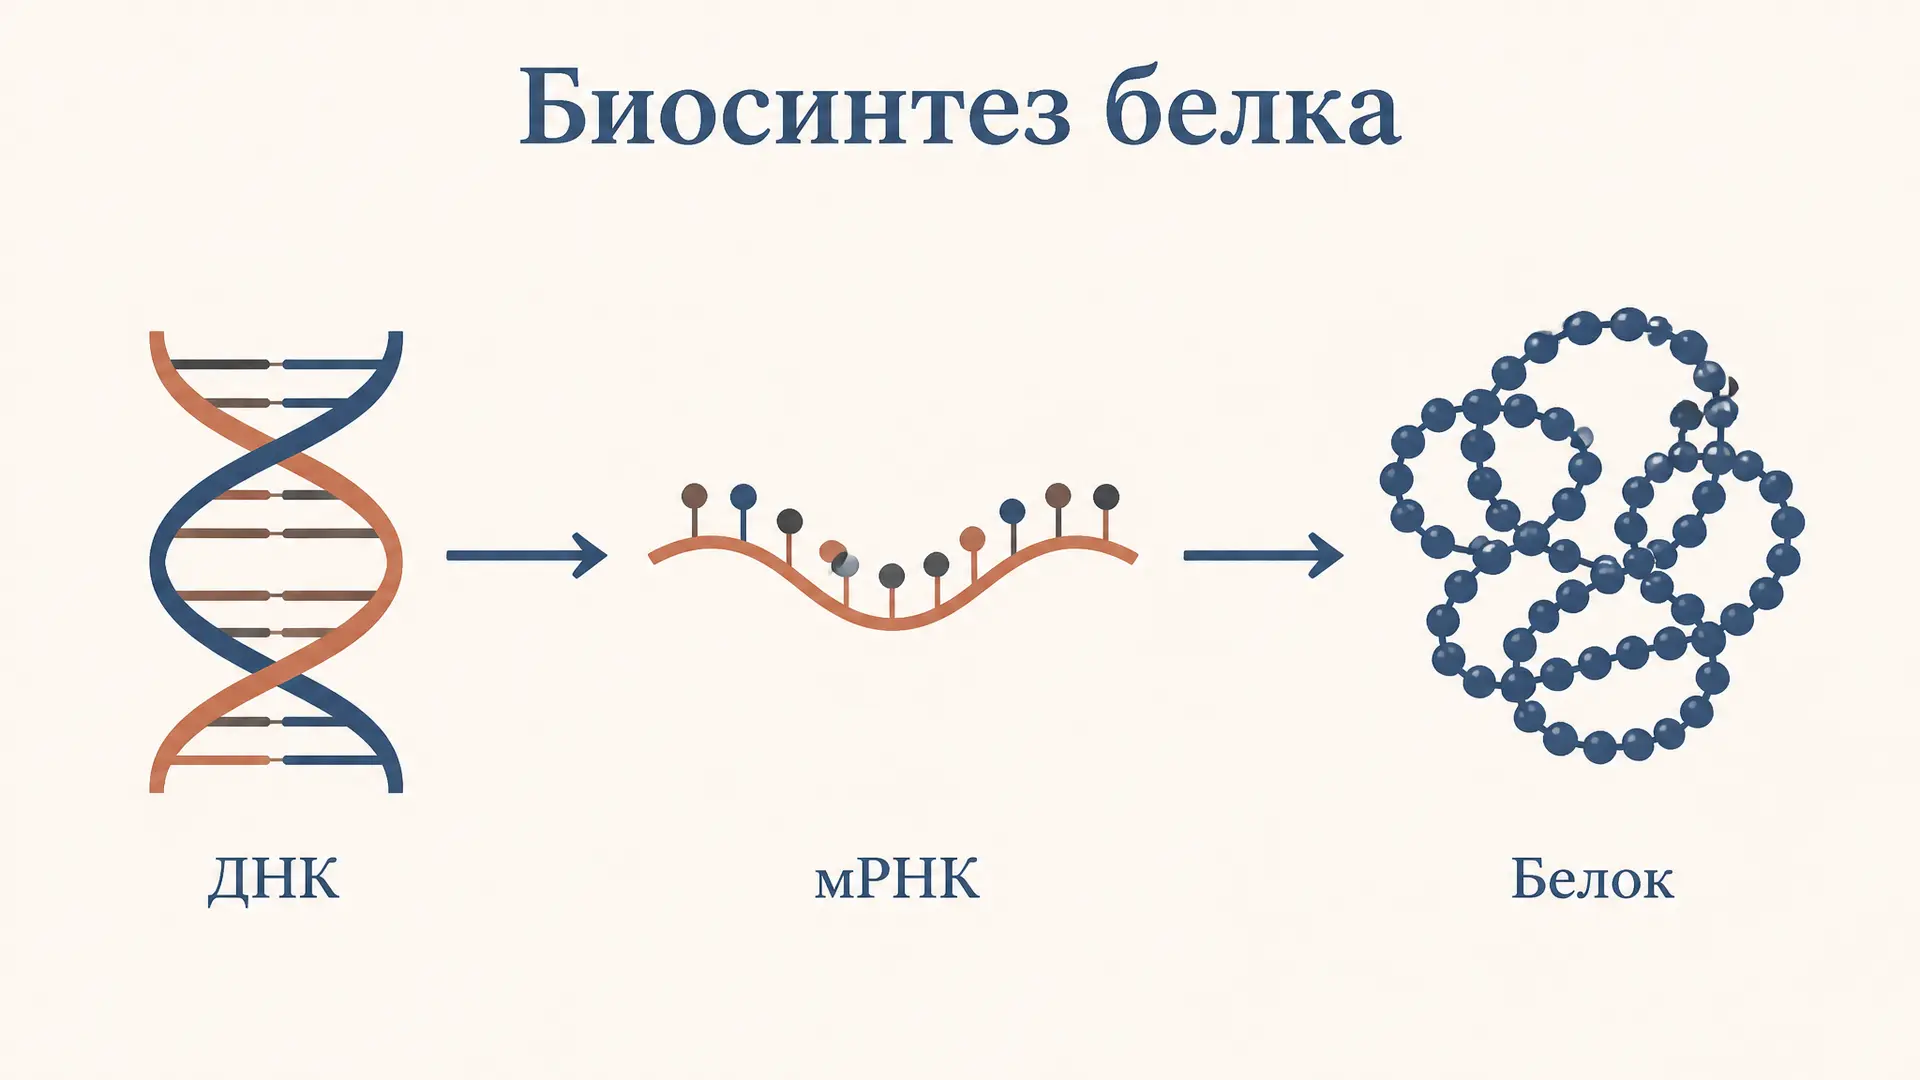
Биосинтез белка: этапы от гена до готовой цепи
Биосинтез белка по этапам: транскрипция, процессинг мРНК, трансляция на рибосоме и фолдинг. Что происходит на каждой стадии, чем отличаются прокариоты, как решать расчетные задачи.
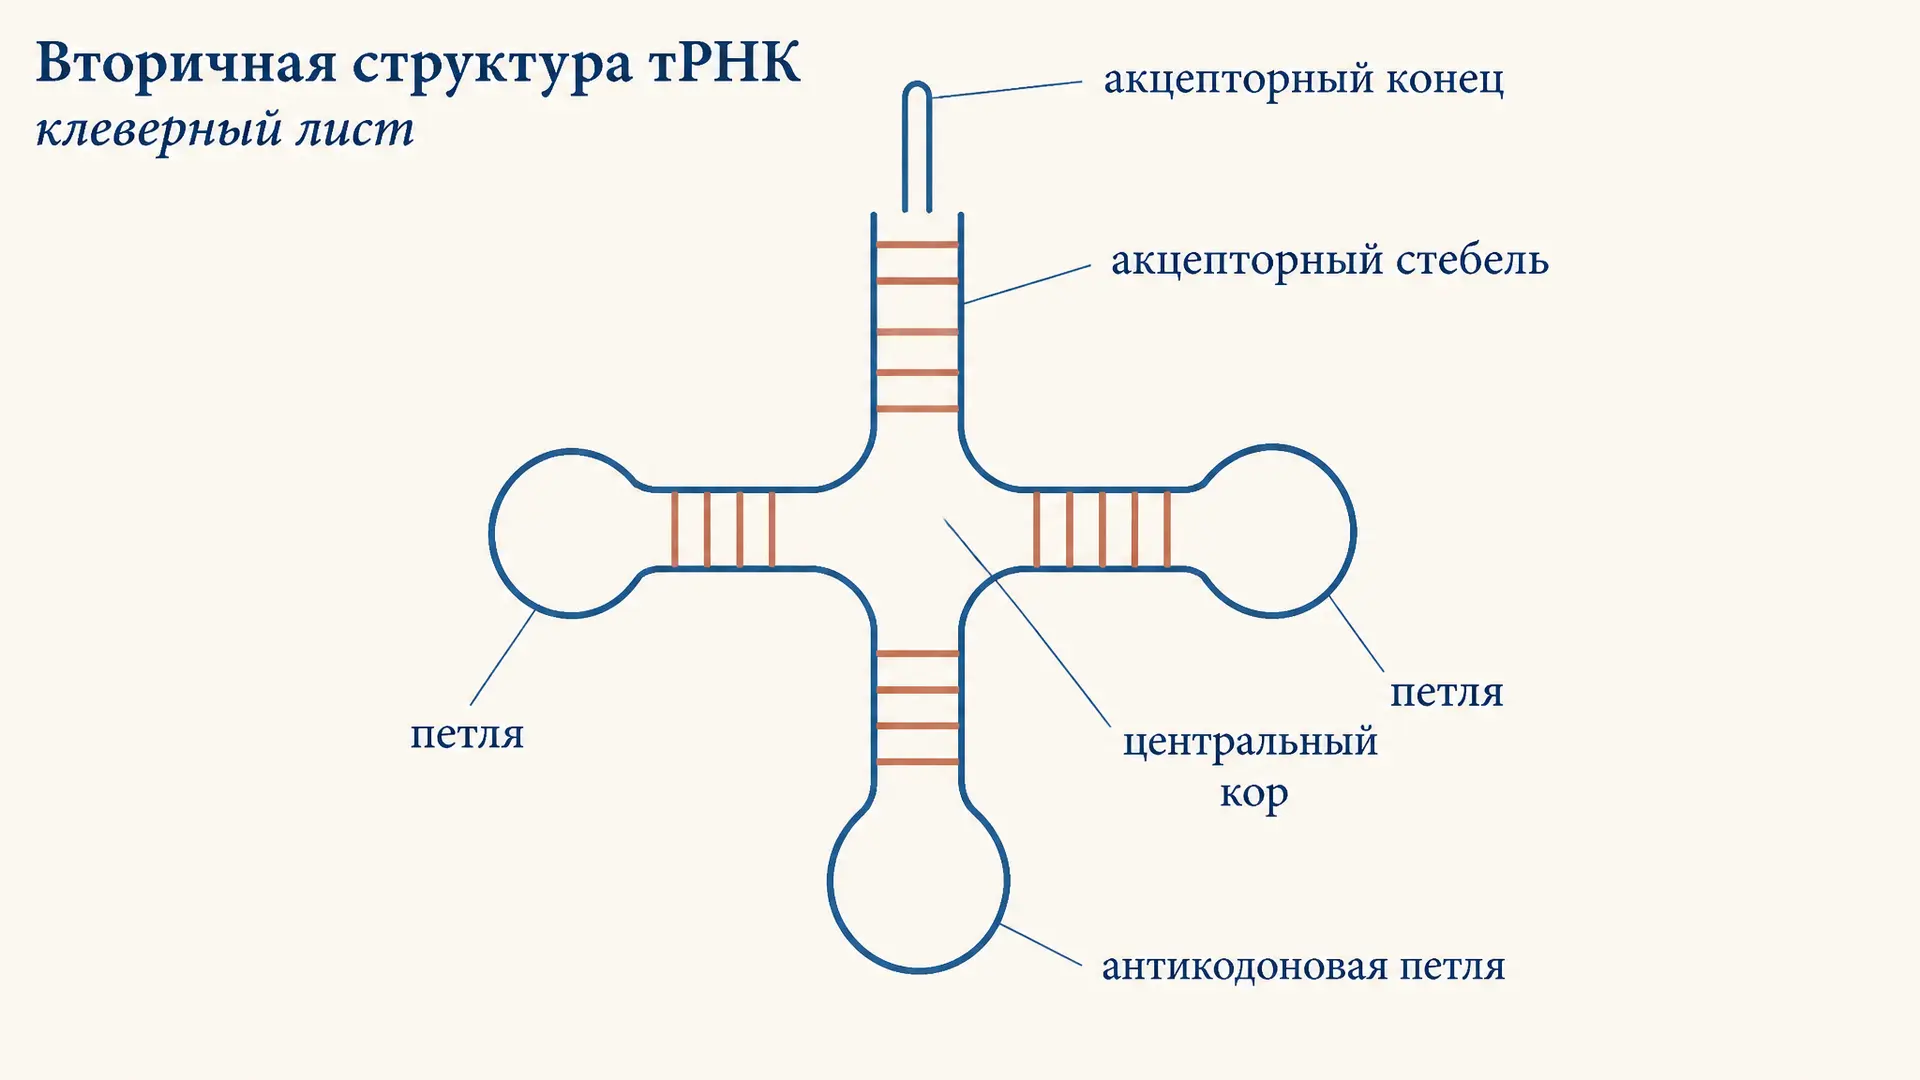
Вторичная структура тРНК: клеверный лист и его петли
Вторичная структура тРНК в виде клеверного листа: акцепторный стебель, D-петля, антикодоновая и T-петля, минорные основания и переход к третичной L-форме молекулы.
Бактериальная клетка: строение и роль пептидогликана
Разбираем строение бактериальной клетки: зачем нужен пептидогликан, как устроены мембрана, муреиновый каркас и капсула и чем грамположительные бактерии отличаются от грамотрицательных.