Окисление глицерина: путь в обмене и выход АТФ
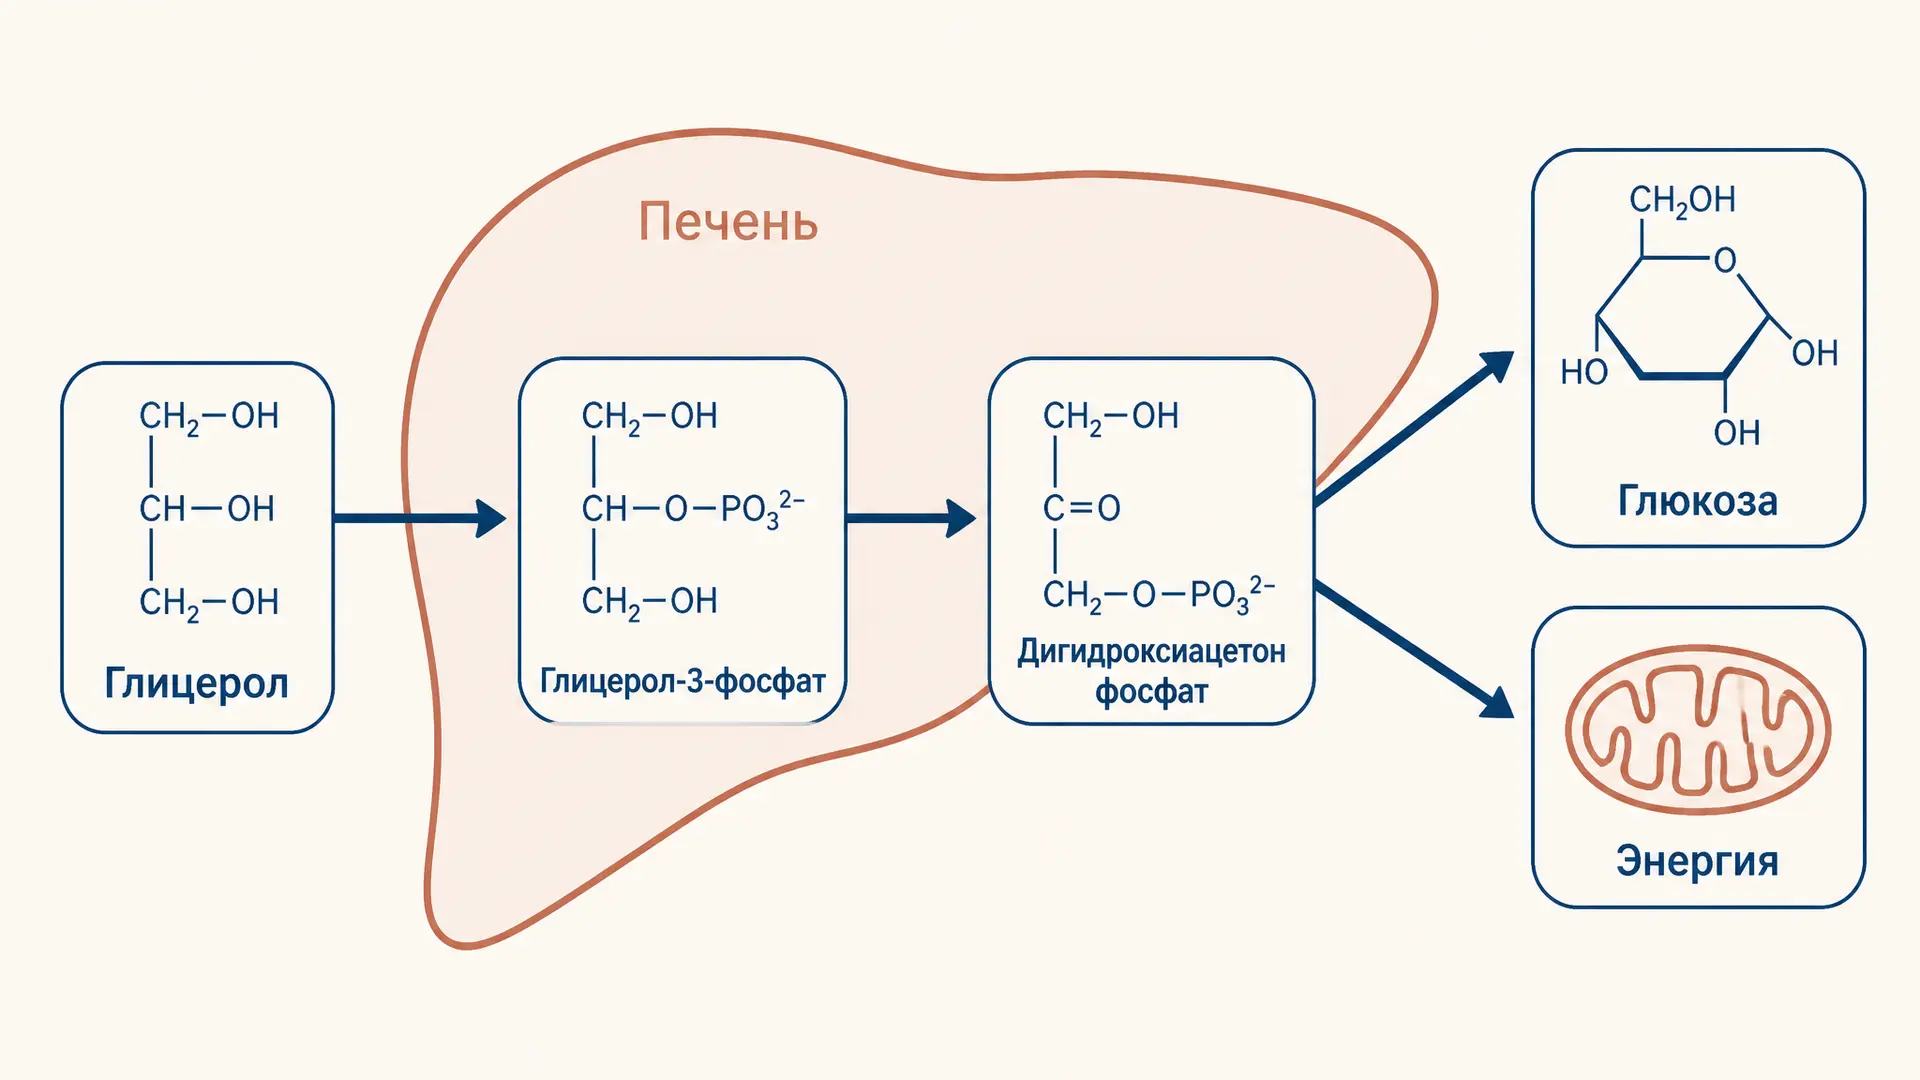
Глицерин, или глицерол, часто ошибочно считают лишь «остатком» распада жира. На деле это трёхуглеродный субстрат, который связывает липолиз с углеводным обменом. Когда триацилглицеролы жировой ткани гидролизуются, жирные кислоты и глицерол уходят в кровь разными путями. Жирные кислоты могут окисляться многими тканями, а свободный глицерол главным образом захватывают печень и почки. Там он превращается в триозофосфат и получает развилку: стать глюкозой при голодании или полностью окислиться с получением АТФ.
От липолиза к печени и почкам
При липолизе одна молекула триацилглицерола даёт глицерол и три жирные кислоты. В белой жировой ткани активность глицеролкиназы обычно очень мала, поэтому освободившийся глицерол плохо возвращается в запас прямо на месте и попадает в кровоток. Это не означает, что фермента в адипоцитах нет совсем: его активность зависит от ткани и состояния организма, но для учебной схемы верно правило «жировая ткань отдаёт, печень и почки утилизируют».
Во время голодания этот транспорт особенно важен. Печень получает глицерол вместе с сигналом о снижении доступности глюкозы и направляет его углеродный скелет к глюконеогенезу. Так липолиз даёт не только топливо в виде жирных кислот, но и один из предшественников для поддержания глюкозы крови. Сам путь образования глюкозы из триоз подробно разобран в статье о реакциях и обходных путях глюконеогенеза.
Первая реакция: глицеролкиназа расходует АТФ
В цитозоле глицеролкиназа переносит фосфат с АТФ на глицерол:
Это активация субстрата ценой одной молекулы АТФ. Фосфат удерживает молекулу в клетке и делает её подходящей для следующей окислительной реакции. Здесь важно не перепутать глицерол-3-фосфат с глицеральдегид-3-фосфатом: оба соединения содержат по три атома углерода и фосфат, но это разные метаболиты с разным положением карбонильной группы.
Глицерол-3-фосфат превращается в ДАФ
Цитозольная NAD-зависимая глицерол-3-фосфатдегидрогеназа окисляет глицерол-3-фосфат до дигидроксиацетонфосфата, ДАФ, и восстанавливает NAD⁺:
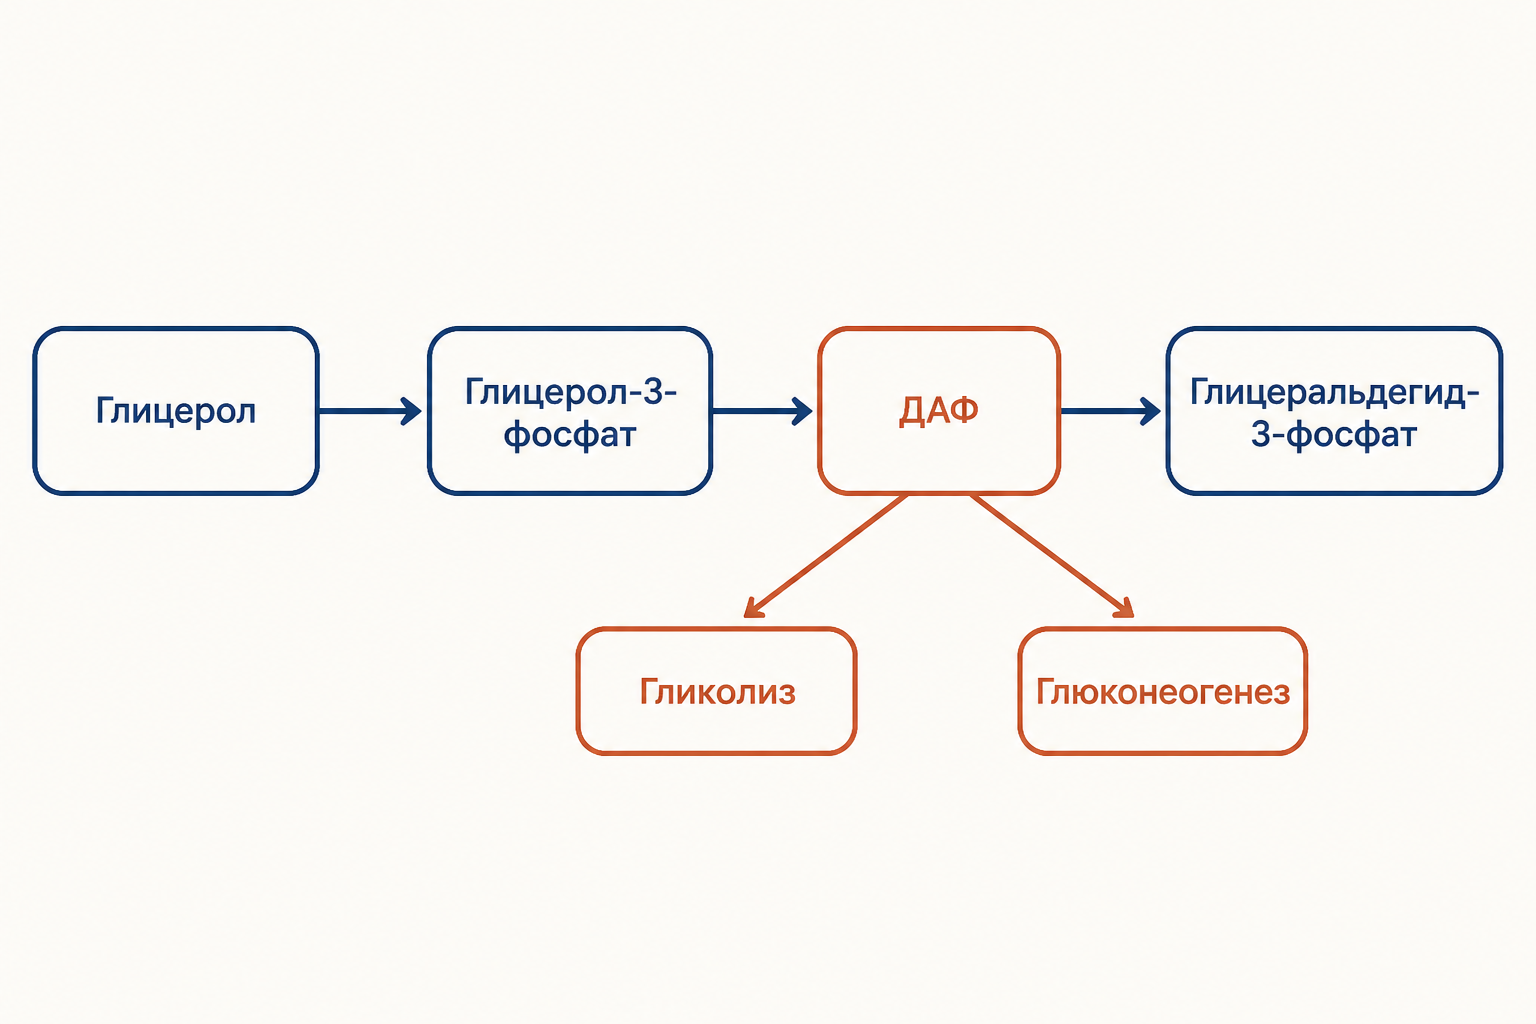
ДАФ уже принадлежит общему пулу триозофосфатов. Триозофосфатизомераза быстро переводит его в глицеральдегид-3-фосфат. На этом месте путь глицерола вливается в гликолиз: этапы, реакции и ферменты, но входит не с глюкозы, а сразу во вторую половину пути. Поэтому не нужно вычитать две АТФ, которые тратятся при фосфорилировании глюкозы: для глицерола уже отдельно учтена одна АТФ глицеролкиназы.
Две судьбы ДАФ: гликолиз или глюконеогенез
Если клетке нужна энергия, глицеральдегид-3-фосфат проходит оставшиеся реакции гликолиза до пирувата. На этом отрезке образуются один цитозольный NADH и две АТФ за счёт субстратного фосфорилирования. Пируват в аэробных условиях превращается в ацетил-КоА, затем окисляется в цикле Кребса. Электроны NADH и FADH2 отдаются дыхательной цепи; её комплексы и протонный градиент объяснены в материале о дыхательной цепи митохондрий.
При дефиците глюкозы направление меняется. ДАФ и глицеральдегид-3-фосфат могут конденсироваться до фруктозо-1,6-бисфосфата и подниматься по глюконеогенезу. Поскольку глицерол вступает ниже пирувата, ему не требуется обходить пируваткиназу и пируваткарбоксилазу: его путь к глюкозе начинается на уровне триоз. Две молекулы глицерола дают две триозы, то есть углеродный каркас одной гексозы.
Полное окисление: что именно считать
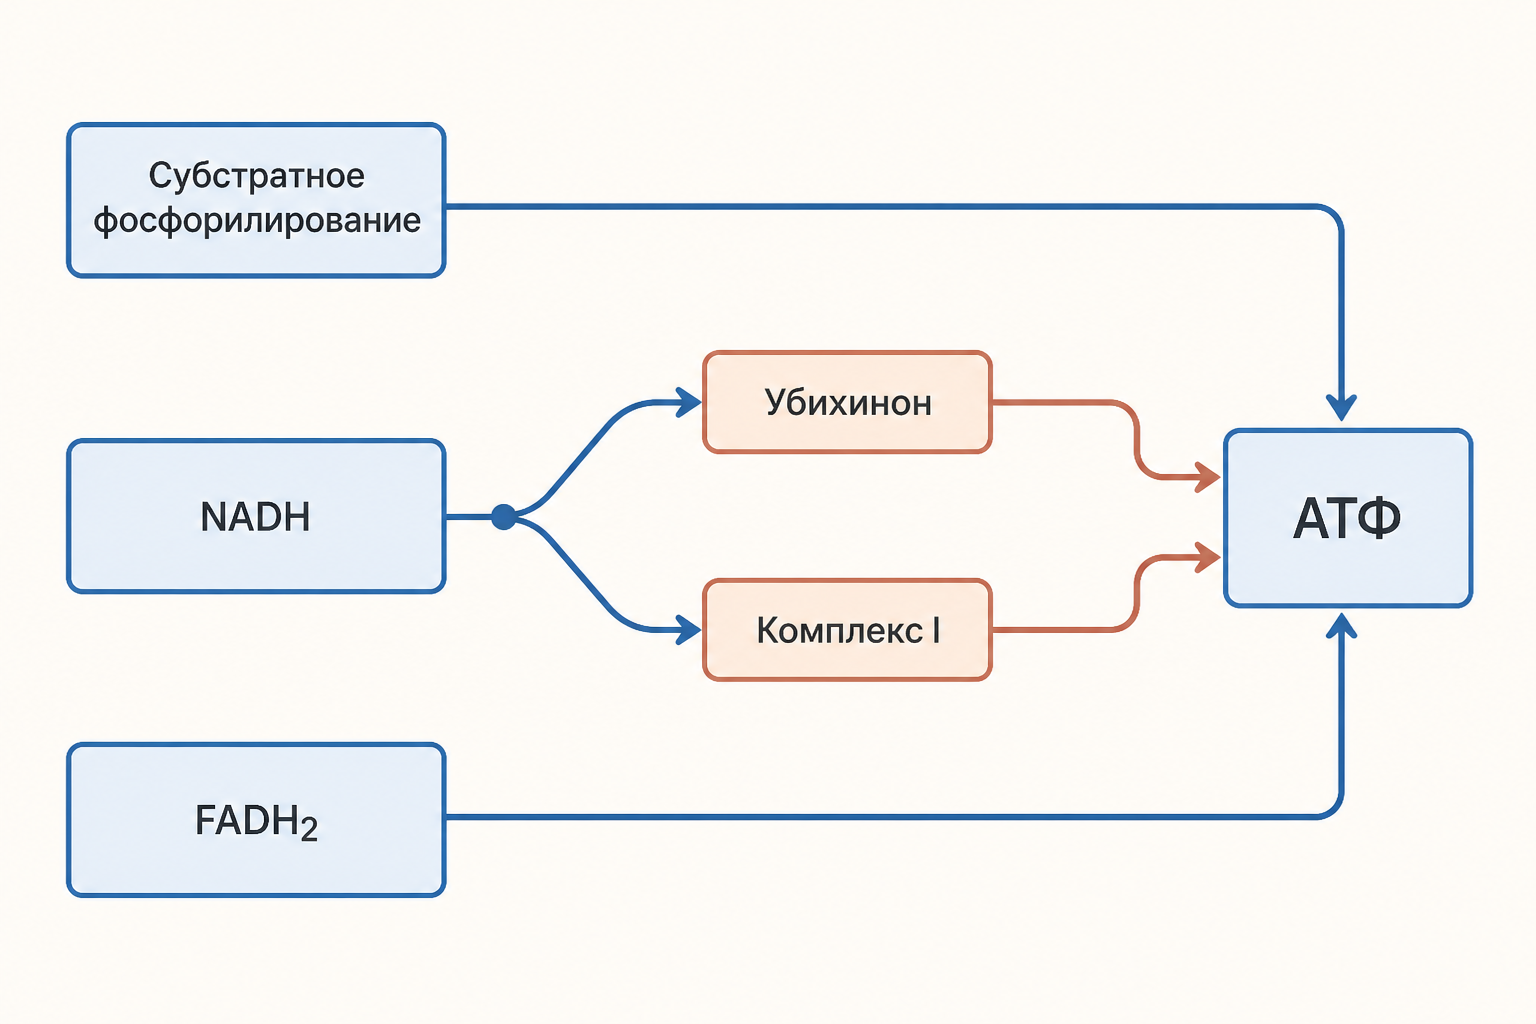
Для одной молекулы глицерола баланс до дыхательной цепи такой: глицеролкиназа тратит 1 АТФ; нижняя половина гликолиза даёт 2 АТФ; цикл Кребса добавляет 1 GTP. Чистое субстратное фосфорилирование поэтому равно АТФ. Восстановленные коферменты складываются иначе: реакция глицерол-3-фосфатдегидрогеназы и участок гликолиза дают два цитозольных NADH; пируватдегидрогеназная реакция вместе с циклом Кребса дают четыре митохондриальных NADH и один FADH2.
Цитозольный NADH не проходит через внутреннюю мембрану сам. Его электроны передают челноки. Глицерофосфатный челнок вводит их на уровне убихинона, поэтому каждый из двух NADH считают как FADH2. Малат-аспартатный челнок сохраняет цену NADH; сравнение обоих систем есть в статье о челночных механизмах.
При современных коэффициентах Р/О для NADH и для FADH2 расчёт через глицерофосфатный челнок выглядит так:
Через малат-аспартатный челнок последние два слагаемых равны , и итог составляет АТФ. В старой системе коэффициентов и получают соответственно и АТФ. Поэтому фраза «глицерол даёт 18–20 АТФ» неполна: сначала надо назвать использованный челнок и систему коэффициентов.
Почему это имеет значение при голодании
В голодании глицерол не обязан становиться АТФ именно в печени. Печень получает энергию для глюконеогенеза в значительной степени от окисления жирных кислот, а глицерольный углерод может быть сохранён для синтеза и экспорта глюкозы. В другой ситуации, когда триозофосфат направлен в гликолиз, тот же субстрат даст пируват и восстановительные эквиваленты. Направление определяют энергетическое состояние клетки, доступность кислорода и гормональная регуляция, а не только само наличие глицерола.
Полезно различать свободный глицерол и глицерол-3-фосфат. Второй также служит основой для синтеза глицеролипидов и участвует в челночном переносе электронов; это не доказательство, что весь свободный глицерол немедленно окисляется. Метаболическая развилка остаётся реальной: молекула может пойти к глюкозе, липидам или энергии.
Как проверить расчёт по шагам
В задачах удобнее не запоминать один итог, а сначала составить инвентаризацию переносчиков. После фосфорилирования глицерол уже не является «особым» субстратом: его три углерода проходят обычный путь триозы. Первая дегидрогеназная реакция даёт NADH в цитозоле. Затем ДАФ изомеризуется в глицеральдегид-3-фосфат, и на реакции глицеральдегид-3-фосфатдегидрогеназы появляется второй цитозольный NADH. Обе молекулы нельзя без оговорки умножать на : их цену определяет челнок.
Дальше один пируват даёт один NADH в пируватдегидрогеназной реакции. Один ацетил-КоА за оборот цикла Кребса добавляет три NADH, один FADH2 и один GTP. Значит, в матриксе получили четыре NADH, один FADH2 и один GTP. Нижняя часть гликолиза образовала две АТФ, однако на старте была израсходована одна АТФ. Поэтому субстратный остаток равен не трём, а двум высокоэнергетическим фосфатам: .
Итоговую формулу лучше записывать в общем виде. Пусть - коэффициент Р/О для NADH, - для FADH2, а - цена одного цитозольного NADH после челнока. Тогда
Для малат-аспартатного челнока , а для глицерофосфатного . Эта запись сразу показывает источник разницы: меняются ровно два переносчика, возникшие до входа углерода в митохондрию. Не следует прибавлять к расчёту отдельную «энергию окисления глицерол-3-фосфата» поверх NADH: она уже учтена как первый цитозольный NADH в балансе.
Что в этой схеме не следует обобщать
Учебный расчёт предполагает полное аэробное окисление одного свободного глицерола и фиксированные коэффициенты Р/О. В живой клетке поток может оборваться раньше: ДАФ используется для синтеза глюкозы или глицеролипидов, а восстановительные эквиваленты нужны для других реакций. Кроме того, соотношение работы челноков отличается между тканями. Поэтому 16,5, 18,5, 20 и 22 - не показания универсального измерителя, а результаты прозрачной стехиометрической модели с явно названными допущениями.
Ещё одна граница модели связана с термином «глицерин». В биохимии обычно говорят «глицерол», а глицерином называют то же вещество в бытовом и фармацевтическом контексте. Речь в этой статье не об окислении спирта реагентами в колбе, а о ферментативном метаболизме свободного глицерола в клетке. Это различие помогает не переносить на физиологический путь химические реакции органического синтеза.
Частые ошибки
- Вычитают две АТФ «как в гликолизе глюкозы». Для глицерола расходует АТФ только глицеролкиназа, а вход происходит на уровне триозофосфата.
- Считают оба цитозольных NADH как митохондриальные без указания челнока. Это завышает итог при глицерофосфатном маршруте на 2 АТФ по современным коэффициентам.
- Называют ДАФ конечным продуктом окисления. ДАФ - узел обмена; для продолжения гликолиза он изомеризуется в глицеральдегид-3-фосфат.
- Утверждают, что жировая ткань совсем не имеет глицеролкиназы. Корректнее говорить о низкой активности по сравнению с печенью и почками в обычной учебной модели.
FAQ
Где происходит окисление глицерина?
Первые две реакции идут в цитозоле клеток, активно утилизирующих глицерол, прежде всего печени и почек. Полное аэробное окисление продолжается в митохондриях после превращения пирувата в ацетил-КоА.
Сколько АТФ образуется из одного глицерола?
При современных коэффициентах это 16,5 АТФ через глицерофосфатный челнок или 18,5 через малат-аспартатный. В классическом подсчёте соответствующие числа 20 и 22.
Почему глицерол помогает поддерживать глюкозу при голодании?
После превращения в ДАФ он входит в глюконеогенез как триозофосфат. Две молекулы глицерола дают шесть атомов углерода, достаточных для углеродного скелета одной молекулы глюкозы.
Коротко
Окисление глицерина начинается с затратной реакции глицеролкиназы, затем глицерол-3-фосфат превращается в ДАФ и входит в обмен триоз. В голодании этот путь поставляет субстрат для глюконеогенеза, а при полном аэробном окислении даёт 16,5–18,5 АТФ по современным коэффициентам: точное число определяется способом переноса двух цитозольных NADH в митохондрию.
Читайте также
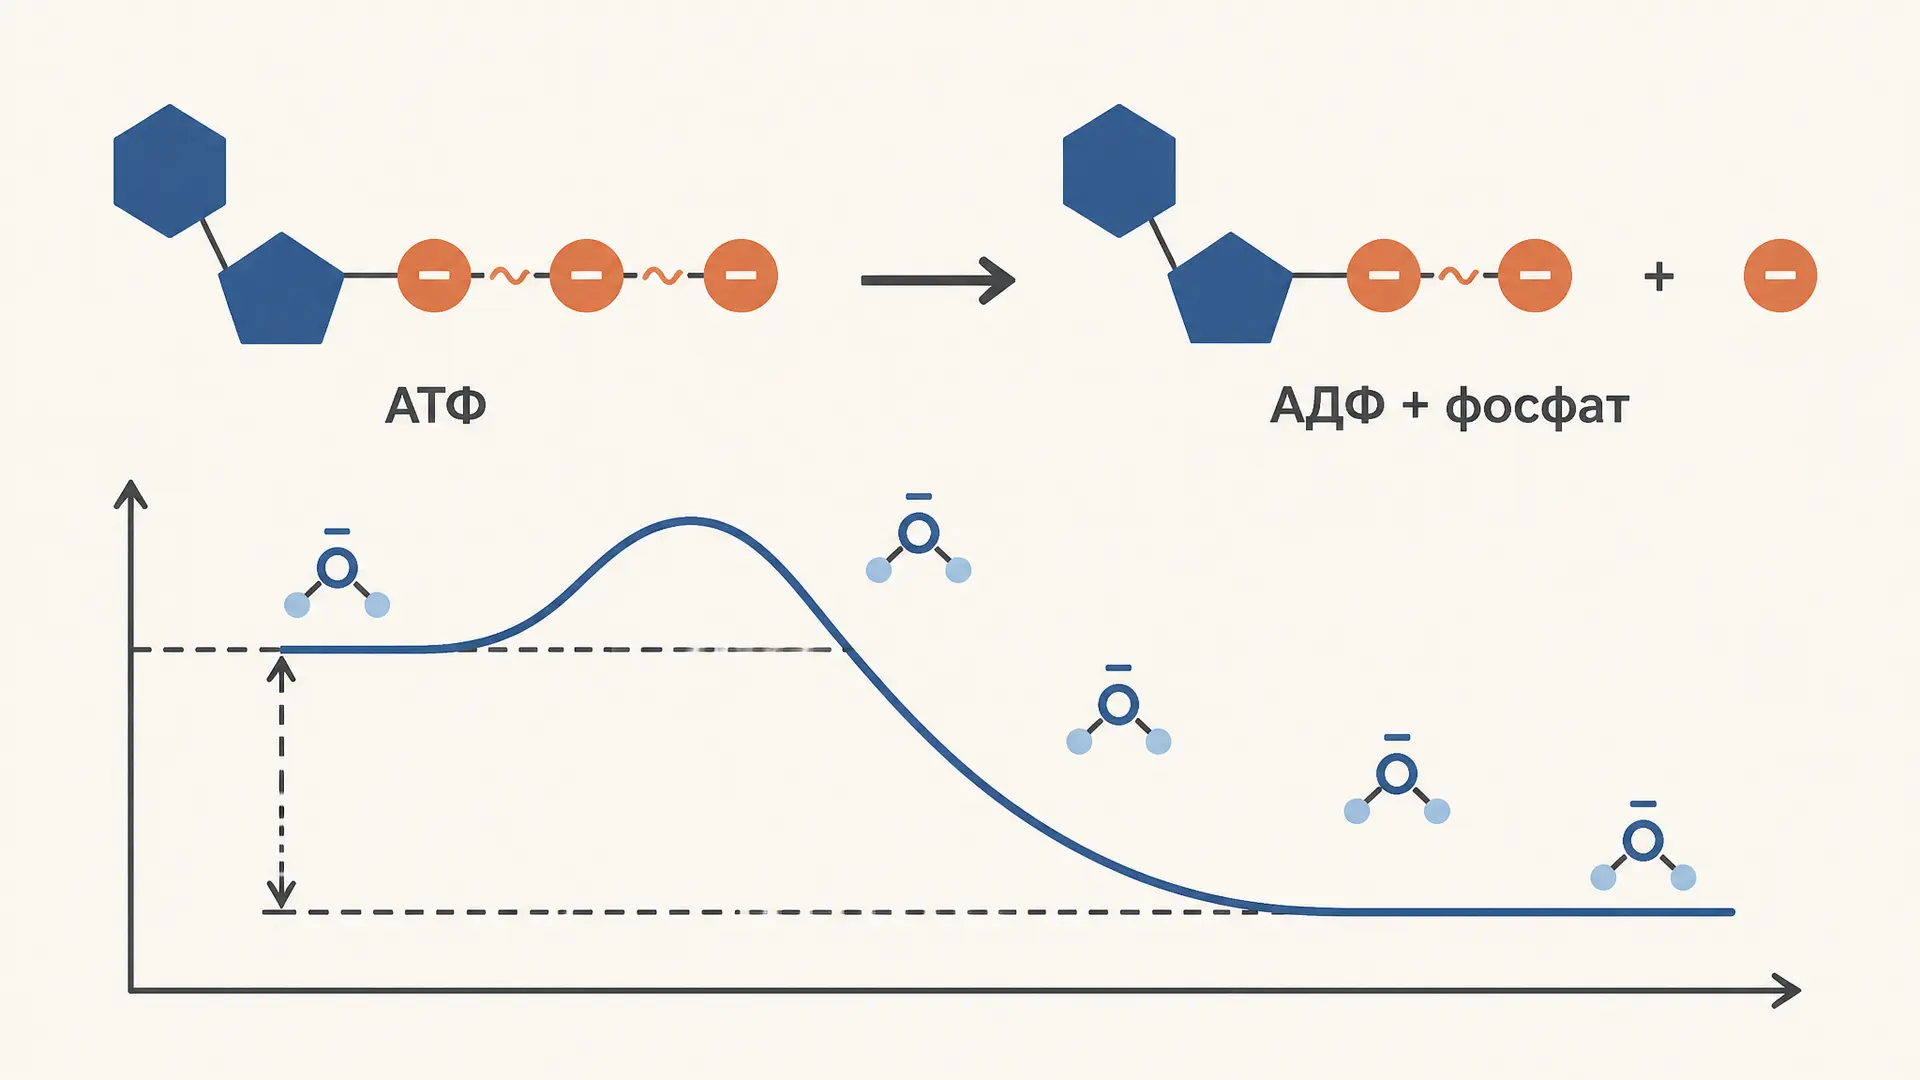
Макроэргические соединения: энергия гидролиза
Макроэргические соединения: почему гидролиз АТФ выгоден, чем ПЭП сильнее АТФ, как работают креатинфосфат, тиоэфиры, фосфорильный потенциал и сопряжение реакций.
Нуклеотиды: строение, номенклатура и классификация
Нуклеотиды: строение трёхчастного модуля, правила номенклатуры от основания к нуклеозиду, деление по числу фосфатов и типу пентозы, циклические формы и коферменты.
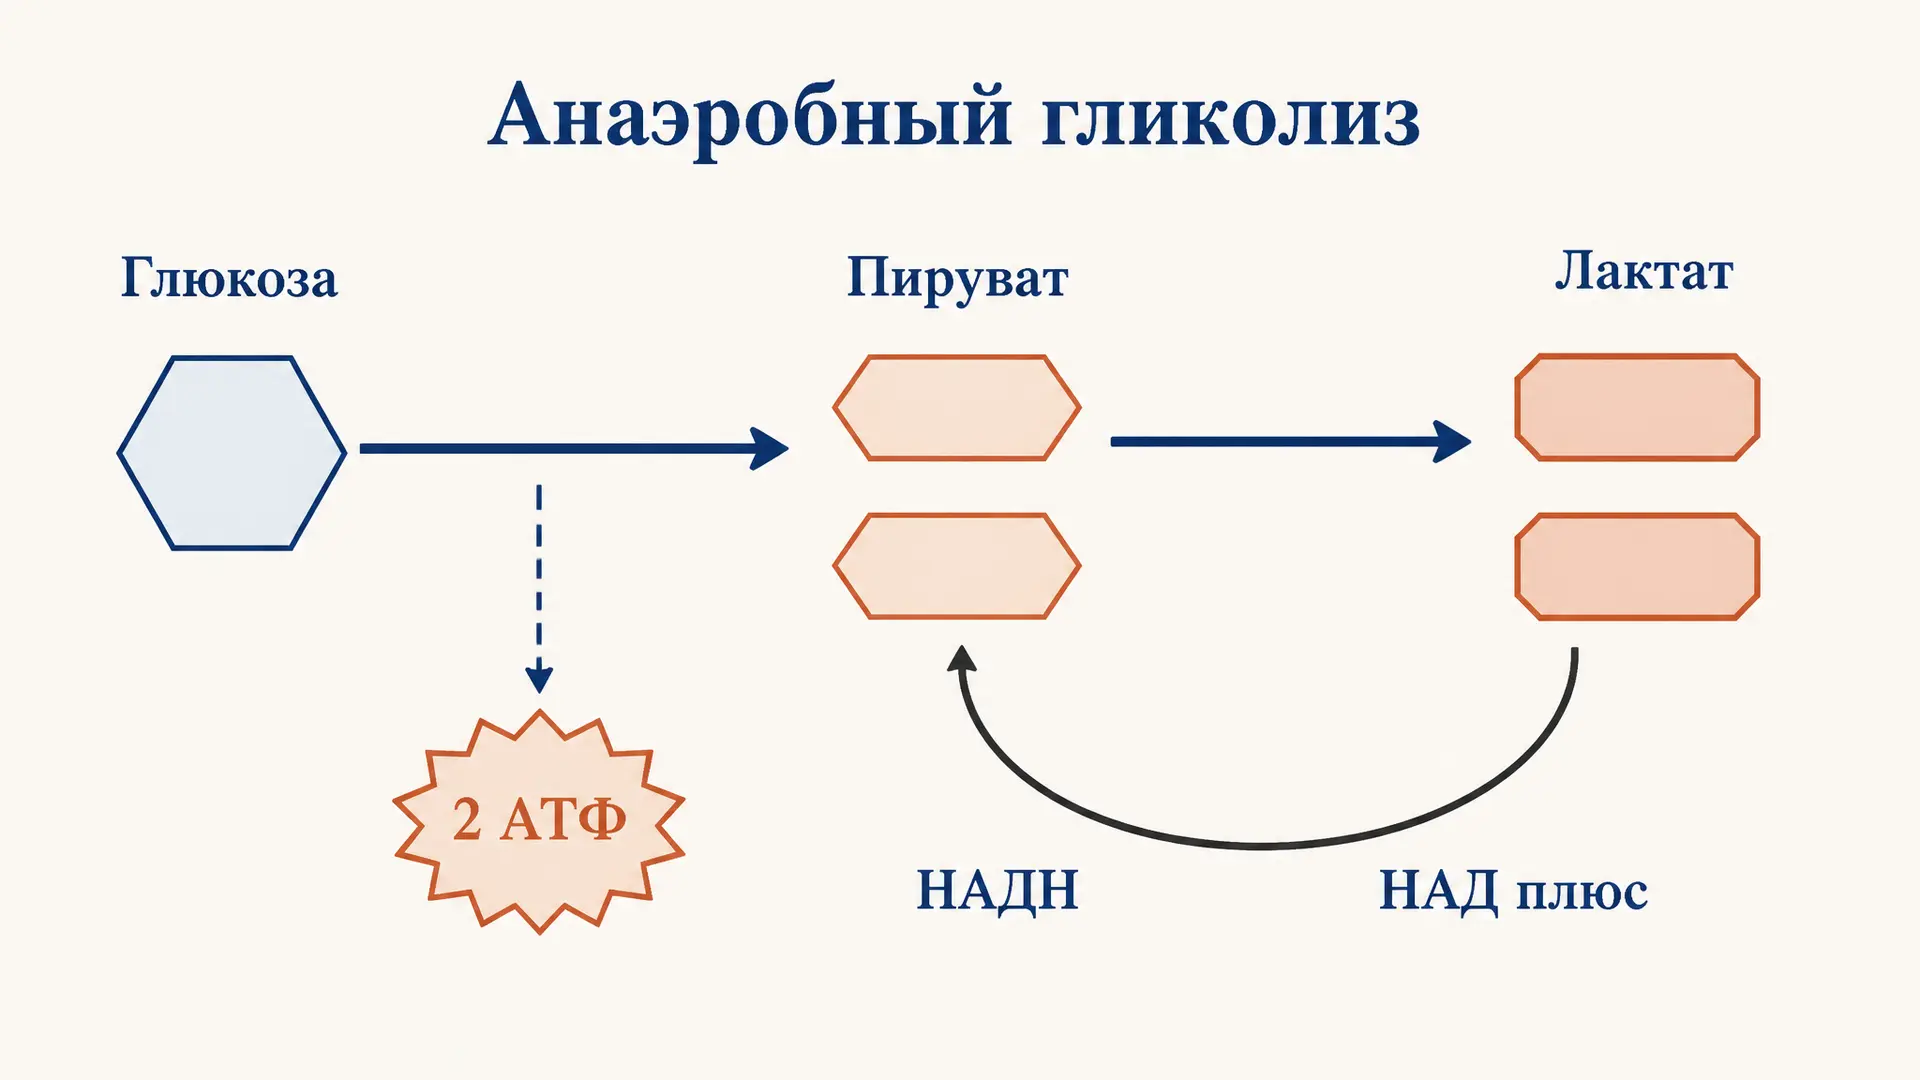
Анаэробный гликолиз и образование лактата: разбор
Анаэробный гликолиз и образование лактата: суммарное уравнение, чистый выход 2 АТФ, роль лактатдегидрогеназы и регенерации НАД плюс, связь с закислением мышцы.
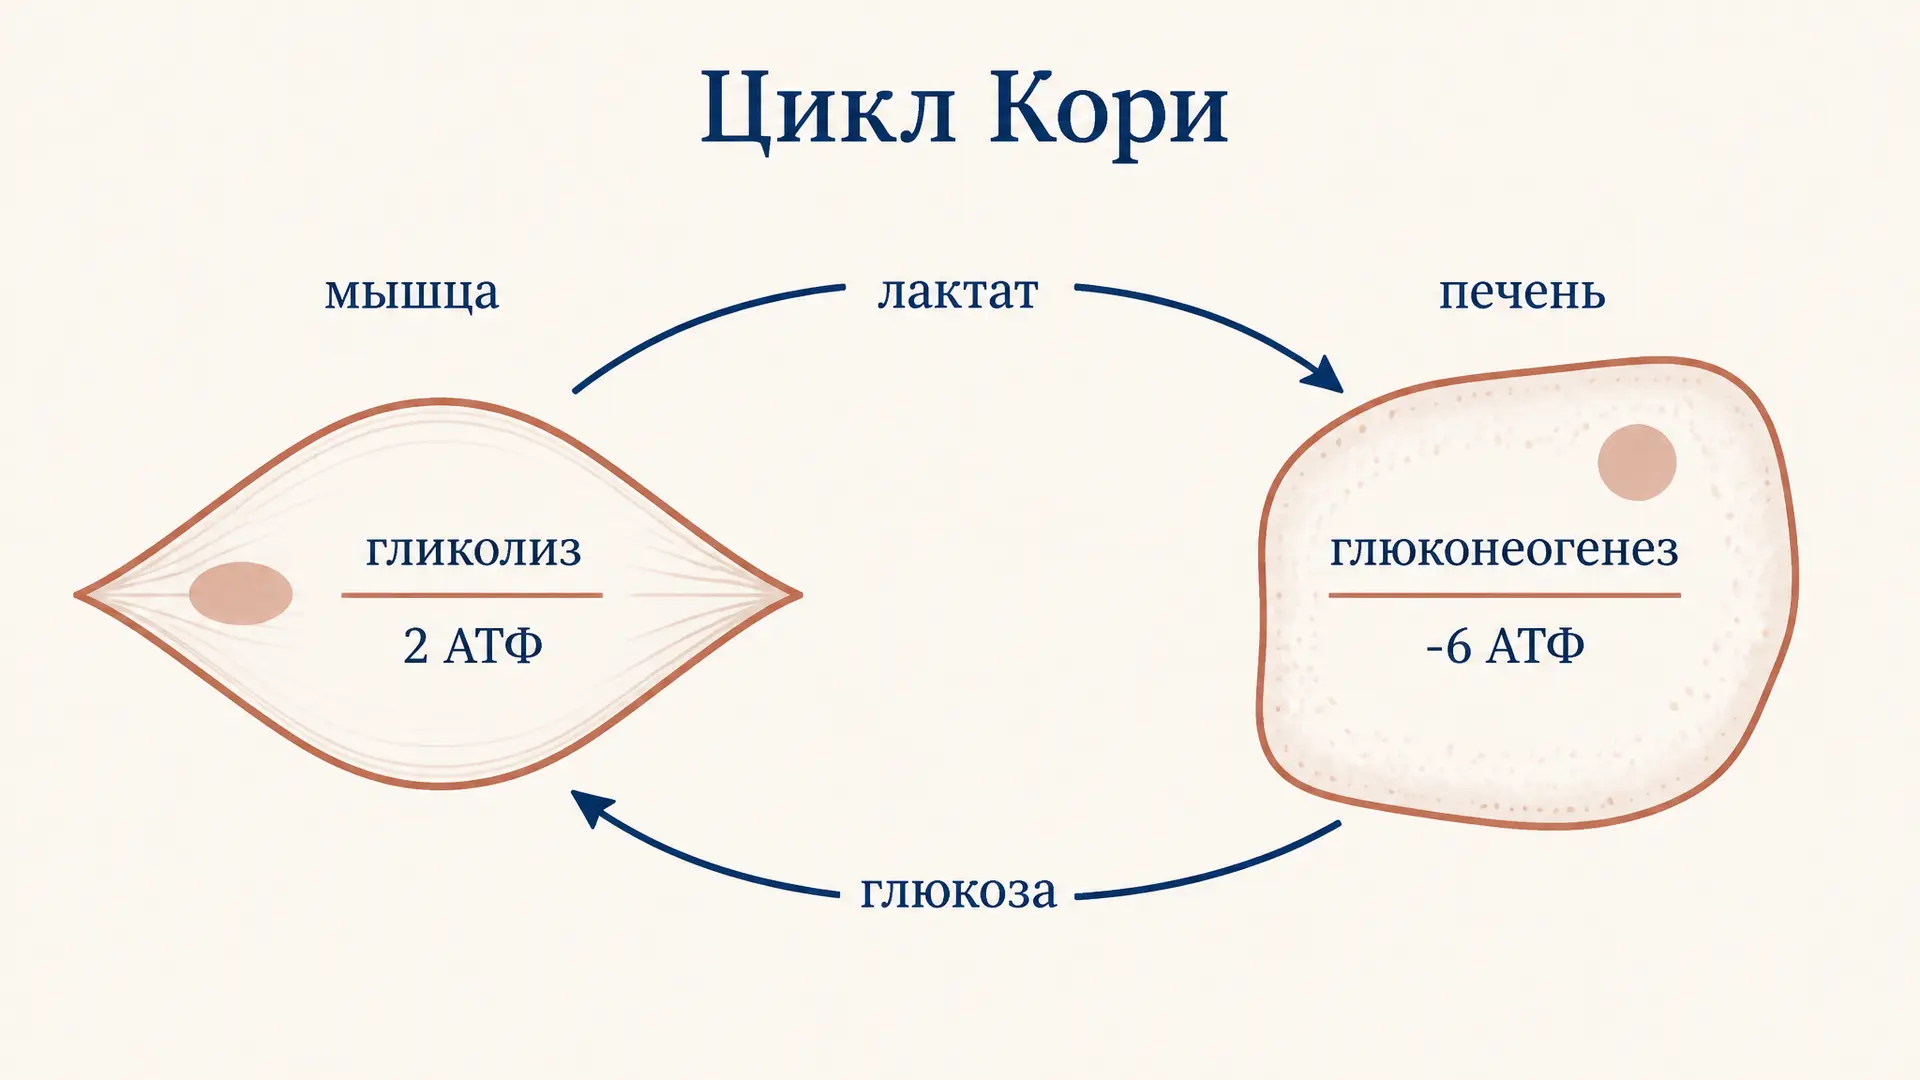
Цикл Кори: лактат, глюкоза, печень и мышцы
Цикл Кори - межорганный метаболический путь, по которому лактат мышц превращается в глюкозу печени. Ферменты, транспорт, регуляция и значение при физической нагрузке.
Цикл Кори в мышцах: как лактат возвращается глюкозой
Цикл Кори в мышцах простыми словами: как лактат из работающей мышцы превращается в печени обратно в глюкозу, зачем это нужно и какова энергетическая цена этого пути.
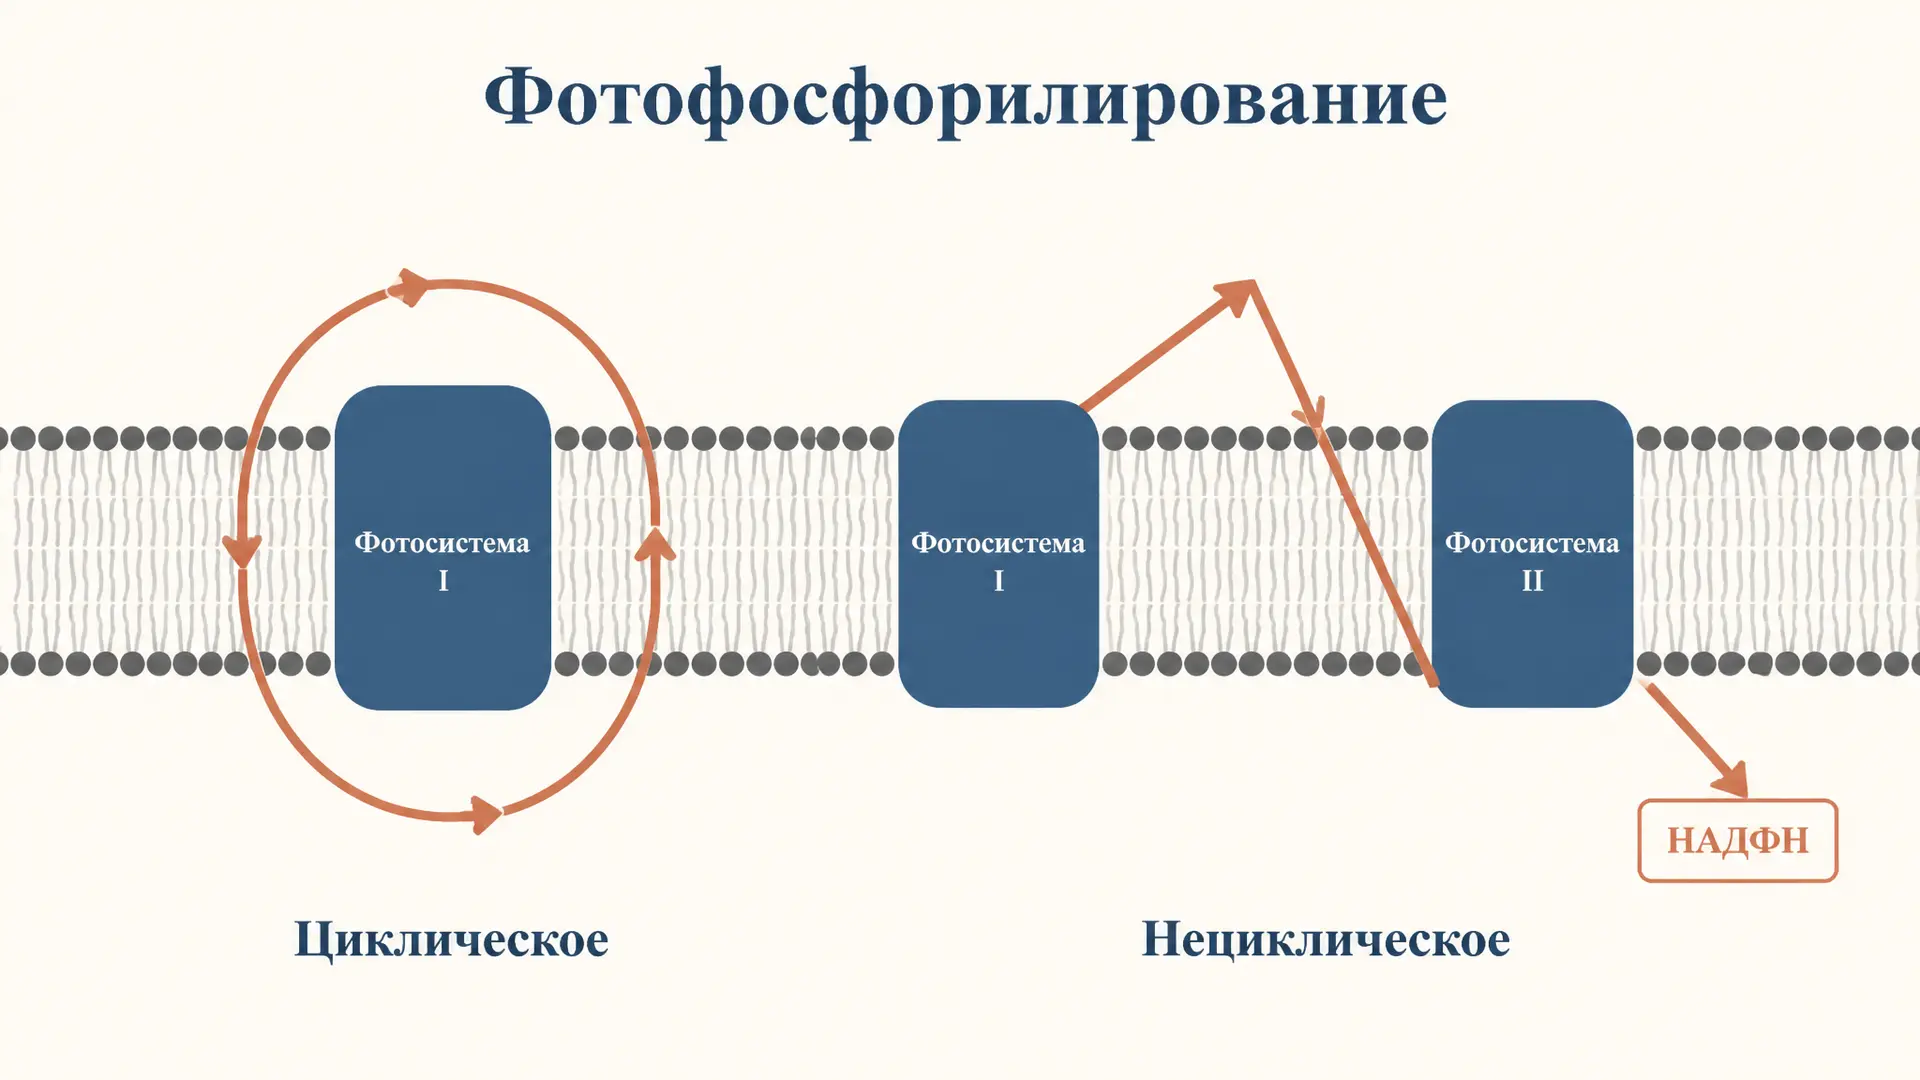
Фотофосфорилирование циклическое и нециклическое
Разбор циклического и нециклического фотофосфорилирования: какие фотосистемы работают, что образуется (АТФ, НАДФН, кислород), Z-схема и зачем растению два пути.