Хлорофилл: строение молекулы, формы a и b
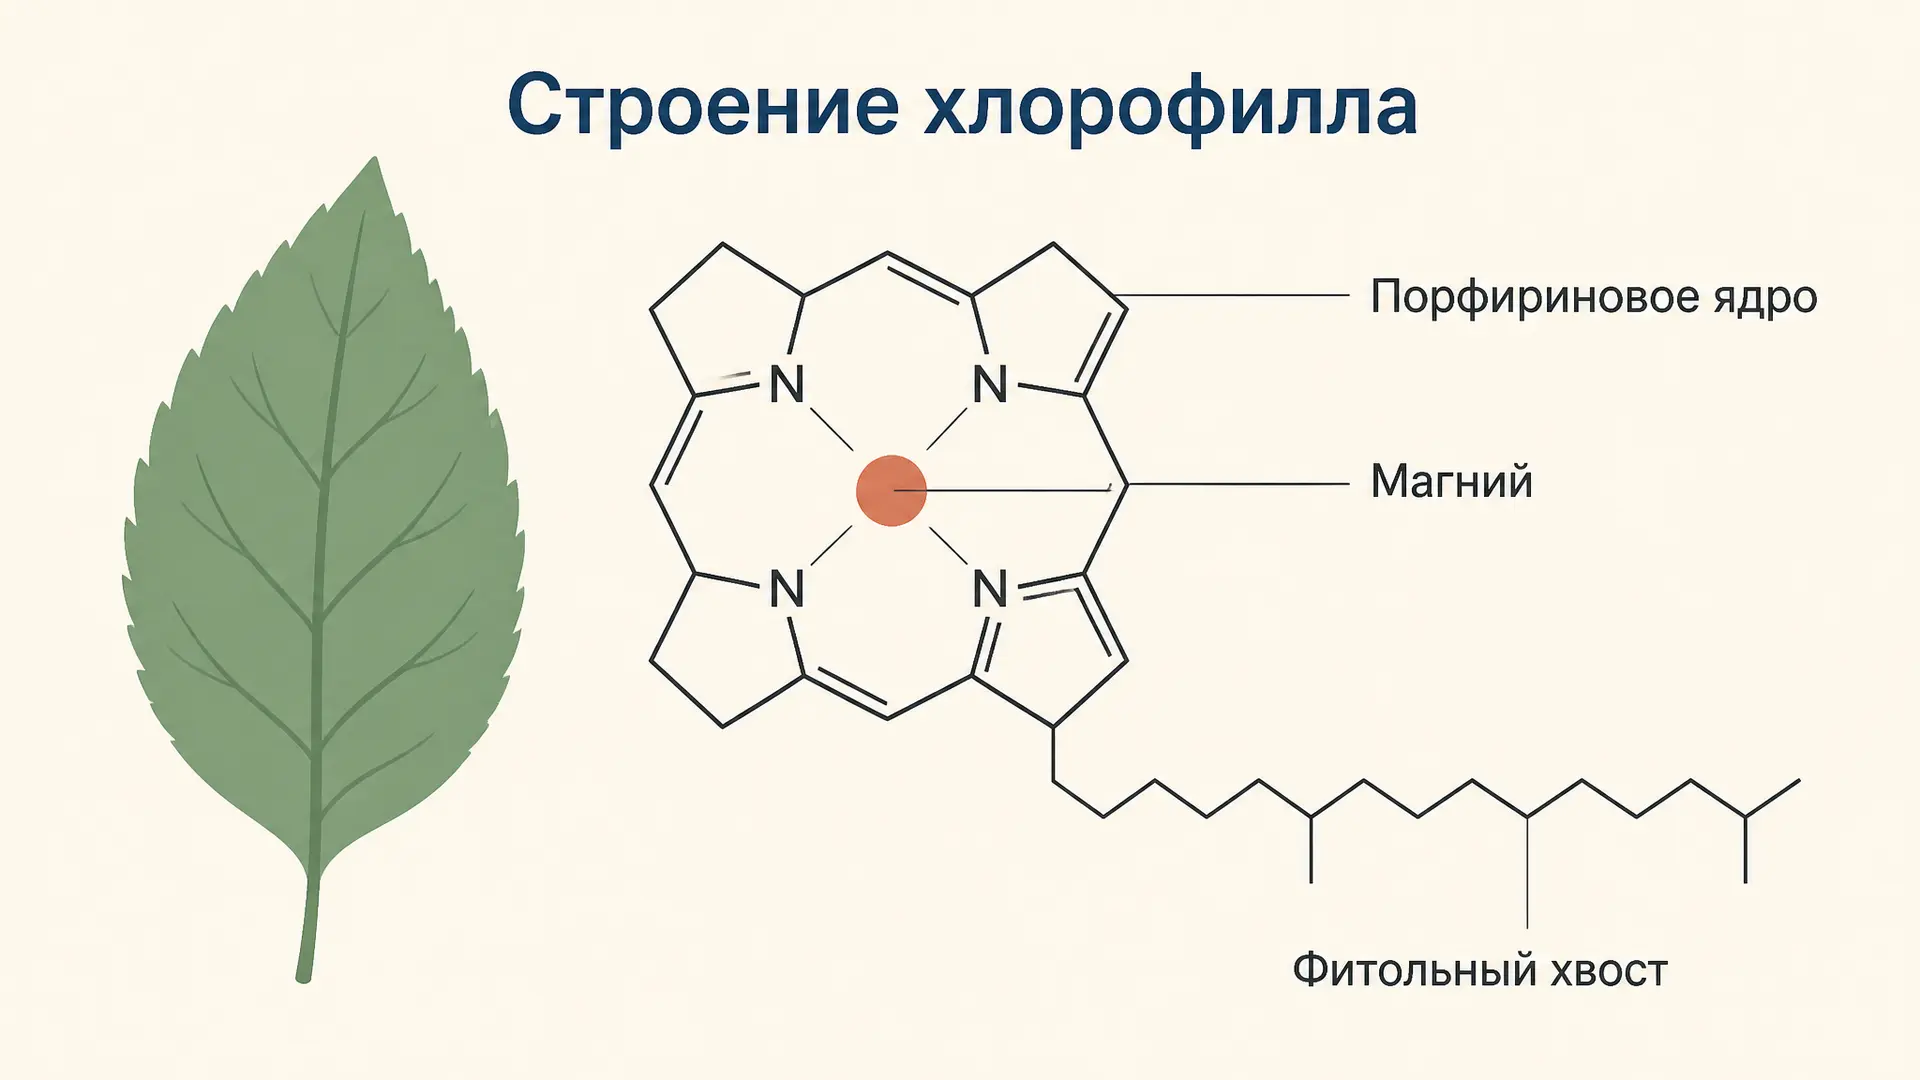
Хлорофилл - главный светопоглощающий пигмент зелёных растений, водорослей и цианобактерий. Вопрос «строение хлорофилла» на коллоквиуме почти всегда означает одно и то же: назвать две части молекулы, объяснить, что держит магний в центре, и показать, какой заместитель отличает хлорофилл a от хлорофилла b. Разберём молекулу по частям - от тетрапиррольного ядра до фитольного хвоста - и свяжем каждую деталь строения с тем, что пигмент делает в тилакоидной мембране. Ниже соберите свой вариант вопроса, чтобы получить разбор именно нужной формы пигмента.
Из чего состоит молекула хлорофилла
Хлорофилл - это магниевый комплекс замещённого порфирина, к которому сложноэфирной связью пришит длинный спирт. Отсюда двухчастная схема, которую и ждут в ответе:
- Гидрофильная «голова» - плоское тетрапиррольное (порфириновое) ядро с ионом в центре. Именно она поглощает свет.
- Гидрофобный «хвост» - остаток дитерпенового спирта фитола (), присоединённый к пропионовой группе кольца D.
Брутто-формулы двух главных форм отличаются на один атом кислорода и два атома водорода:
Молекулярная масса хлорофилла a - около 893 г/моль, хлорофилла b - около 907 г/моль. Обе формы почти нерастворимы в воде и хорошо растворяются в ацетоне, этаноле и диэтиловом эфире: на этом построена классическая вытяжка пигментов по Крауту и их разделение хроматографией по Цвету.
Порфириновое ядро и атом магния
Ядро хлорофилла - это порфирин, точнее его частично восстановленная форма, хлорин. Пиррольные кольца обозначают буквами A, B, C, D; они соединены метиновыми мостиками в замкнутый макроцикл с системой сопряжённых двойных связей. Четыре атома азота смотрят внутрь цикла и удерживают катион магния: две связи ковалентные (по месту отщеплённых протонов пиррольных NH), две - координационные, донорно-акцепторные.
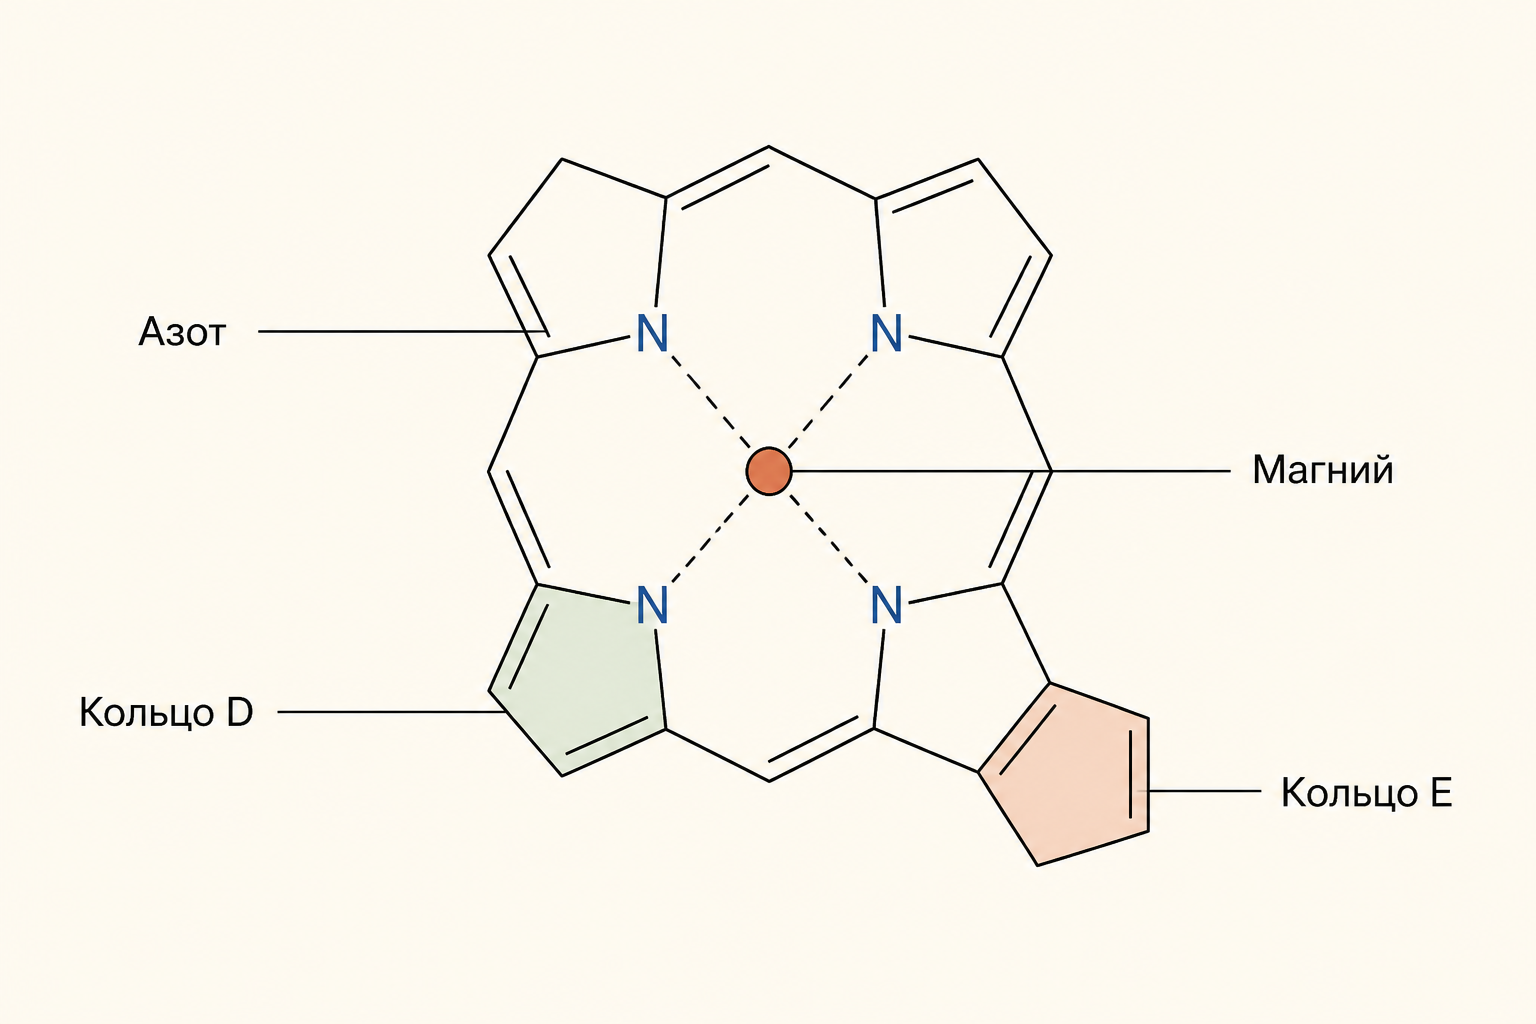
Две особенности отличают хлорин хлорофилла от «обычного» порфирина, например от протопорфирина IX в составе гема:
- Кольцо D восстановлено - двойная связь между C17 и C18 отсутствует. Из-за этого макроцикл теряет полную симметрию, длинноволновая полоса поглощения смещается в красную область и резко усиливается.
- Есть пятое, циклопентановое кольцо E, замкнутое между C13 и C15 и несущее кетогруппу. Его иногда называют изоциклическим - в схемах строения его обязательно рисуют.
Магний в центре - ключ ко всей фотохимии: он стабилизирует плоскую геометрию макроцикла, повышает время жизни возбуждённого состояния и делает возможным перенос энергии между молекулами. Если ион магния вытеснить протонами (достаточно подкислить вытяжку каплей соляной кислоты), получается бурый феофитин - реакция служит быстрым качественным тестом на магний в пигменте. Сам порфириновый скелет универсален для биологии: тем же путём от 5-аминолевулиновой кислоты строится гем на основе протопорфирина IX, только на последнем шаге в кольцо садится железо, а не магний.
Фитольный хвост: якорь в мембране
Фитол - это разветвлённый ненасыщенный спирт из двадцати углеродов, остаток изопреноидного пути. Он присоединён сложноэфирной связью к пропионатному заместителю кольца D и в кадре молекулы выглядит как длинная «нога».
Хвост не участвует в поглощении света вообще: спектр феофорбида (ядра без фитола) почти совпадает со спектром целой молекулы. Его роль механическая - заякорить пигмент в липидном бислое тилакоида и правильно сориентировать плоскость макроцикла относительно мембраны. Благодаря фитолу хлорофилл не вымывается в строму и удерживается на белках светособирающего комплекса на строго заданном расстоянии от соседних молекул: именно расстояние и взаимная ориентация определяют скорость безызлучательного переноса энергии.
Хлорофилл a и хлорофилл b: в чём разница
Различие ровно одно и сидит на кольце B, у атома C7:
| Признак | Хлорофилл a | Хлорофилл b |
|---|---|---|
| Заместитель при C7 | метильная группа | альдегидная группа |
| Цвет раствора | сине-зелёный | жёлто-зелёный |
| Максимумы поглощения (эфир) | 430 и 662 нм | 453 и 642 нм |
| Роль | основной, входит в реакционный центр | вспомогательный, только в антенне |
| Доля в листе | около 3/4 | около 1/4 |
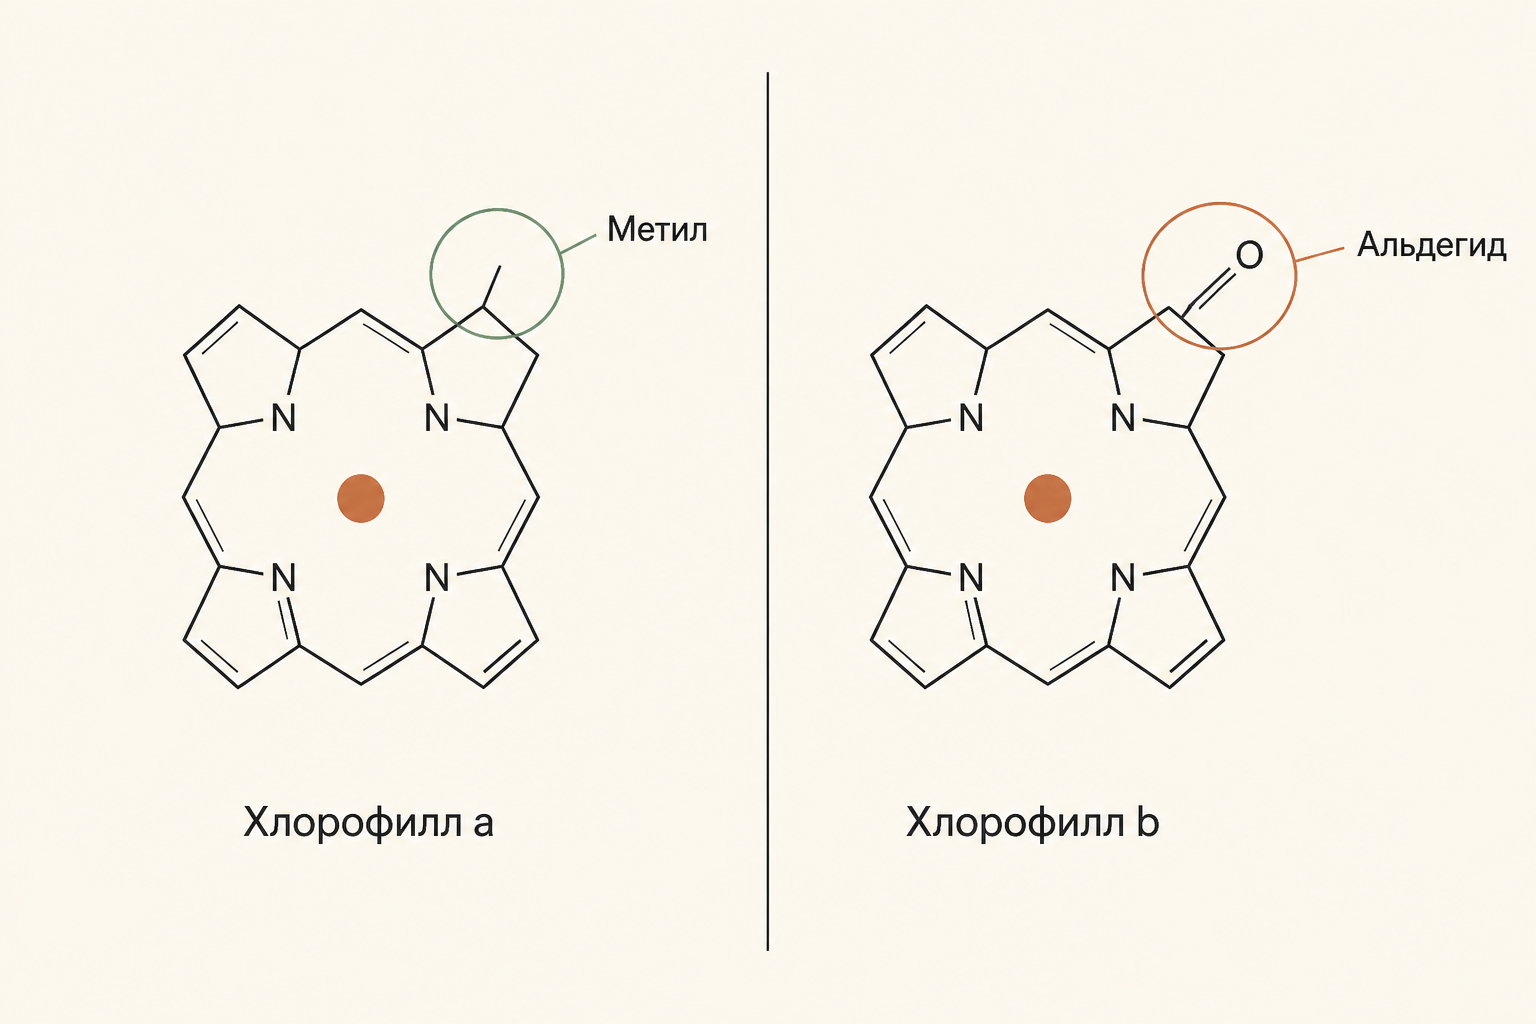
Замена метила на альдегид - сильный электроноакцепторный сдвиг. Он оттягивает электронную плотность с макроцикла, из-за чего полосы поглощения хлорофилла b сдвигаются к середине спектра. Практический смысл прост: два пигмента вместе перекрывают более широкий диапазон, чем каждый по отдельности. Хлорофилл b собирает кванты в «провале» между полосами хлорофилла a и передаёт энергию на него - обратный перенос энергетически невыгоден. Поэтому в реакционных центрах фотосистем сидит только форма a: она и антенна, и донор электрона.
Другие формы: c, d, f и бактериохлорофиллы
Кроме a и b в природе встречаются:
- Хлорофилл c (диатомовые, бурые водоросли) - не хлорин, а настоящий порфирин, кольцо D не восстановлено; фитольного хвоста нет вовсе.
- Хлорофилл d (цианобактерия Acaryochloris marina) - вместо винильной группы при C3 стоит формильная, максимум поглощения уходит на 710 нм, в ближний инфракрасный диапазон.
- Хлорофилл f - описан в 2010 году, рекордсмен по «краснизне»: около 720 нм.
- Бактериохлорофиллы пурпурных бактерий построены на бактериохлорине: восстановлены уже два кольца, поглощение доходит до 870 нм.
Общий принцип: чем сильнее восстановлен макроцикл и чем более электроноакцепторные заместители на нём сидят, тем длиннее волна, которую пигмент способен поймать.
Почему хлорофилл зелёный: спектр поглощения
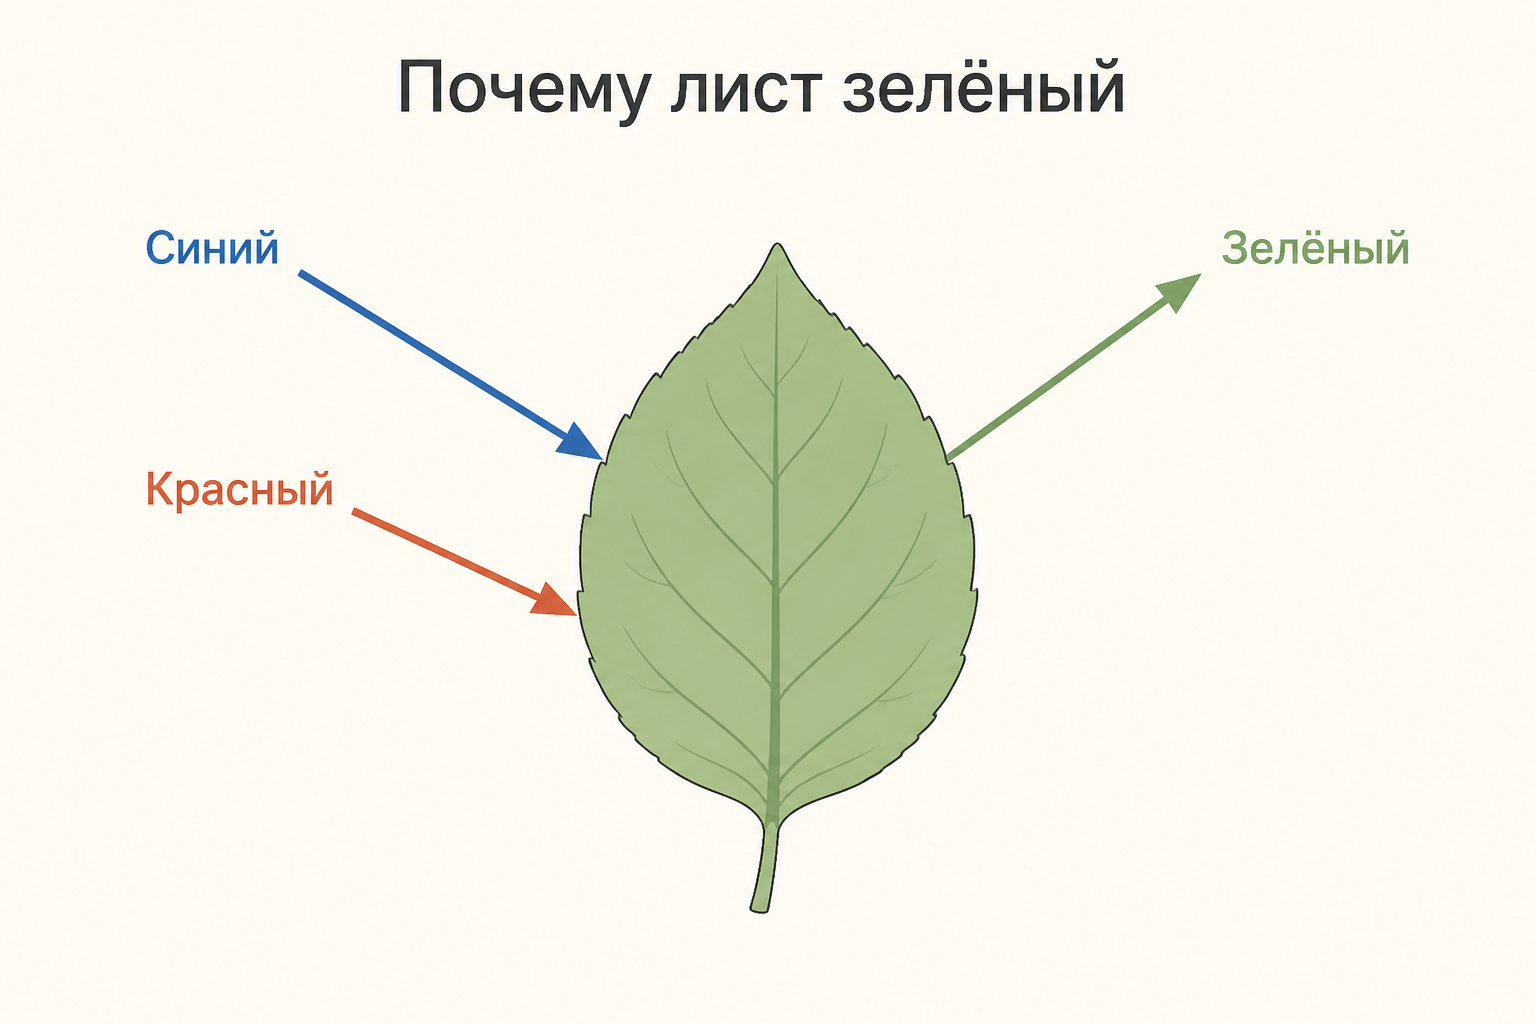
Сопряжённая система макроцикла даёт два характерных пика: интенсивную полосу Соре в синей области (около 430 нм у формы a) и Q-полосу в красной (около 662 нм). Между ними, в зелёно-жёлтом промежутке 500–570 нм, поглощение минимально - эти лучи листья отражают и пропускают, поэтому мы видим их зелёными. Зелёный цвет хлорофилла - это не то, что он ловит, а то, что он не смог поймать.
Энергию кванта, отвечающего максимуму поглощения, считают по формуле Планка:
В пересчёте на моль это примерно 180 кДж - как раз столько, сколько нужно, чтобы поднять электрон реакционного центра на уровень первичного акцептора. Отсюда, кстати, растёт и понятие квантового выхода фотосинтеза: сколько квантов такой энергии тратится на фиксацию одной молекулы CO₂.
Как строение связано с работой в тилакоиде
В мембране хлорофилл никогда не бывает свободным: он всегда нековалентно связан с белками светособирающих комплексов и ядер фотосистем. Плоские макроциклы уложены стопками почти параллельно, на расстоянии 1–2 нм друг от друга - при такой геометрии энергия возбуждения перескакивает по индуктивно-резонансному механизму Фёрстера за пикосекунды и стекает к паре молекул хлорофилла a реакционного центра (P680 и P700).
Свободный хлорофилл в клетке опасен: возбуждённый пигмент вне белкового окружения передаёт энергию кислороду и рождает синглетный кислород. Поэтому строение молекулы «заточено» под встраивание - гидрофобный хвост в бислой, гидрофильная голова в белковый карман. Где именно расположены эти мембраны и чем граны отличаются от тилакоидов стромы, разобрано в статье про строение хлоропласта.
Частые ошибки
- Пишут «железо в центре хлорофилла» - путают с гемом. В хлорофилле магний, в геме железо, скелет при этом похожий.
- Забывают циклопентановое кольцо E - на схеме строения его отсутствие сразу считают ошибкой.
- Называют хлорофилл порфирином без оговорки: у форм a, b, d, f ядро восстановлено, это хлорин; настоящий порфирин только у формы c.
- Приписывают фитолу поглощение света - хвост оптически неактивен, работает только макроцикл.
- Ищут разницу a и b в хвосте: хвост у них одинаковый, различие - заместитель при C7.
FAQ
Какой металл входит в состав хлорофилла и зачем он там нужен? Магний в виде иона . Он держит макроцикл плоским, увеличивает время жизни возбуждённого синглетного состояния и обеспечивает перенос энергии. При вытеснении магния кислотой пигмент превращается в феофитин и буреет.
Чем хлорофилл a отличается от хлорофилла b? Одним заместителем при C7 кольца B: у формы a там метильная группа, у формы b - альдегидная. Отсюда сдвиг максимумов поглощения, другой оттенок и разные роли: a работает в реакционном центре, b - только в антенне.
Почему листья зелёные, если хлорофилл поглощает свет? Потому что поглощает он не весь свет: пики приходятся на синюю (около 430 нм) и красную (около 660 нм) области, а зелёные лучи 500–570 нм почти не поглощаются и отражаются к наблюдателю.
Коротко
Строение хлорофилла держится на двух блоках: плоское хлориновое ядро из четырёх пиррольных колец с ионом магния в центре и дополнительным циклопентановым кольцом E - и длинный фитольный хвост, заякоривающий пигмент в мембране тилакоида. Ядро поглощает свет и даёт двухпиковый спектр с провалом в зелёной области, хвост держит молекулу в бислое. Формы a и b различаются единственным заместителем при C7, и этой мелочи хватает, чтобы развести их по спектру и по функции: одна ведёт фотохимию, вторая только собирает кванты.
Читайте также
Квантовый выход фотосинтеза: эффективность поглощения света
Квантовый выход фотосинтеза - отношение поглощённых квантов к связанному CO2, измерение по кривой Эмерсона, максимальные значения для C3 и C4 растений.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.