Гликоген: синтез и распад, ферменты и регуляция
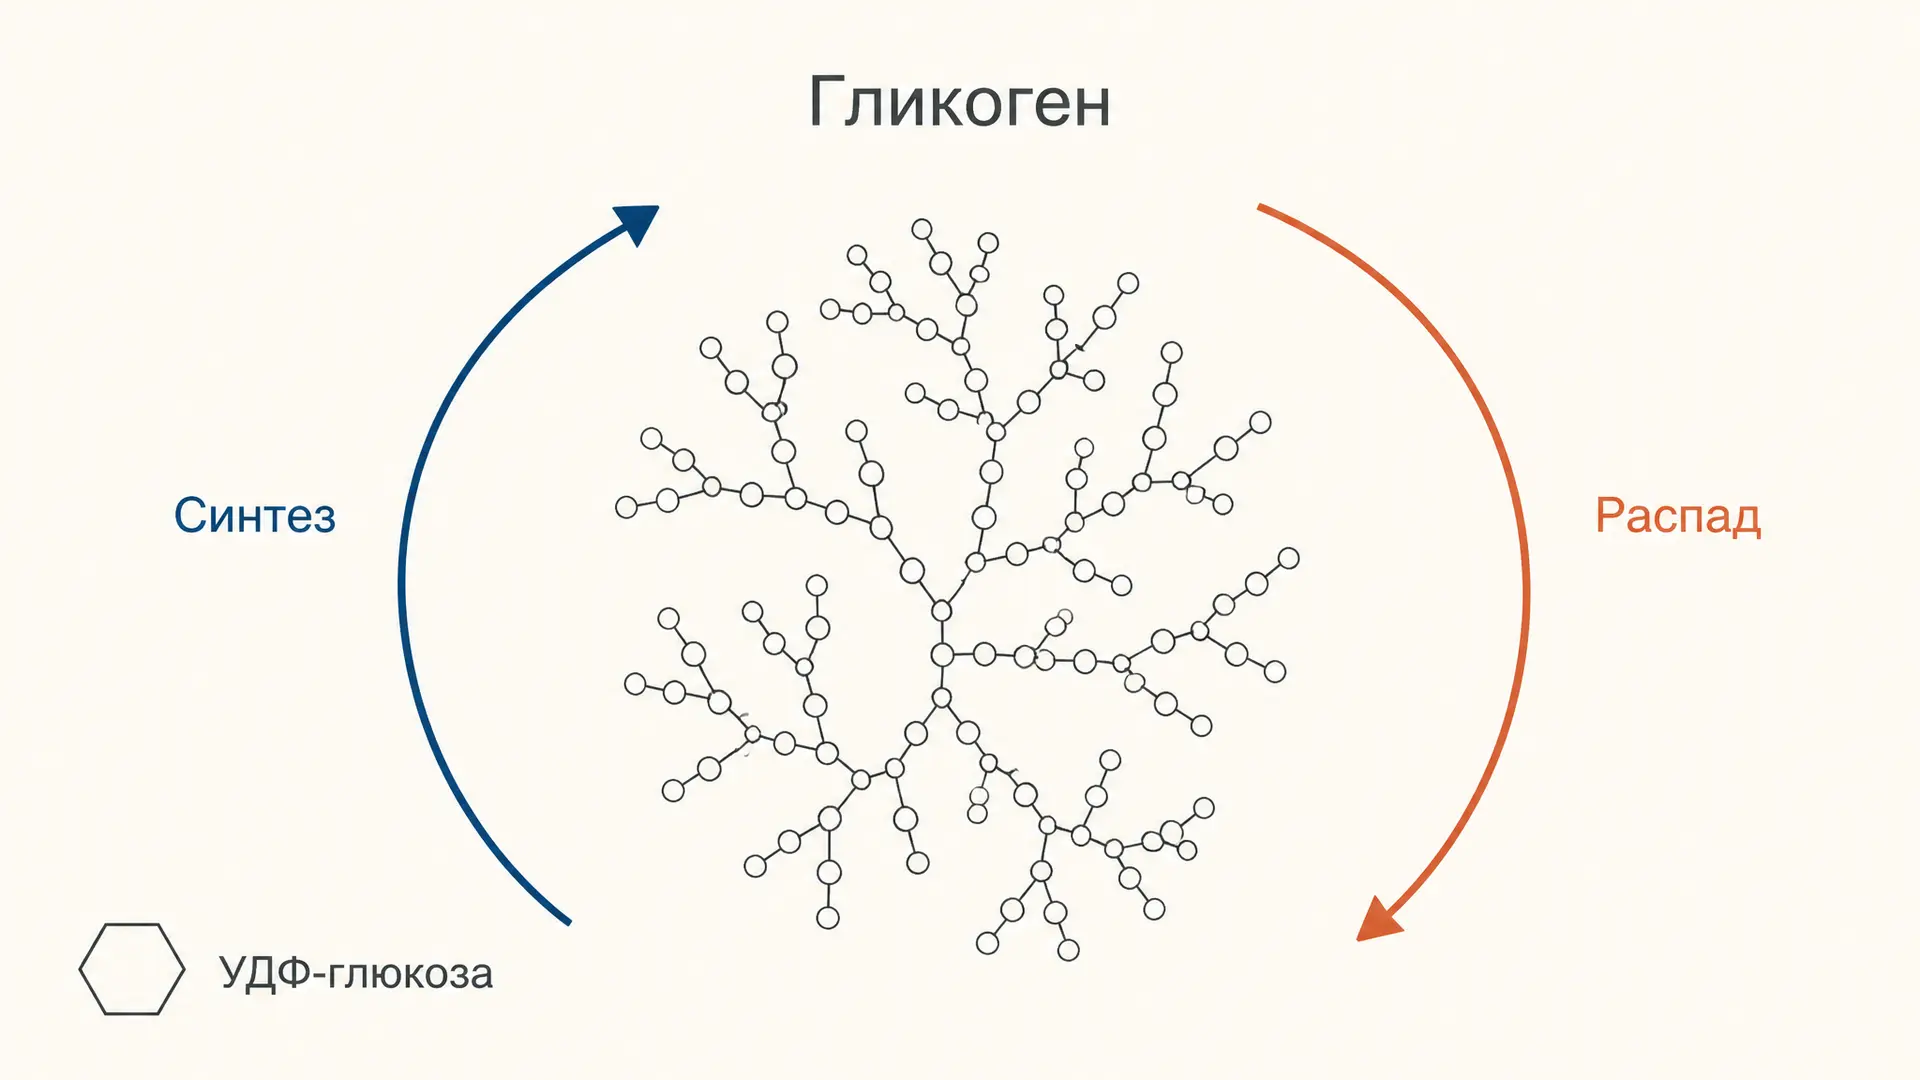
Гликоген обычно разбирают с конца: как он распадается, какие гормоны включают фосфорилазу и что бывает при её дефекте. Но самое любопытное в этой молекуле начинается раньше. Клетка строит запас отдельным набором ферментов, платит за него активацией сахара нуклеотидом и держит две дороги, синтез и распад, физически разными, чтобы никогда не гонять их одновременно. Ниже разбираем гликогенез по шагам, а заодно считаем, во сколько АТФ обходится само хранение.
Почему запас хранится как гликоген, а не как свободная глюкоза
В печени взрослого человека лежит до 100 г гликогена (до 5-6 % массы органа), в скелетных мышцах суммарно 300-400 г. Если бы тот же запас хранился свободной глюкозой, концентрация в гепатоците подскочила бы примерно до 0,4 моль/л, и клетка набрала бы воду до разрыва. Полимер решает задачу осмоса арифметически: тысячи остатков связаны в одну частицу, а осмотическое давление считают по числу частиц, а не по массе.
Второй смысл полимера - скорость. Цепи соединены гликозидными связями двух типов: внутри цепи это -1,4, в точках ветвления -1,6. Ветвление делает из линейной нити дерево с сотнями свободных невосстанавливающих концов, и каждый конец - самостоятельная точка приложения ферментов. Чем больше концов, тем быстрее и наращивается, и разбирается запас. Ферменты работают только с наружного слоя дерева, поэтому скорость и синтеза, и мобилизации пропорциональна не массе гранулы, а числу доступных концов.
Гликогенин: с чего начинается первая цепь
Гликогенсинтаза умеет только удлинять уже существующую цепь: ей нужен акцептор минимум из четырёх остатков. Начало кладёт белок гликогенин - димер, который работает и ферментом, и затравкой. Он присоединяет первый остаток глюкозы к собственному тирозину, а затем достраивает на себе короткий олигосахарид примерно из восьми остатков, используя ту же УДФ-глюкозу, что и синтаза. Это называется аутогликозилированием.
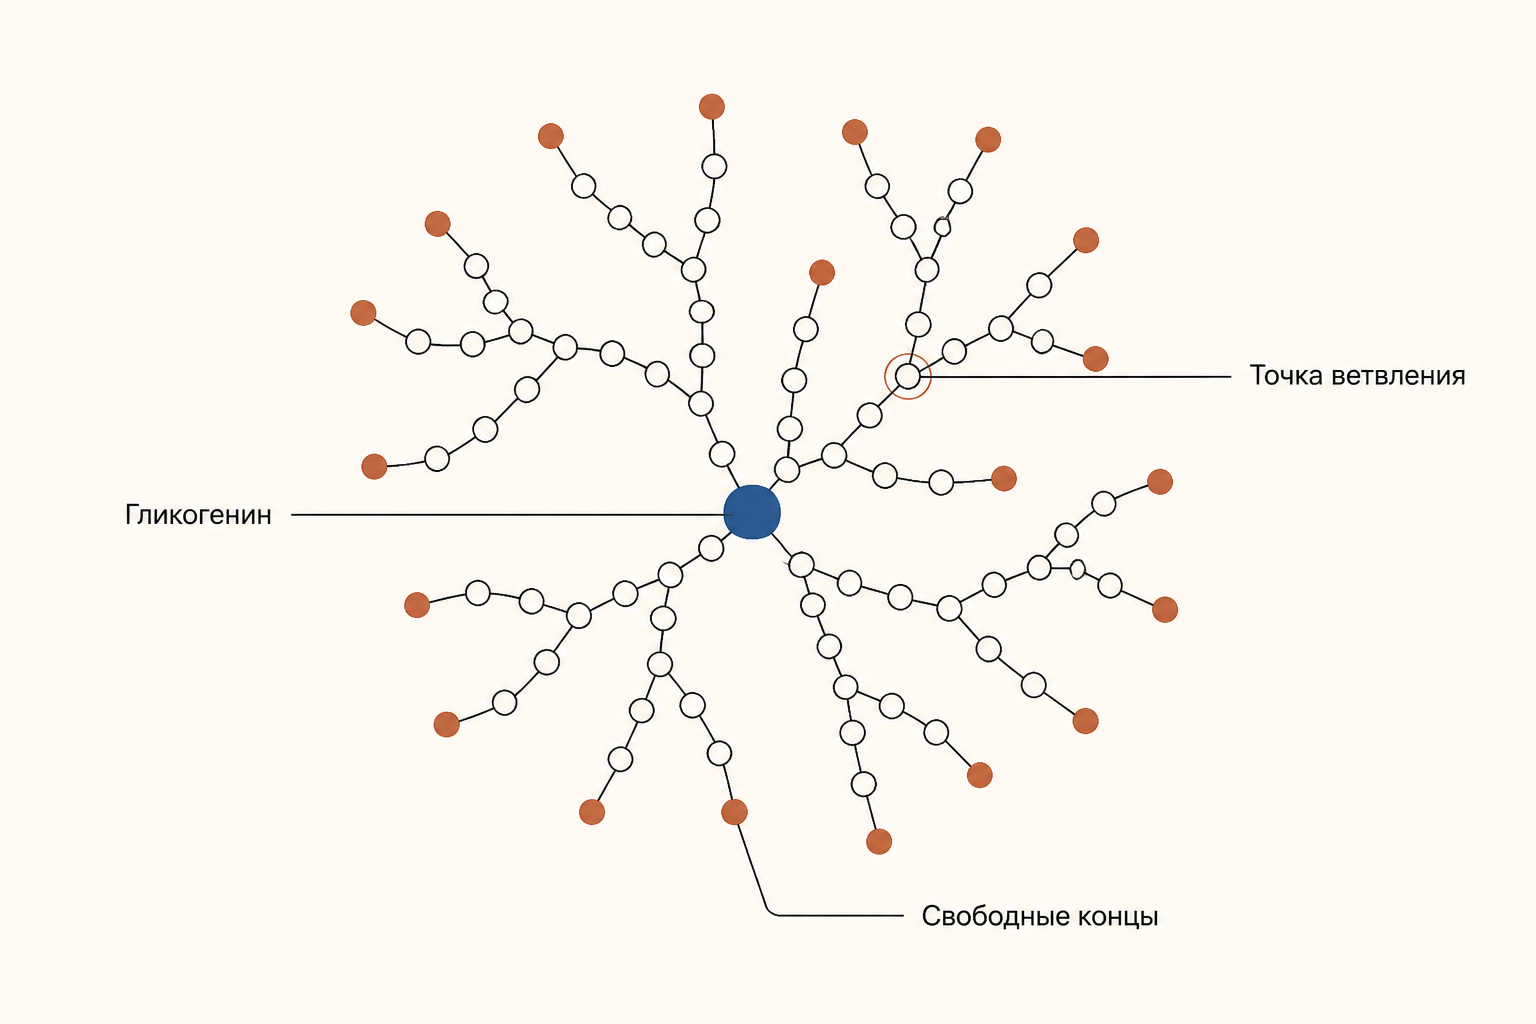
Дальше гликогенин остаётся внутри частицы навсегда: каждая гранула гликогена - это одна молекула белка в центре и дерево цепей вокруг. Отсюда следует и предел роста частицы: новых затравок клетка делает ровно столько, сколько ей нужно гранул.
УДФ-глюкоза: активированная форма и её цена
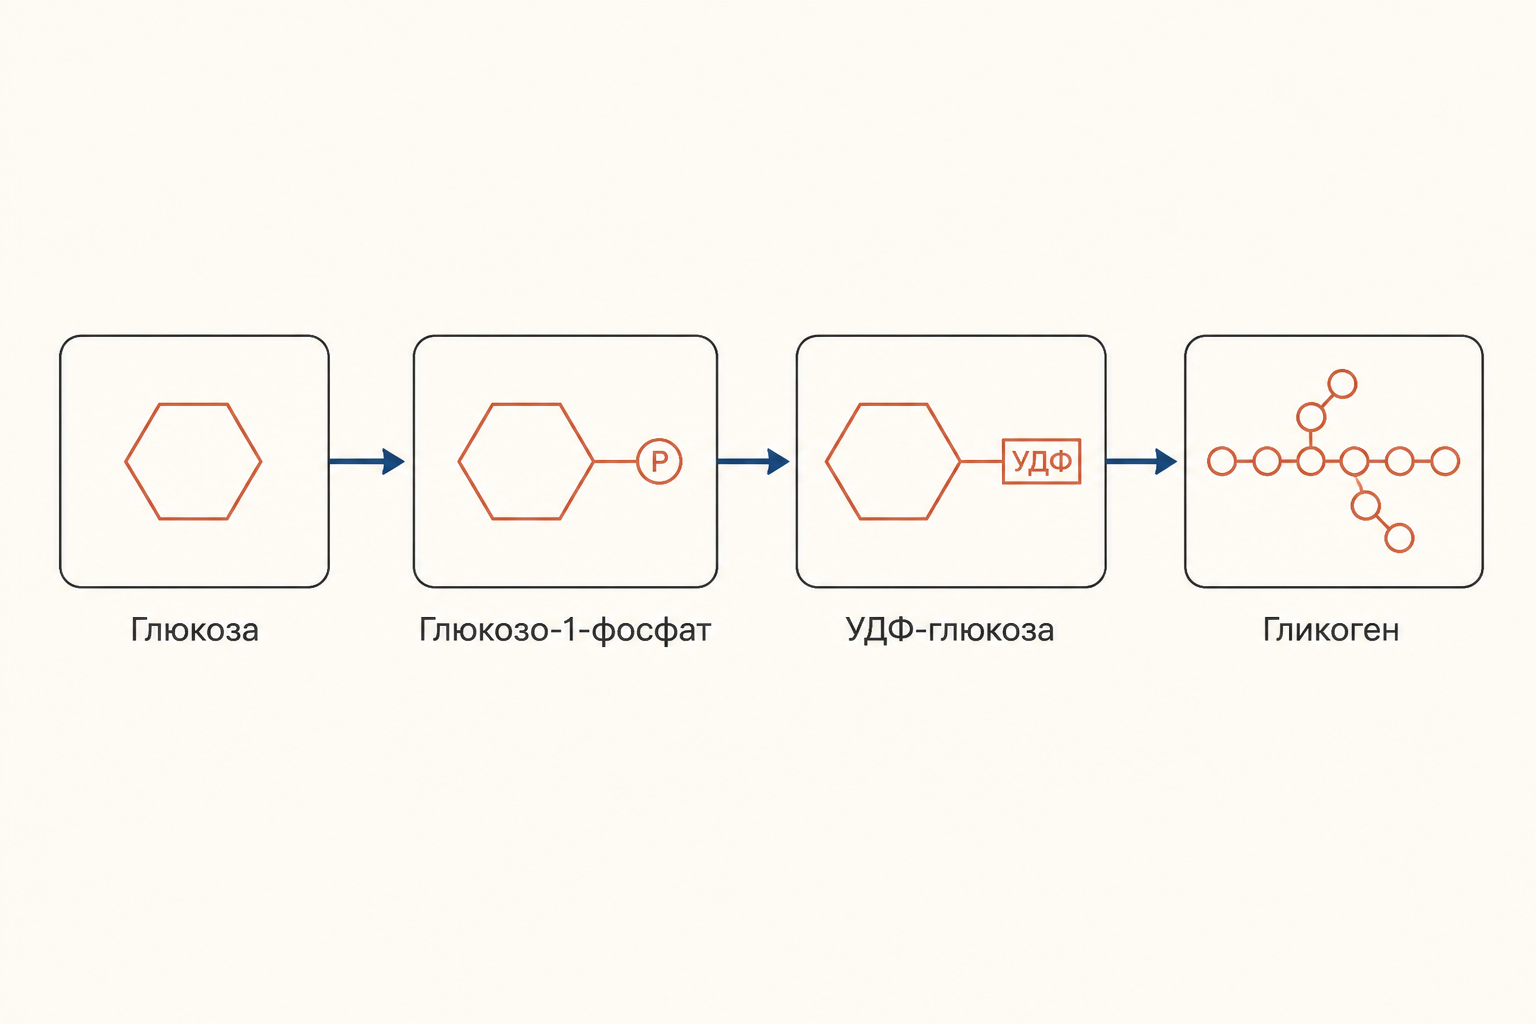
Свободная глюкоза для синтеза не годится, её нужно активировать. Путь занимает три реакции:
Первую ведёт гексокиназа (в печени глюкокиназа), вторую - фосфоглюкомутаза, третью - УДФ-глюкозопирофосфорилаза. Третья реакция сама по себе почти равновесна, её тянет вперёд следующий шаг: неорганическая пирофосфатаза гидролизует выделившийся пирофосфат до двух фосфатов и делает всю стадию необратимой. Освободившийся потом УДФ восстанавливается до УТФ за счёт АТФ нуклеозиддифосфаткиназой, поэтому в итоге на каждый остаток тратятся две макроэргические связи.
Гликогенсинтаза и ветвящий фермент
Гликогенсинтаза переносит остаток с УДФ-глюкозы на невосстанавливающий конец цепи и замыкает -1,4-связь, отпуская УДФ. Она удлиняет цепи, но ветвить не умеет - линейный полимер получился бы плохо растворимым и медленным.
Ветви ставит амило-1,4-1,6-трансглюкозидаза. Когда цепь дорастает примерно до одиннадцати остатков, фермент отрезает концевой блок из шести-семи остатков и пришивает его -1,6-связью к шестому углероду остатка внутри цепи, не ближе четырёх остатков от соседней ветви. Один конец превращается в два, и оба доступны синтазе. В зрелом гликогене на точки ветвления приходится 8-10 % всех остатков, ветвь встречается каждые 8-12 звеньев.
Густота ветвления - это компромисс. Редкие ветви дают мало концов и медленную мобилизацию, слишком частые мешают ферментам подойти к цепи и увеличивают долю остатков, которые при распаде выйдут свободной глюкозой. Реальные 8-10 % - найденный эволюцией оптимум между плотностью упаковки и скоростью отдачи.
Разные ферменты для синтеза и распада
Распад идёт не обратным ходом синтеза. Гликогенфосфорилаза расщепляет связь фосфатом, а не водой:
В пробирке эта реакция обратима, но в клетке отношение концентраций фосфата и глюкозо-1-фосфата держится около 100:1, и равновесие всегда сдвинуто в сторону распада. Синтез через ту же фосфорилазу физиологически невозможен - потому и понадобилась активация нуклеотидом. Подробный разбор самой фосфорилазы, деветвящего фермента и гликогенозов - в статье про гликогенолиз и его регуляцию.
Асимметрия дорог даёт главное: каждое направление в своих условиях идёт с большой отрицательной свободной энергией, то есть необратимо, а значит, регулируется независимо. Плата за это - риск холостого цикла: если бы синтаза и фосфорилаза работали одновременно, клетка просто сжигала бы АТФ, наматывая и разматывая одну и ту же цепь. Каждый оборот такого цикла обходился бы в две макроэргические связи и не давал бы ничего взамен.
Реципрокная регуляция: один каскад, два противоположных ответа
Холостого цикла не происходит, потому что оба фермента подчинены одному сигналу. Адреналин и глюкагон через аденилатциклазу и цАМФ активируют протеинкиназу А, а та фосфорилирует обе мишени.
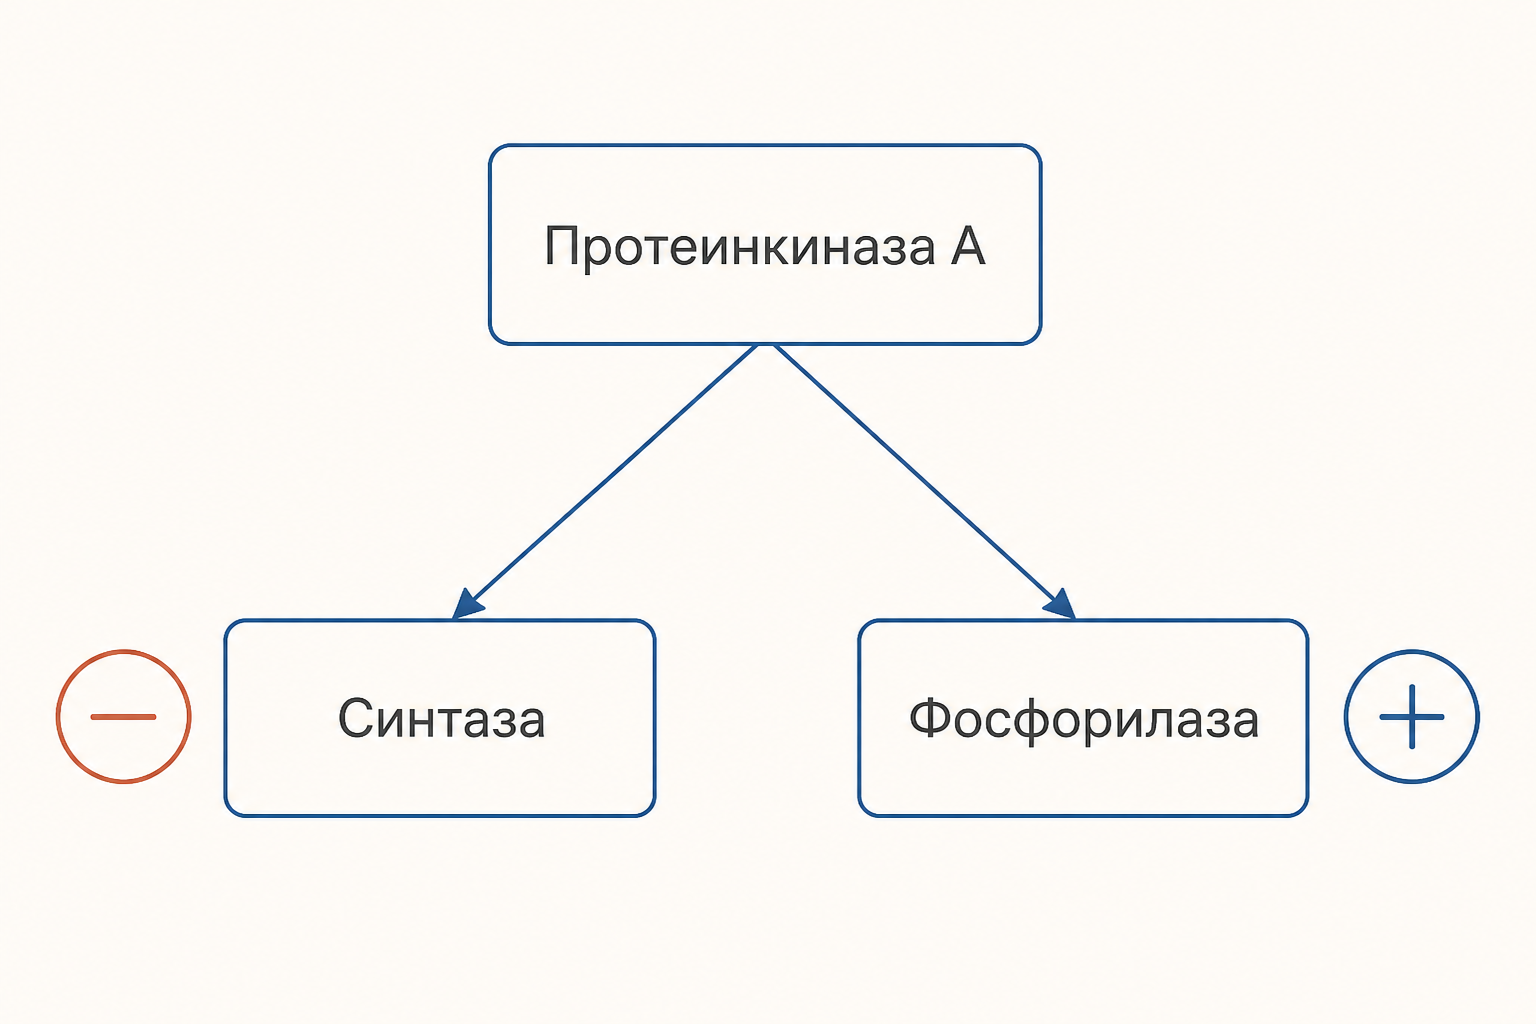
Дальше пути расходятся по знаку. Киназа фосфорилазы, тоже активированная протеинкиназой А, переводит фосфорилазу b в активную форму a. А гликогенсинтаза от фосфорилирования, наоборот, теряет активность: её деятельная форма a становится малоактивной формой b. Один каскад - синтез стоп, распад пуск. Тканевая специфика при этом сохраняется: рецепторы глюкагона есть у гепатоцита и почти отсутствуют у скелетной мышцы, поэтому голодание разбирает печёночный гликоген, а мышечный трогает главным образом адреналин при нагрузке.
Обратное переключение делает фосфопротеинфосфатаза 1: она снимает фосфаты с обоих ферментов и тем самым включает синтазу и выключает фосфорилазу. Именно на неё работает инсулин, который вдобавок через протеинкиназу B тормозит киназу GSK3, ещё одного ингибитора синтазы. Поверх ковалентной регуляции лежит аллостерическая: глюкозо-6-фосфат активирует даже фосфорилированную синтазу, АМФ в мышце активирует фосфорилазу b, а в печени связывание глюкозы с фосфорилазой a открывает её для фосфатазы. Как гормоны делят между собой сытое и голодное состояние, разобрано в статье про инсулин и глюкагон.
Энергетическая цена запасания
Посчитаем на круглых числах. Остаток глюкозы в цепи весит 162 г/моль, поэтому 100 г гликогена - это около 617 ммоль остатков. Синтез требует двух макроэргических связей на остаток, то есть примерно 1,23 моль АТФ.
Возврат неполный, но щедрый. Фосфоролиз отдаёт сразу глюкозо-1-фосфат, у которого первое фосфорилирование уже оплачено: такой остаток даёт при полном окислении около 33 АТФ против 32 у свободной глюкозы, а в анаэробном гликолизе 3 против 2. Остатки из точек ветвления деветвящий фермент освобождает свободной глюкозой, и её приходится фосфорилировать заново. При доле ветвления 8 % чистый выход с наших 100 г составит около 19,1 моль АТФ, тогда как та же глюкоза без захода в запас дала бы около 19,8 моль. Хранение обошлось примерно в 3,4 % энергии - дёшево за возможность держать топливо наготове.
Частые ошибки
- Считать гликогенез обращённым гликогенолизом. Это разные ферменты, разные субстраты (УДФ-глюкоза против фосфата) и разная необратимость.
- Путать буквы форм. У фосфорилазы активна фосфорилированная форма a, у синтазы - дефосфорилированная форма a. Буква одинаковая, отношение к фосфату противоположное.
- Забывать про гликогенин и начинать схему сразу с синтазы: без затравки первая цепь не появится.
- Приписывать ветвящему ферменту образование -1,4-связей. Он ставит только -1,6 и переносит уже готовый блок.
- Ждать, что мышечный гликоген поднимет сахар крови. В мышце нет глюкозо-6-фосфатазы, её запас работает только на себя, поэтому и суперкомпенсация гликогена - сюжет про мышцу, а не про глюкозу крови.
FAQ
Зачем нужна УДФ-глюкоза, если есть глюкозо-1-фосфат? Присоединение глюкозо-1-фосфата к цепи энергетически невыгодно. Активация нуклеотидом поднимает потенциал переноса остатка, а гидролиз пирофосфата делает шаг необратимым, так что реакция идёт до конца.
Почему синтез и распад не идут одновременно? Оба фермента управляются одним каскадом с противоположным знаком: протеинкиназа А выключает синтазу и включает фосфорилазу, фосфатаза 1 делает обратное. Плюс аллостерические сигналы, которые тоже разводят состояния сытости и голода.
Сколько АТФ стоит запасти одну глюкозу? Две макроэргические связи: одна на фосфорилирование гексокиназой, вторая на регенерацию УТФ. При распаде фосфоролиз возвращает одну из них, поэтому чистая плата за хранение - около 3-4 % энергии молекулы.
Коротко
Гликогенез - это отдельная дорога из четырёх стадий: фосфорилирование глюкозы, изомеризация в глюкозо-1-фосфат, активация до УДФ-глюкозы и перенос остатка гликогенсинтазой на конец цепи, начатой гликогенином, с расстановкой ветвей трансглюкозидазой. Распад идёт другим ферментом и другим механизмом, и обе дороги необратимы, поэтому клетка переключает их одним каскадом в противоположных направлениях. Цена такой конструкции - две макроэргические связи на остаток, из которых фосфоролиз возвращает одну.
Читайте также
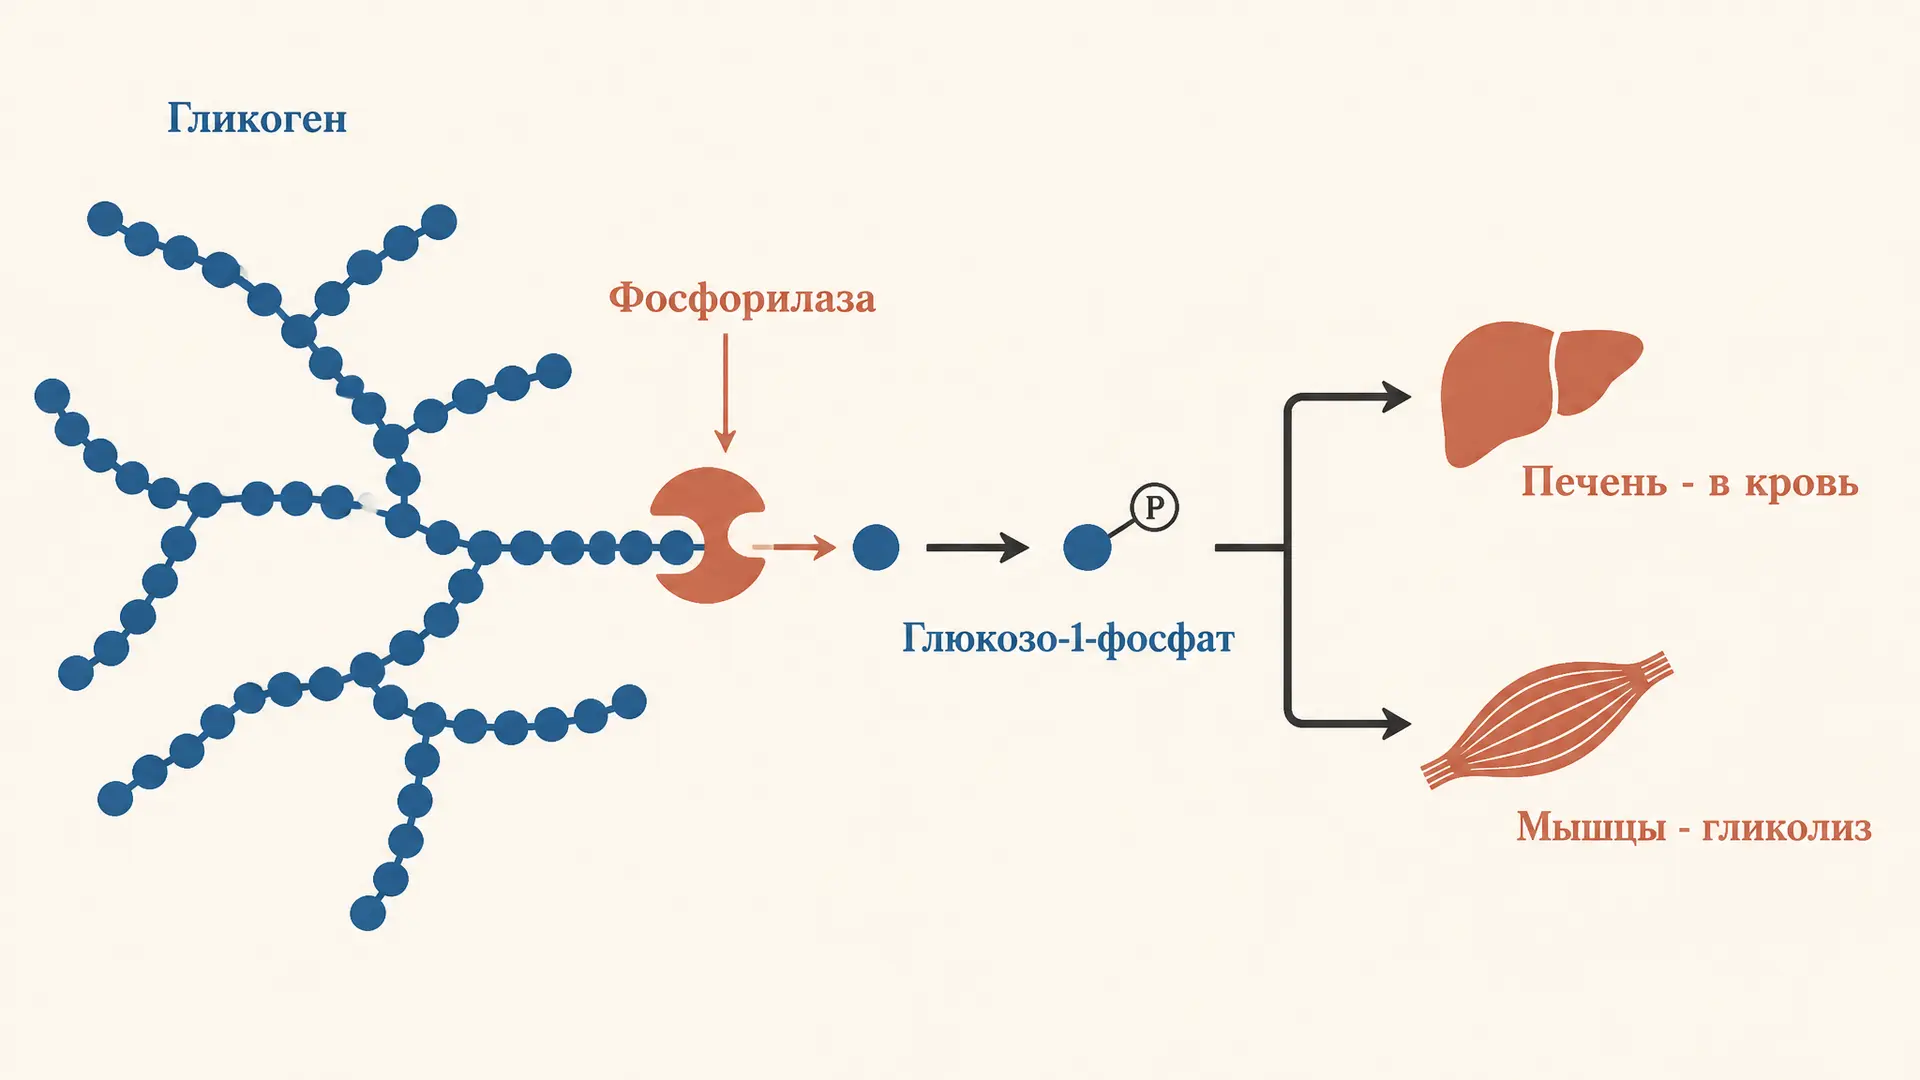
Гликогенолиз: распад гликогена и его регуляция
Гликогенолиз - ферментативный распад гликогена до глюкозы: механизм реакций фосфорилазы, роль гормонов адреналина и глюкагона, аллостерическая и ковалентная регуляция процесса.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Азотистый баланс: расчёт, нормы и значение
Азотистый баланс: как вычислить поступление и выведение азота, отличить положительный баланс от отрицательного, оценить белок и незаменимые аминокислоты.
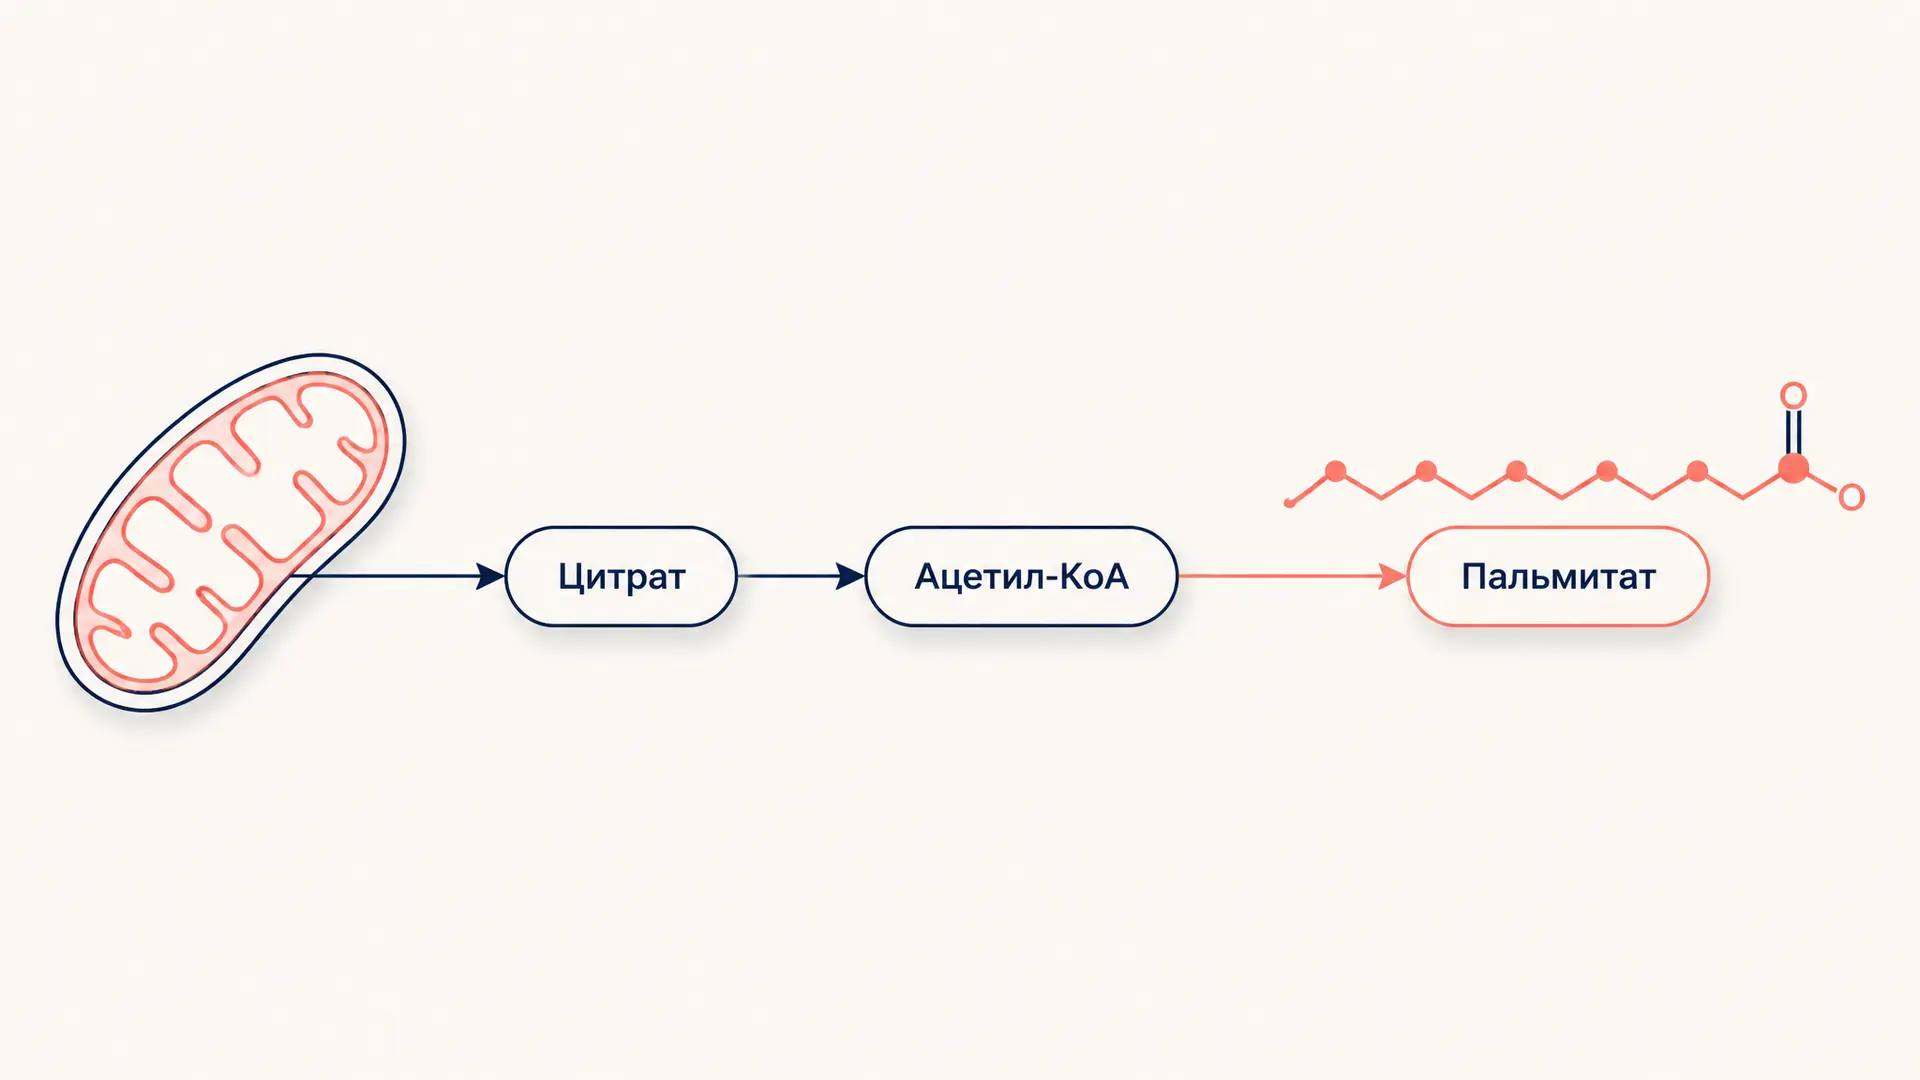
Биосинтез жирных кислот: синтез пальмитата
Биосинтез жирных кислот в цитоплазме: цитратный челнок, ацетил-КоА-карбоксилаза, семь циклов синтазы, расход АТФ и НАДФН, регуляция липогенеза и сравнение с бета-окислением.
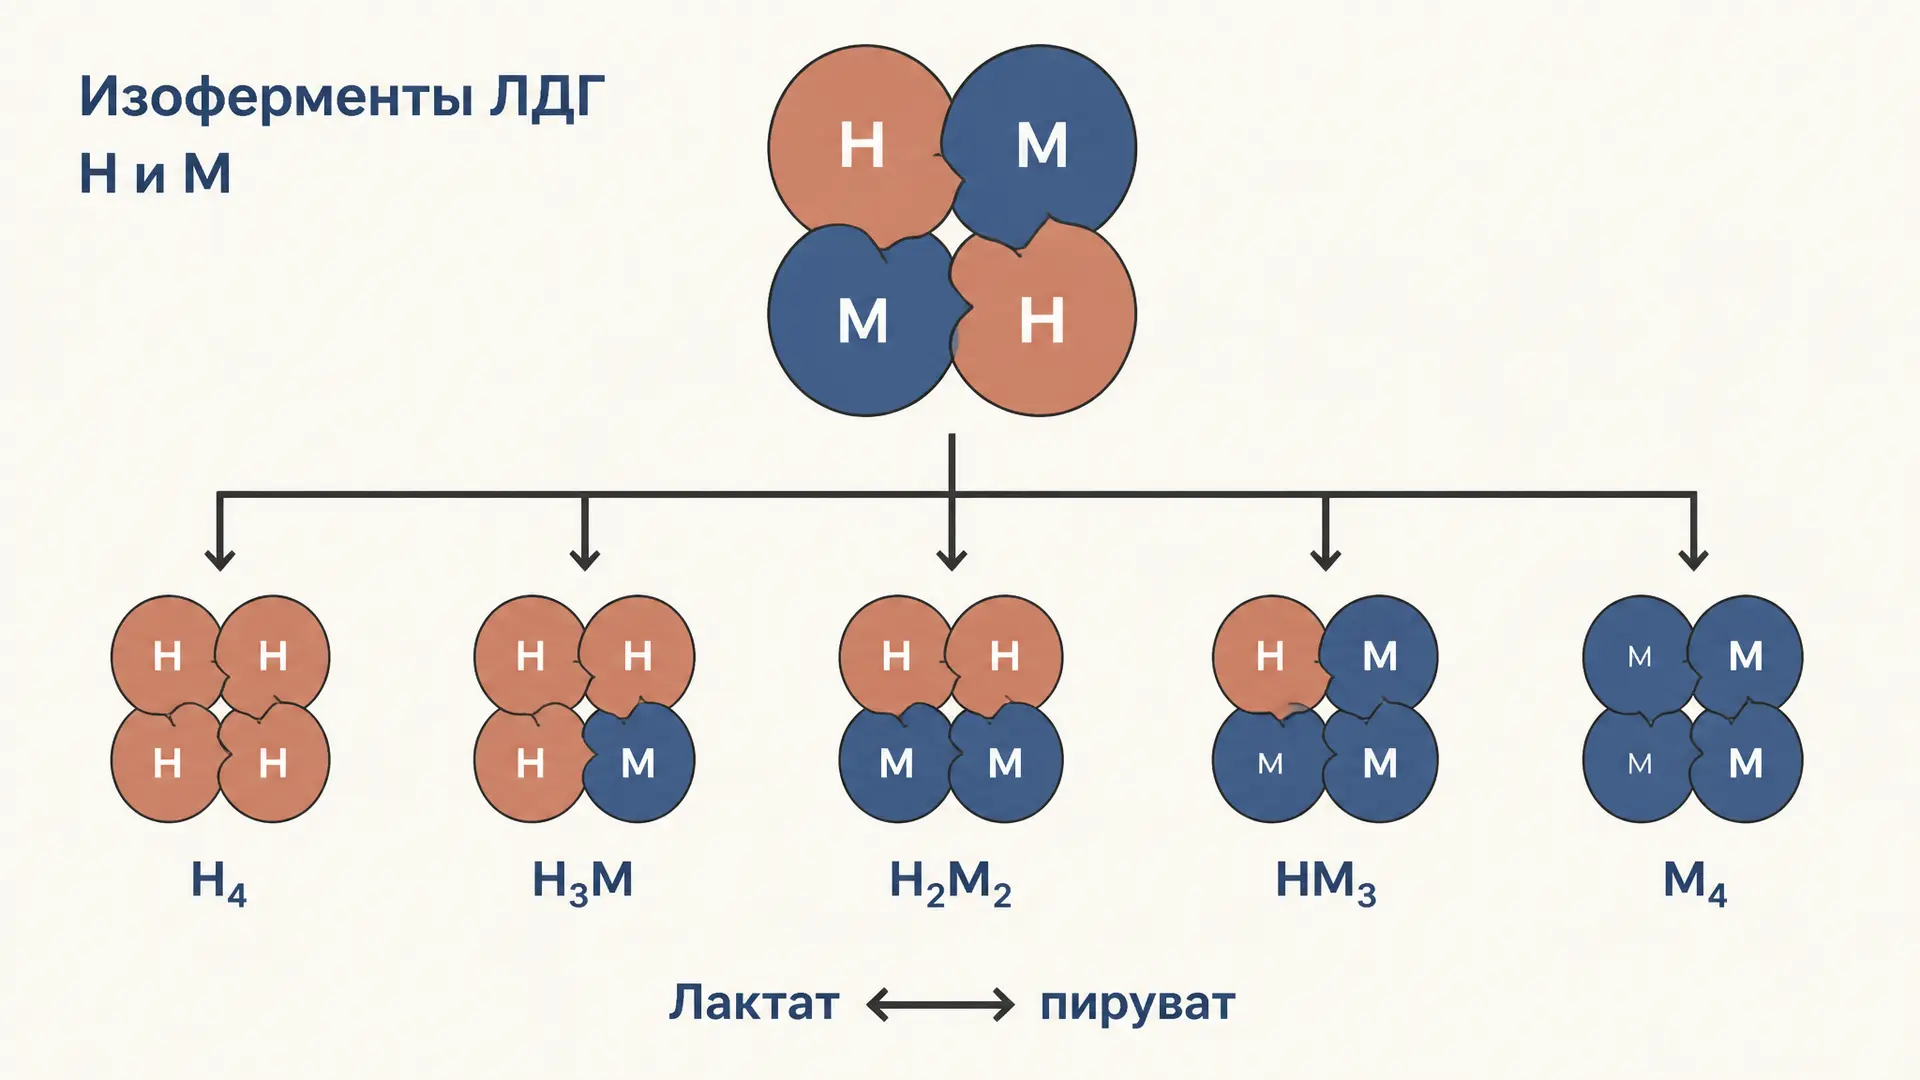
Изоферменты ЛДГ: формы, функции и диагностика
Изоферменты ЛДГ: как субъединицы H и M образуют пять тетрамеров, почему их разделяют электрофорезом и как профиль фракций связывают с тканевым происхождением.
Макроэргические соединения: энергия гидролиза
Макроэргические соединения: почему гидролиз АТФ выгоден, чем ПЭП сильнее АТФ, как работают креатинфосфат, тиоэфиры, фосфорильный потенциал и сопряжение реакций.