Цикл Кальвина: фиксация углерода по трём фазам
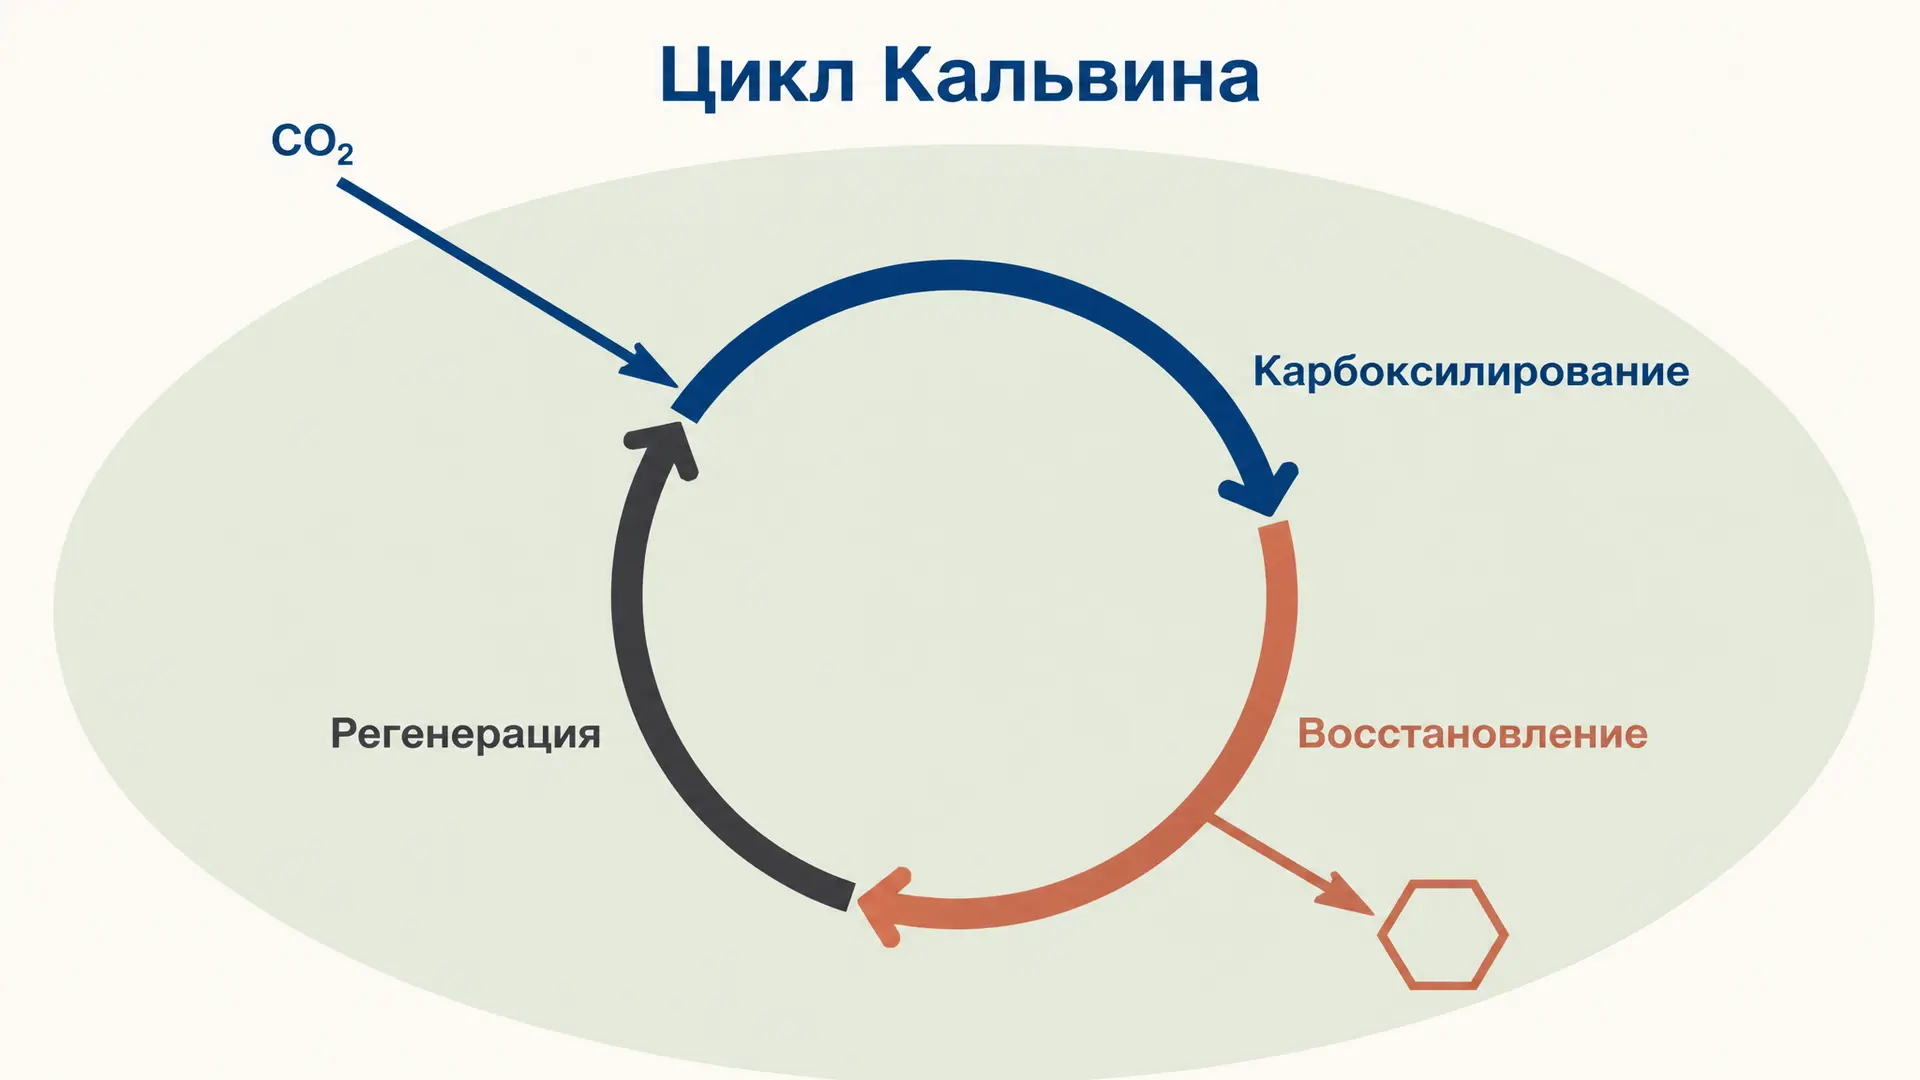
Цикл Кальвина - та часть фотосинтеза, где углерод из воздуха впервые становится частью органической молекулы. Свет к этому моменту уже сделал свою работу: в мембранах тилакоидов запасены АТФ и НАДФН, а в строме хлоропласта их расходует конвейер из 11 ферментов и 13 реакций. Каждый оборот цикла забирает одну молекулу , и за этим стоит строгая бухгалтерия: сколько атомов углерода вошло, сколько вышло и во что обошлась каждая триоза. Счётчик ниже сводит этот баланс для любого числа оборотов.
Где и зачем идёт цикл Кальвина
Цикл работает в строме - жидком содержимом хлоропласта вокруг тилакоидов. Как устроены сами тилакоиды и граны и почему световая и темновая стадии разнесены по разным отсекам, подробно разобрано в статье о строении хлоропласта. Здесь важно одно: цикл Кальвина потребляет то, что производит световая стадия, и сам свет не поглощает.
У цикла несколько имён. В учебниках его называют темновой фазой фотосинтеза, C3-путём (первый устойчивый продукт содержит три атома углерода) или восстановительным пентозофосфатным циклом. В научной литературе всё чаще пишут «цикл Кальвина-Бенсона-Бэсшема» - по фамилиям трёх исследователей, которые его расшифровали. Задача цикла - превратить неорганический углерод в триозофосфат, из которого клетка затем строит сахарозу, крахмал, аминокислоты и липиды. Фиксация углерода идёт в три фазы.
Фаза 1: карбоксилирование и РуБисКО
Первая реакция - присоединение к пятиуглеродному акцептору рибулозо-1,5-бисфосфату (РуБФ). Катализирует её фермент рибулозобисфосфаткарбоксилаза/оксигеназа, сокращённо РуБисКО. Промежуточное шестиуглеродное соединение нестабильно и сразу распадается на две молекулы 3-фосфоглицериновой кислоты (3-ФГК):
РуБисКО - самый распространённый белок на Земле: он составляет до половины растворимого белка листа. Причина такого количества в медлительности фермента. Один активный центр проводит от одного до десяти актов катализа в секунду, у многих C3-растений около трёх, тогда как обычные ферменты обмена веществ работают в тысячи раз быстрее. Растению приходится брать числом.
Чтобы работать, РуБисКО должна быть активирована: молекула (не та, что будет зафиксирована, а отдельная) присоединяется к остатку лизина в активном центре, затем туда встаёт ион . Этот шаг поддерживает специальный белок - активаза РуБисКО.
Фаза 2: восстановление 3-ФГК
3-ФГК - кислота, и для синтеза сахаров её нужно восстановить до альдегида. Это делается в два шага. Сначала фосфоглицераткиназа переносит фосфат с АТФ и образует 1,3-бисфосфоглицерат. Затем НАДФ-зависимая глицеральдегид-3-фосфатдегидрогеназа восстанавливает его за счёт НАДФН до глицеральдегид-3-фосфата (Г3Ф).
На каждую молекулу 3-ФГК уходит одна АТФ и одна НАДФН. Поскольку один оборот цикла даёт две 3-ФГК, на фиксацию одной молекулы в этой фазе тратится 2 АТФ и 2 НАДФН. Именно здесь расходуется весь восстановитель, накопленный светом, - в других фазах НАДФН не нужен.
Фаза 3: регенерация РуБФ
Если бы весь Г3Ф уходил из цикла, акцептор закончился бы через несколько оборотов. Поэтому большая часть триоз возвращается на восстановление РуБФ. Цепочка перестроек углеродного скелета (альдолаза, транскетолаза, фосфатазы фруктозо- и седогептулозобисфосфата, изомераза и эпимераза) собирает из пяти трёхуглеродных молекул три пятиуглеродных - рибулозо-5-фосфат. Последний шаг делает фосфорибулокиназа: она фосфорилирует рибулозо-5-фосфат за счёт АТФ и снова даёт РуБФ.
Здесь нет восстановления, только перегруппировка атомов углерода и одна АТФ на каждую вновь собранную молекулу акцептора.
Баланс: 3 CO2, одна триоза, 9 АТФ и 6 НАДФН
Самый частый вопрос на экзамене - почему для одной триозы нужно именно три оборота. Проследим атомы углерода. Три молекулы РуБФ несут 15 атомов C, три молекулы добавляют ещё 3. Получается шесть 3-ФГК, то есть 18 атомов, и после восстановления шесть Г3Ф. Одна триоза (3 атома) выходит из цикла, пять (15 атомов) снова собираются в три РуБФ. Цикл замкнулся, чистый выход - ровно одна трёхуглеродная молекула.
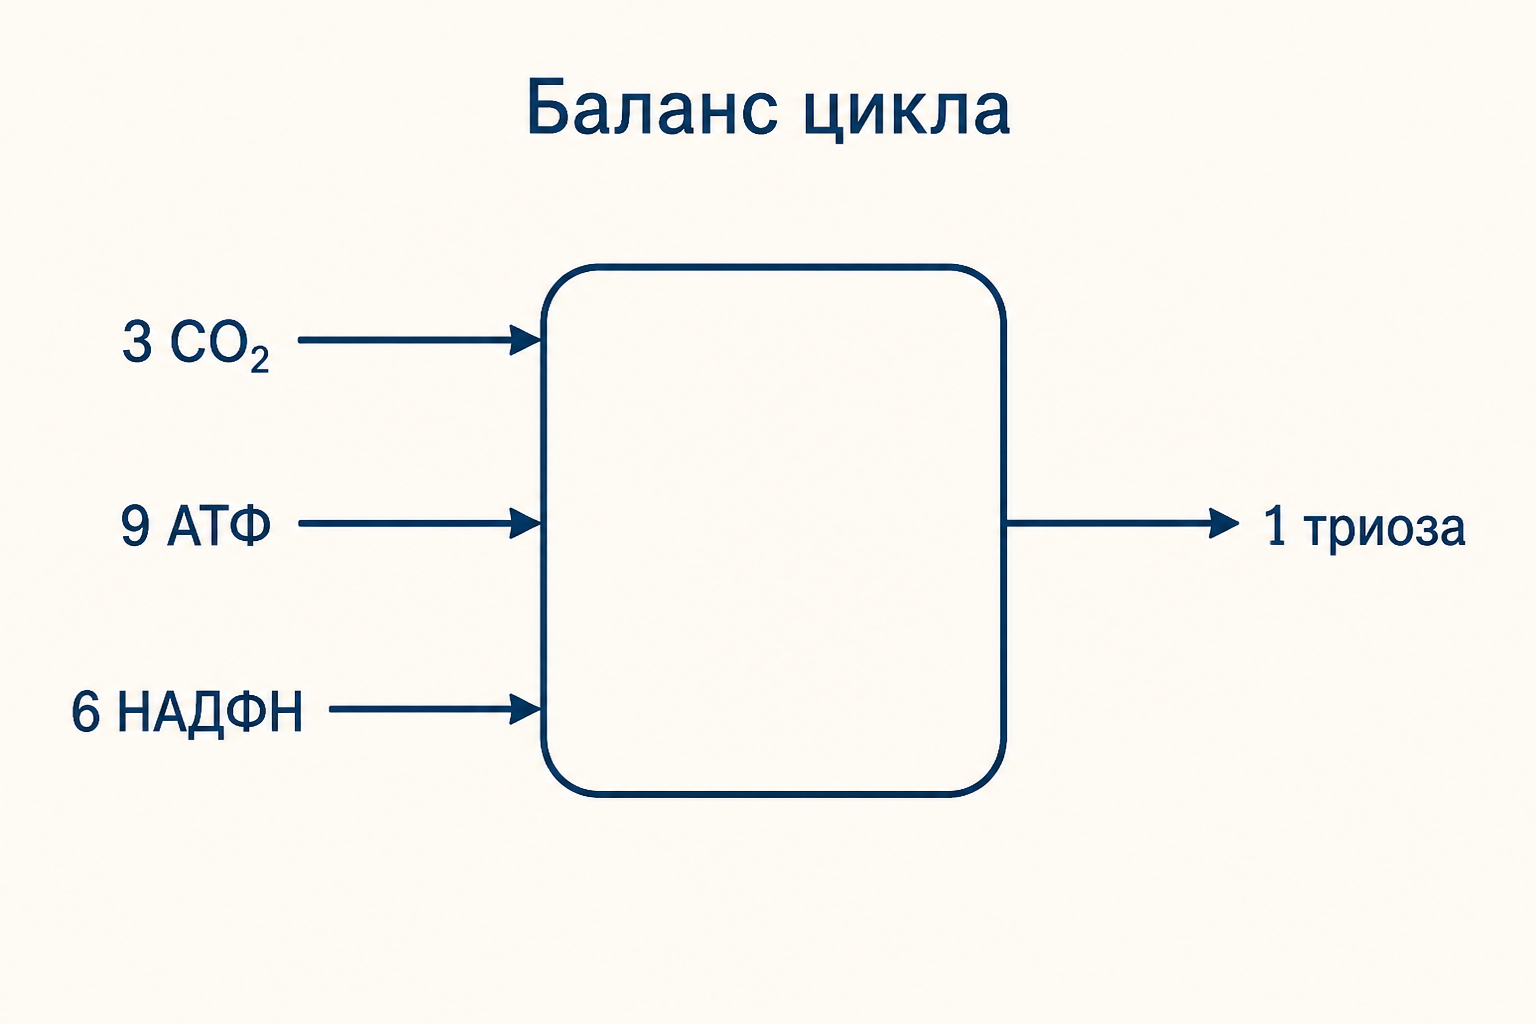
Энергия считается так же. Восстановление: 6 АТФ и 6 НАДФН на шесть 3-ФГК. Регенерация: 3 АТФ на три РуБФ. Итоговое уравнение:
На одну гексозу (шесть оборотов) это 18 АТФ и 12 НАДФН. Соотношение АТФ к НАДФН всегда 3 : 2. Нециклический транспорт электронов даёт АТФ немного меньше, и недостаток восполняет циклический поток вокруг фотосистемы I - как это устроено, объясняет статья про циклическое и нециклическое фотофосфорилирование.
Выведенная триоза идёт двумя путями. Днём её обменивают на неорганический фосфат через триозофосфатный переносчик внутренней мембраны, и в цитозоле из неё строится сахароза для транспорта по растению. Избыток остаётся в строме и откладывается как крахмал.
Фотодыхание: когда РуБисКО берёт кислород
Второе слово в названии фермента - «оксигеназа» - не случайно. Активный центр РуБисКО плохо отличает от , а кислорода в воздухе примерно в 500 раз больше. При присоединении кислорода вместо двух 3-ФГК получаются одна 3-ФГК и двухуглеродный 2-фосфогликолат, который в цикл не входит и тормозит некоторые его ферменты.
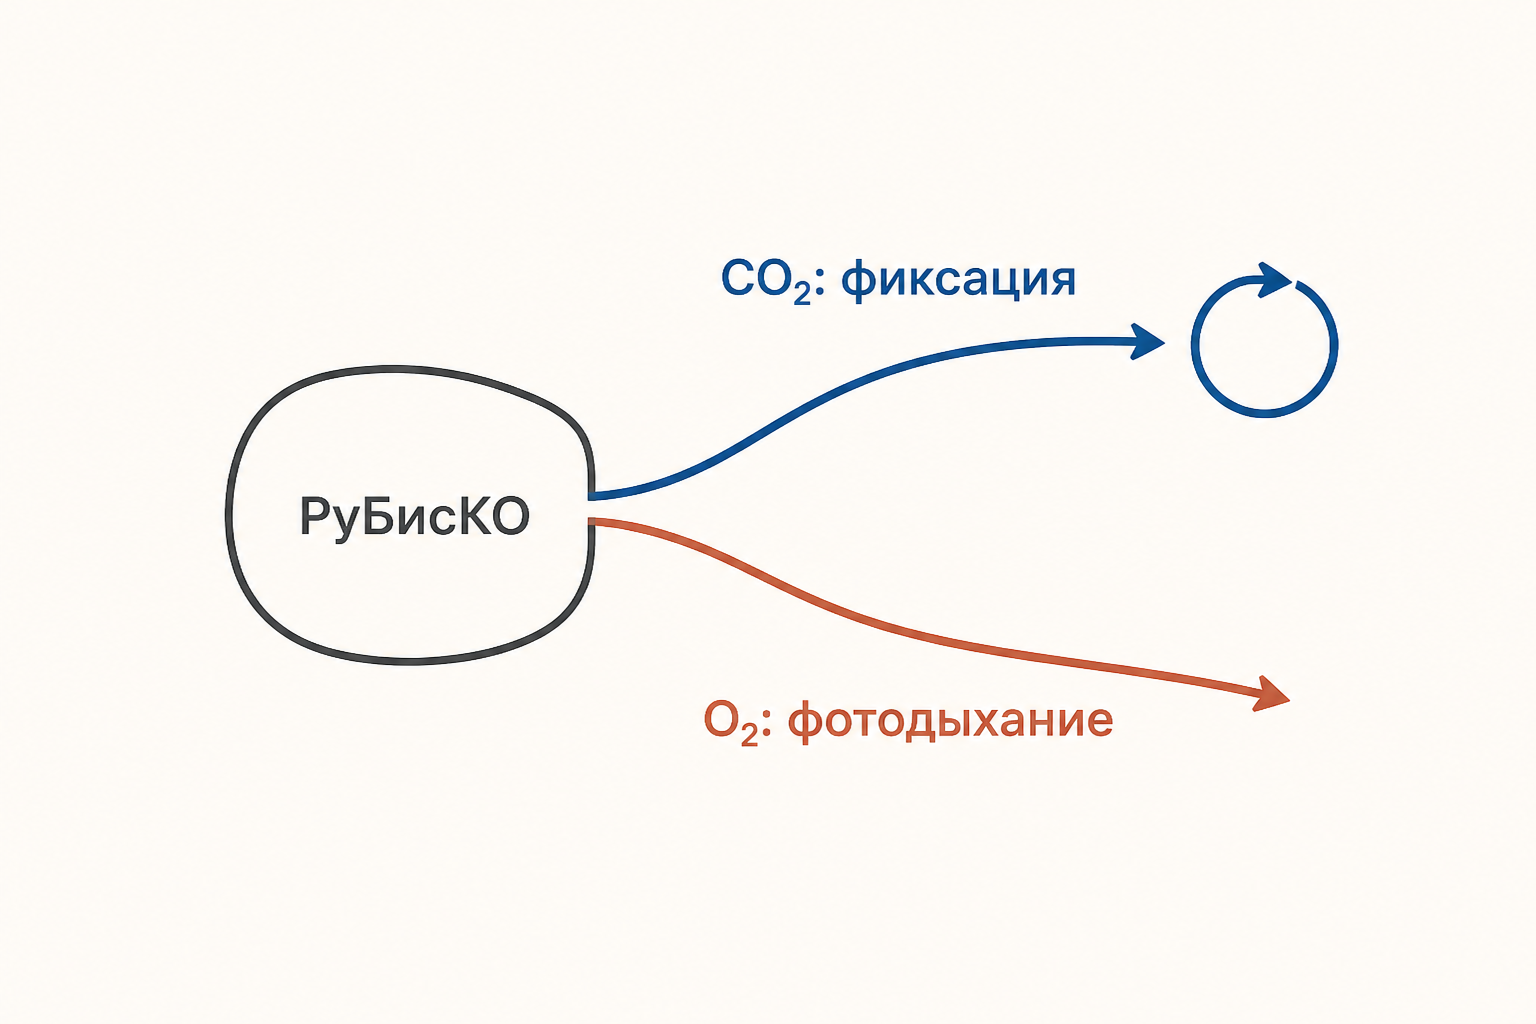
Фосфогликолат спасает отдельный путь, который проходит через три органеллы: хлоропласт, пероксисому и митохондрию. Из двух молекул фосфогликолата (4 атома C) обратно в цикл возвращается одна 3-ФГК (3 атома), а один атом уходит как . Вдобавок выделяется аммиак, повторная фиксация которого стоит АТФ и восстановителя. Этот процесс и называют фотодыханием.
При 25 °C на три-четыре карбоксилирования приходится примерно одна оксигенация, а с ростом температуры доля оксигенации растёт: растворимость падает быстрее, чем растворимость кислорода. В жару при закрытых устьицах фотодыхание съедает заметную часть фиксированного углерода. C4- и CAM-растения обходят это концентрированием вокруг РуБисКО; механизм насоса описан в статье про цикл Хэтча-Слэка, а о том, как фотодыхание снижает квантовый выход, - в материале про квантовый выход фотосинтеза.
Регуляция светом: тиоредоксин и строма
«Темновая» фаза в темноте не идёт: ключевые ферменты цикла выключаются через несколько минут после захода света. Растению это нужно, чтобы ночью цикл не крутился вхолостую навстречу окислительному пентозофосфатному пути, сжигая запасы.
Главный переключатель - ферредоксин-тиоредоксиновая система. На свету фотосистема I восстанавливает ферредоксин, тот через ферредоксин-тиоредоксинредуктазу восстанавливает небольшой белок тиоредоксин, а тиоредоксин разрывает дисульфидные мостики в регулируемых ферментах. Так включаются фруктозо-1,6-бисфосфатаза, седогептулозо-1,7-бисфосфатаза, фосфорибулокиназа и НАДФ-зависимая Г3Ф-дегидрогеназа. В темноте мостики снова замыкаются окислением, и ферменты засыпают.
Второй сигнал - состав стромы. На свету протоны перекачиваются в люмен тилакоида, pH стромы поднимается примерно с 7 до 8, а в строму выходят ионы . Щелочная среда и магний нужны и для активации РуБисКО, и для работы фосфатаз. У некоторых растений, например у фасоли, в темноте РуБисКО дополнительно блокирует ночной ингибитор, который снимает активаза.
Как открыли цикл: Кальвин, Бенсон, Бэсшем
Расшифровка цикла стала возможной благодаря радиоактивному изотопу углерода-14, открытому в 1940 году. После войны в Радиационной лаборатории в Беркли группа Мелвина Кальвина, в которую входили Эндрю Бенсон и Джеймс Бэсшем, начала серию опытов с одноклеточной водорослью хлореллой.
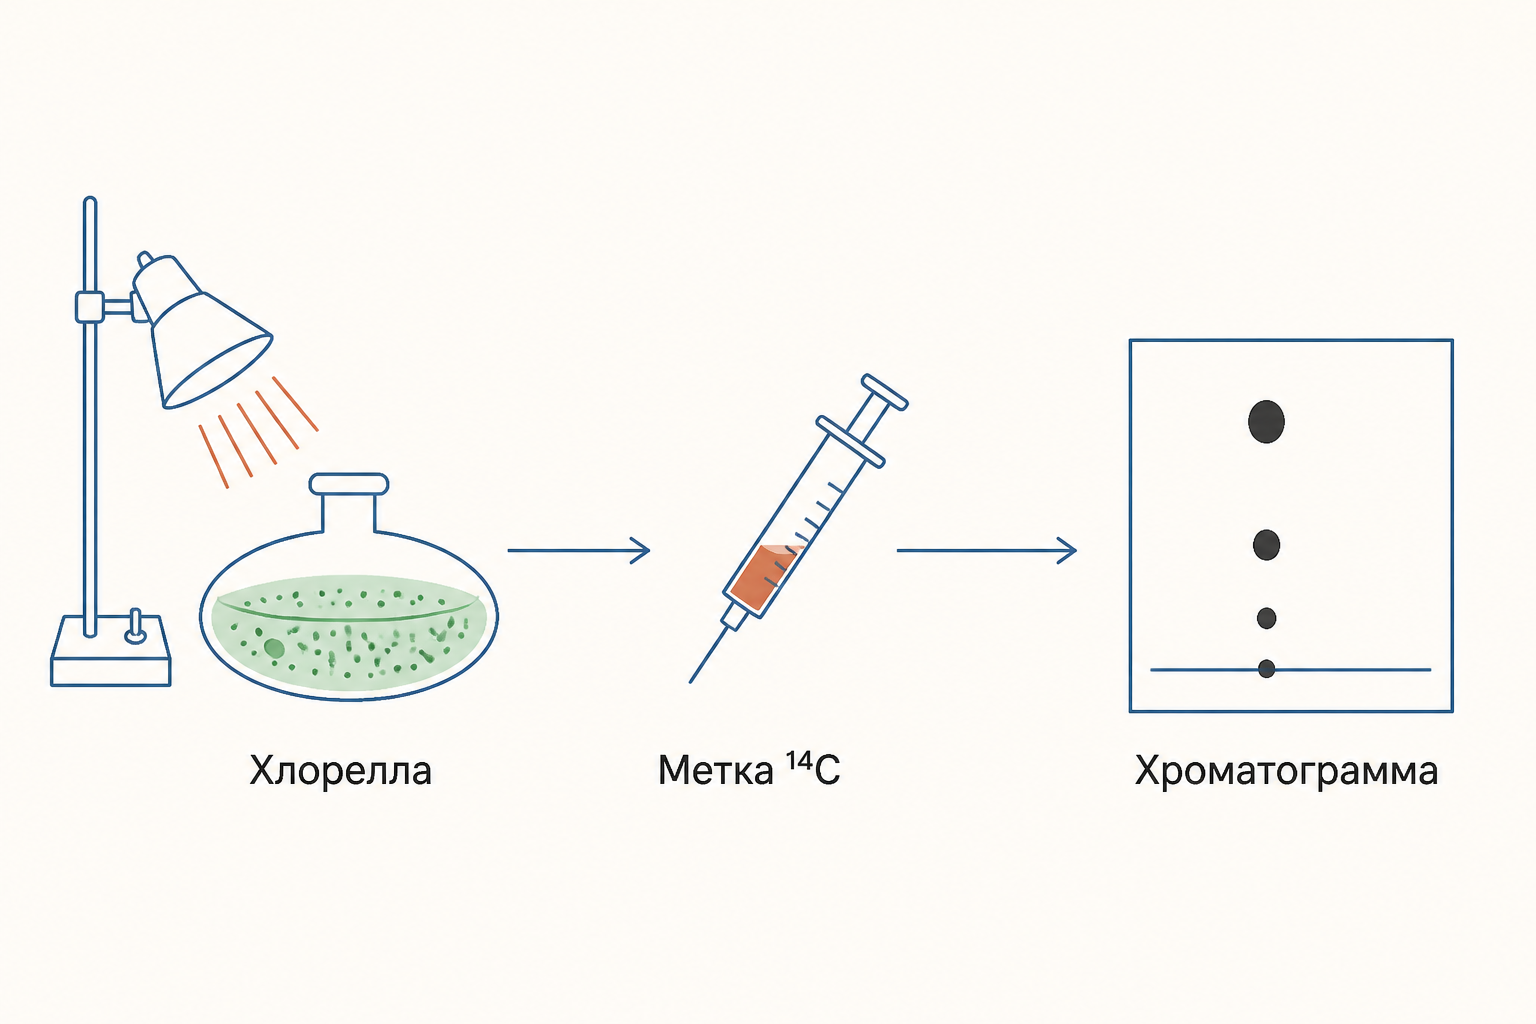
Суспензию водорослей держали на свету в плоской колбе, которую за форму прозвали «леденцом». Затем вводили меченый и через заданное число секунд сливали клетки в кипящий спирт, мгновенно останавливая реакции. Экстракт разделяли двумерной бумажной хроматографией, а пятна находили по засвечиванию рентгеновской плёнки. При экспозиции около пяти секунд почти вся метка оказывалась в 3-ФГК, при более долгой расходилась по сахарофосфатам. Акцептор нашли, резко выключая свет или снижая подачу : без света пул 3-ФГК рос, а РуБФ убывал, без углекислого газа картина была обратной.
Работа заняла около десяти лет. В 1961 году Кальвин получил Нобелевскую премию по химии за исследование ассимиляции углекислого газа растениями - один, без соавторов. Поэтому современное название с тремя фамилиями - ещё и восстановление справедливости.
Частые ошибки
- «Темновая фаза идёт ночью». Нет, цикл работает днём одновременно со световой стадией, а в темноте его ферменты отключаются через тиоредоксин.
- «Продукт цикла - глюкоза». Непосредственный продукт - триозофосфат Г3Ф. Глюкоза - лишь удобный эквивалент для подсчёта: шесть оборотов.
- «Один оборот даёт одну триозу». Один оборот фиксирует одну ; чистая триоза получается за три оборота.
- «CO2 присоединяется к трёхуглеродному соединению». Акцептор - пятиуглеродный РуБФ, а три углерода содержит уже продукт реакции.
- «АТФ и НАДФН тратятся поровну». На 3 нужно 9 АТФ и 6 НАДФН, соотношение 3 : 2.
FAQ
Почему цикл Кальвина называют C3-путём? Потому что первый устойчивый продукт фиксации углерода - 3-ФГК - содержит три атома углерода. У C4-растений первым продуктом становится четырёхуглеродная кислота.
Сколько оборотов цикла нужно для одной молекулы глюкозы? Шесть: шесть молекул дают две триозы, из которых собирается гексоза. Цена - 18 АТФ и 12 НАДФН.
Есть ли цикл Кальвина у C4-растений? Есть, но только в клетках обкладки проводящих пучков. C4-путь лишь подаёт туда концентрированный , а фиксация в сахар всё равно идёт через РуБисКО.
Коротко
Цикл Кальвина фиксирует углерод в строме хлоропласта за три фазы. РуБисКО присоединяет к РуБФ и даёт две 3-ФГК, затем они восстанавливаются до Г3Ф за счёт АТФ и НАДФН, а большая часть Г3Ф уходит на регенерацию акцептора. Баланс строгий: 3 дают одну триозу ценой 9 АТФ и 6 НАДФН. Слабое место цикла - оксигеназная активность РуБисКО, запускающая фотодыхание. Включают цикл свет через тиоредоксин, рост pH и магний в строме. Путь углерода расшифровали Кальвин, Бенсон и Бэсшем с помощью метки , а Нобелевскую премию 1961 года получил Кальвин.
Читайте также
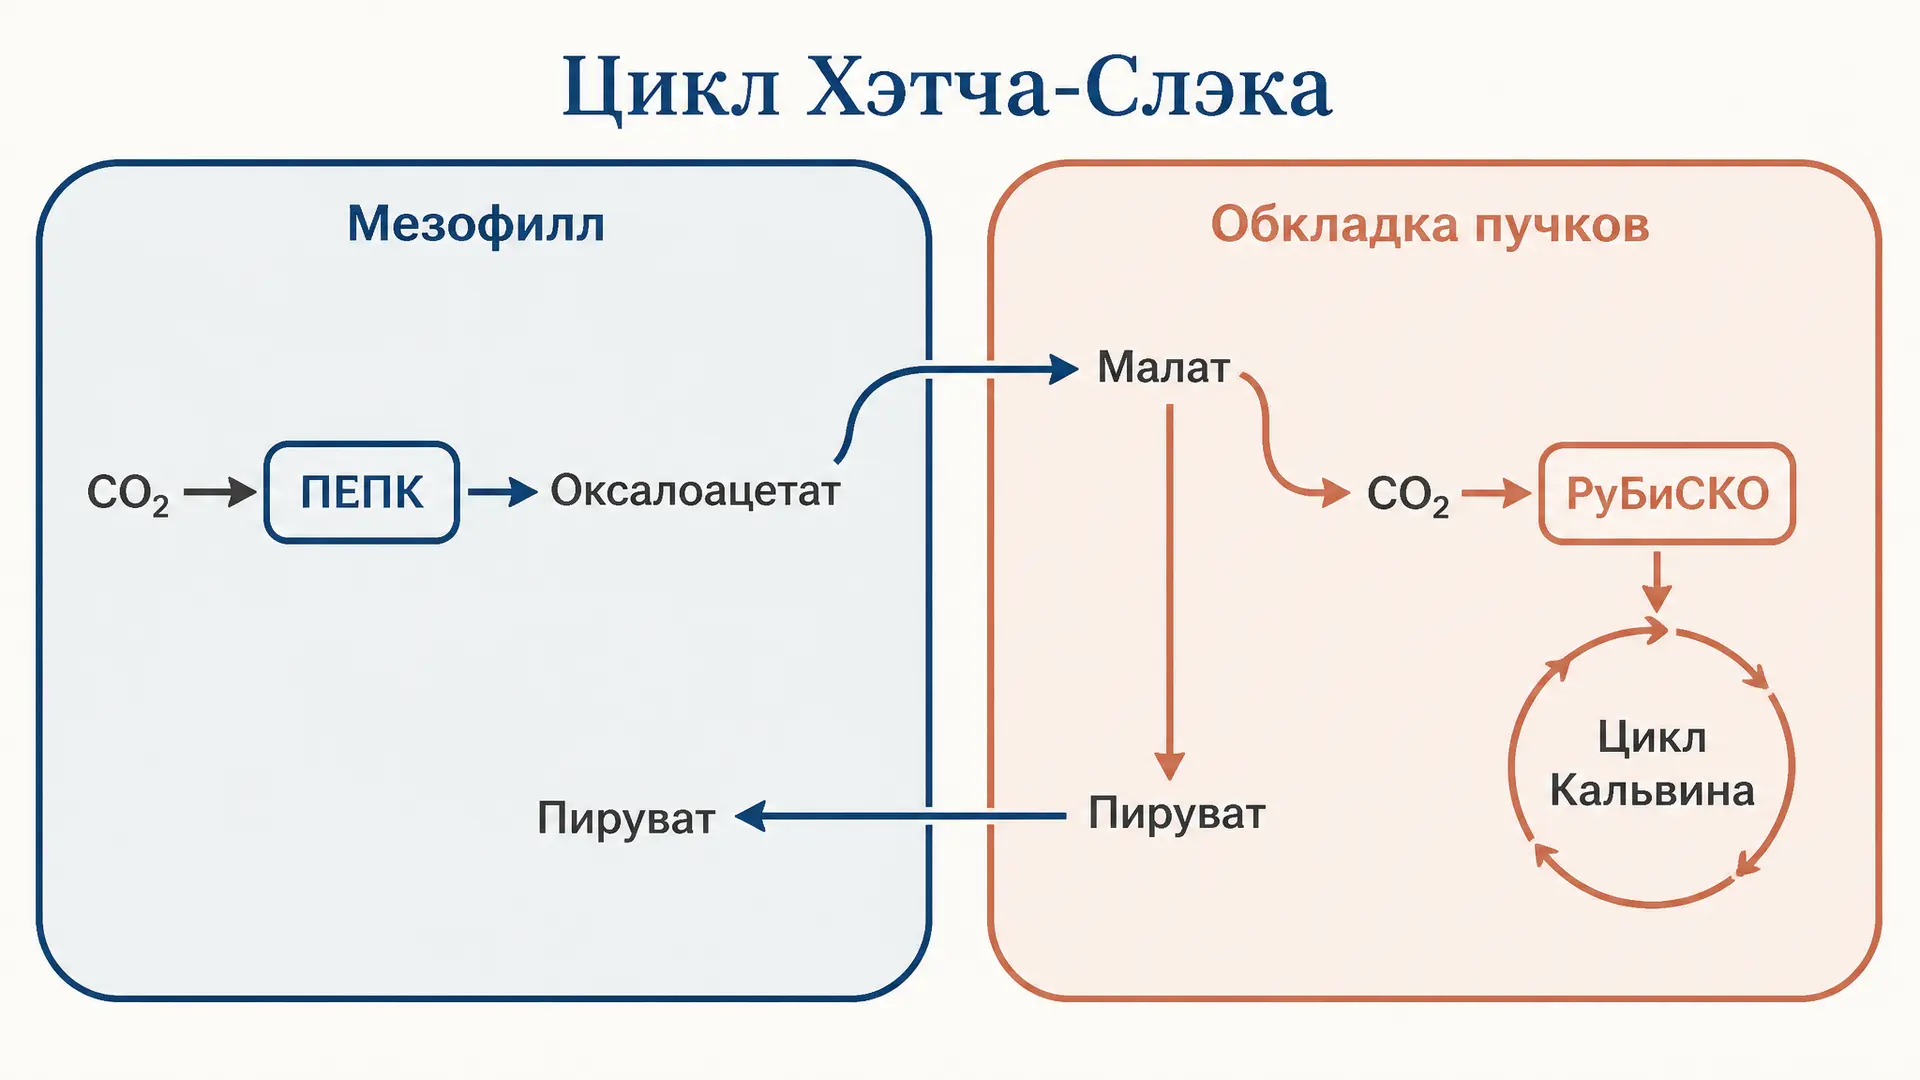
Цикл Хэтча-Слэка: C4-фотосинтез и концентрирование CO2
Цикл Хэтча-Слэка - механизм C4-фотосинтеза, двухэтапная фиксация CO2 в мезофиле и обкладке пучков, адаптация к жаре и засухе у кукурузы и сахарного тростника.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
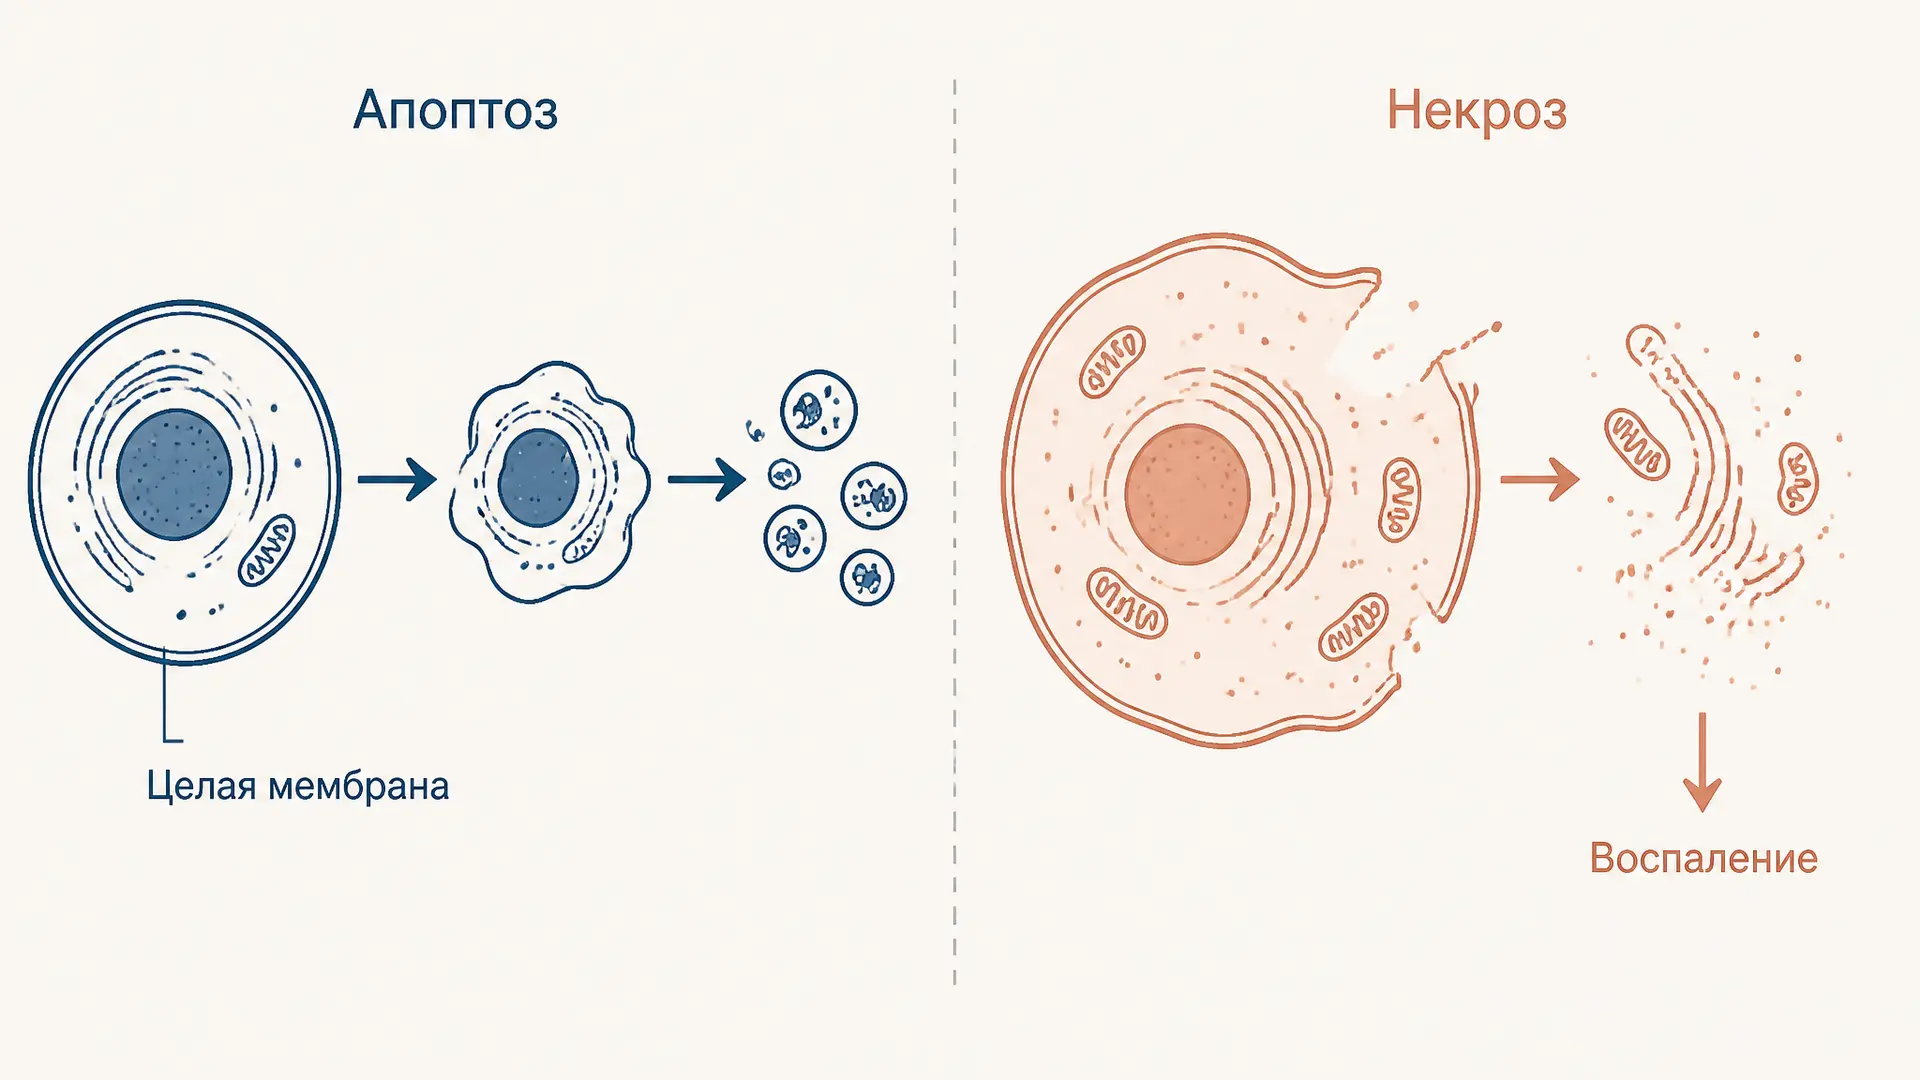
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.