Время удвоения клеток: формула и расчёт
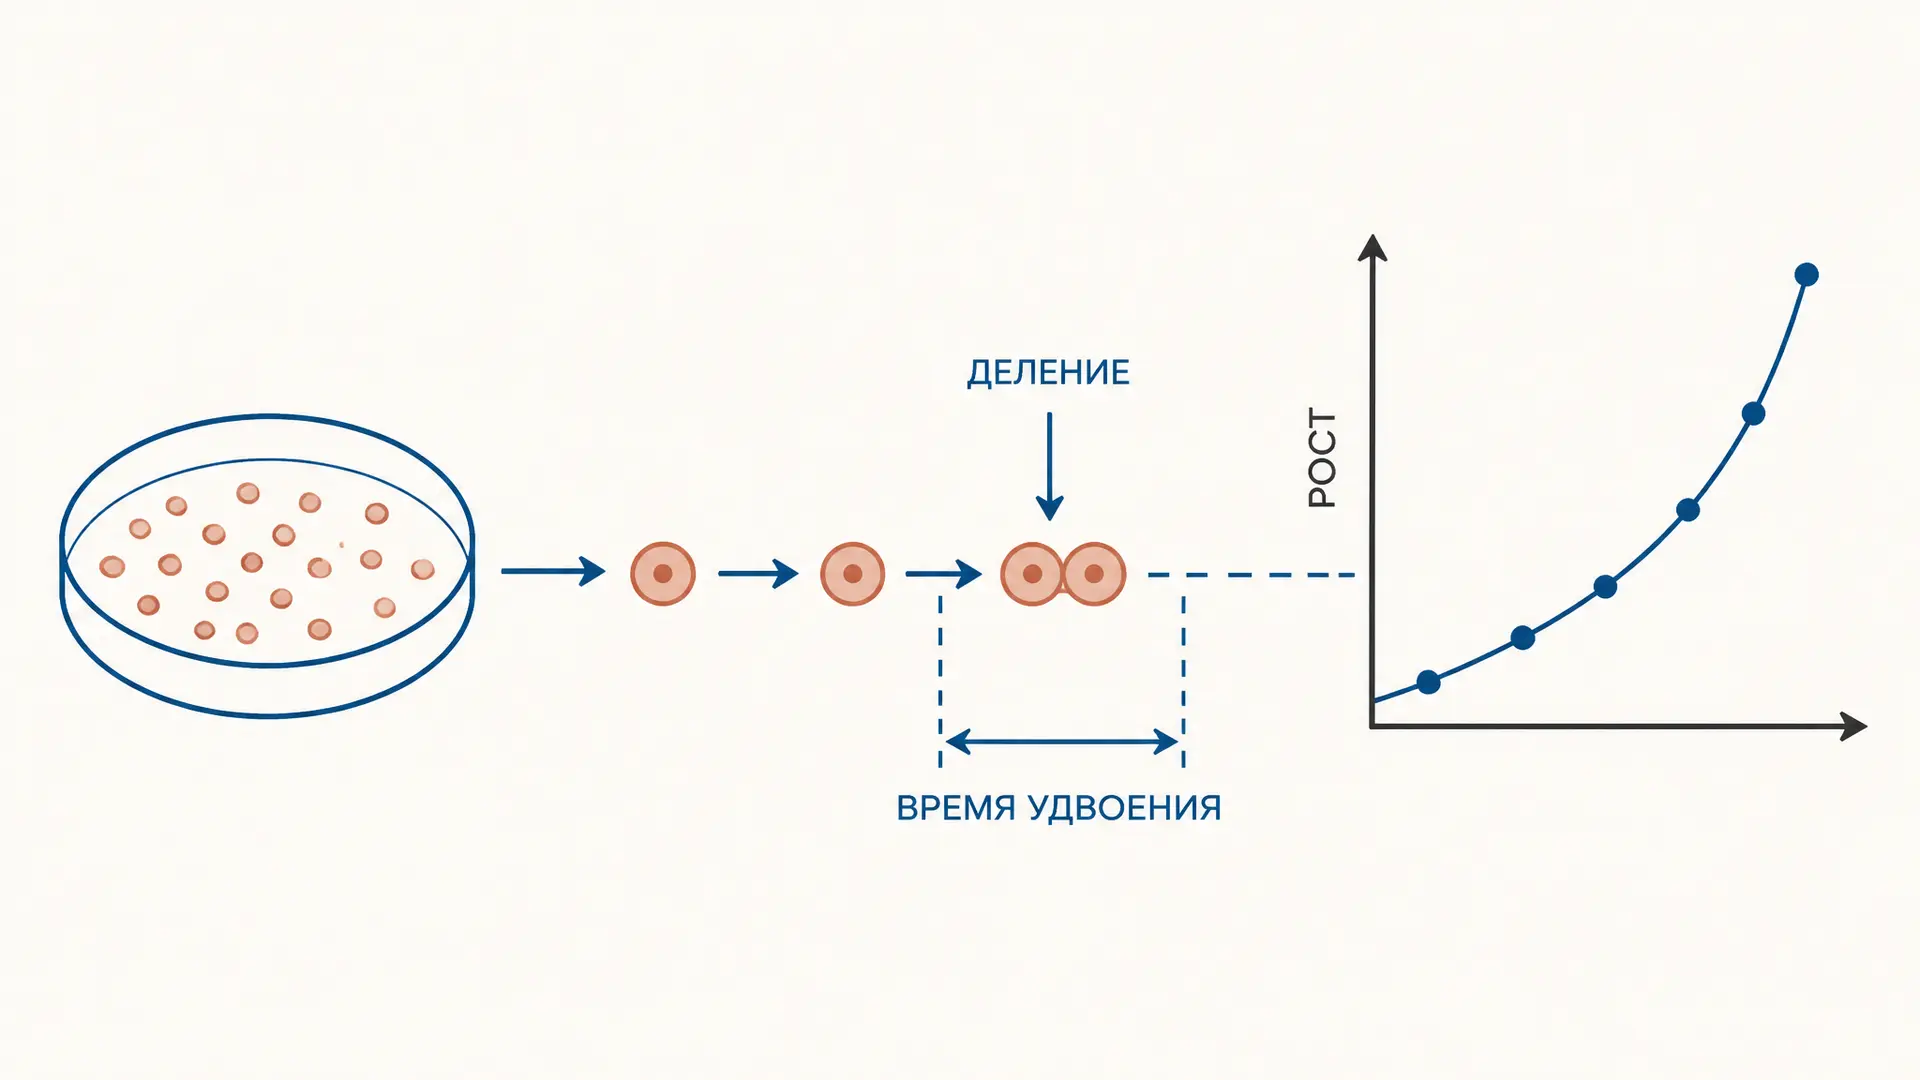
Время удвоения, или generation time, отвечает на простой вопрос: за какой интервал популяция клеток становится в два раза больше. Для бактерий это характеристика условий культивирования, для клеточной культуры - ориентир при планировании пассажа, а в онкологии - один из показателей динамики образования. Важно не смешивать его с «возрастом» отдельной клетки: это параметр прироста всей измеряемой популяции на участке, где её рост действительно близок к экспоненциальному. Ниже выведем формулу по двум замерам, разберём рост бактерий по фазам и увидим, почему один и тот же расчёт нельзя механически переносить на любую кривую.
Что именно называют временем удвоения
Пусть в момент есть клеток. Если каждая генерация удваивает численность и условия не меняются, то после поколений будет клеток. Если одно поколение длится , то за время проходит поколений. Поэтому модель записывают так:
Здесь - время удвоения, - число клеток в момент , а - исходное число. Формула не утверждает, что клетки делятся синхронно: в реальной культуре события распределены во времени. Она описывает итоговую численность, когда средний темп прироста постоянен. В непрерывной записи ту же идею выражает уравнение , где - удельная скорость роста. Связь параметров: .
Экспонента хорошо описывает только участок без заметного дефицита ресурсов и без сильной гибели клеток. Именно такой ранний участок является частным случаем модели Мальтуса экспоненциального роста. Если же плотность меняет доступ к питанию или пространству, темп уже не постоянен: тогда полезнее рассматривать логистическую модель роста популяции Ферхюльста, а не приписывать всей кривой одно .
Как вывести формулу по двум измерениям
Обычно известны две точки: в начале наблюдения и через время . Подставим вторую точку в модель:
Логарифмируем обе части. Можно пользоваться логарифмом по основанию 2, но натуральный логарифм чаще удобнее в расчётах:
У формулы есть простая проверка здравого смысла. Если численность ровно удвоилась, , числитель и знаменатель одинаковы, значит . Если отношение равно 8, это три удвоения, потому что ; тогда . При положительное время удвоения этой моделью не находят: популяция не росла экспоненциально, либо измерения относятся к фазе плато или снижения.
Пример расчёта: от 150 тысяч до 1,2 миллиона
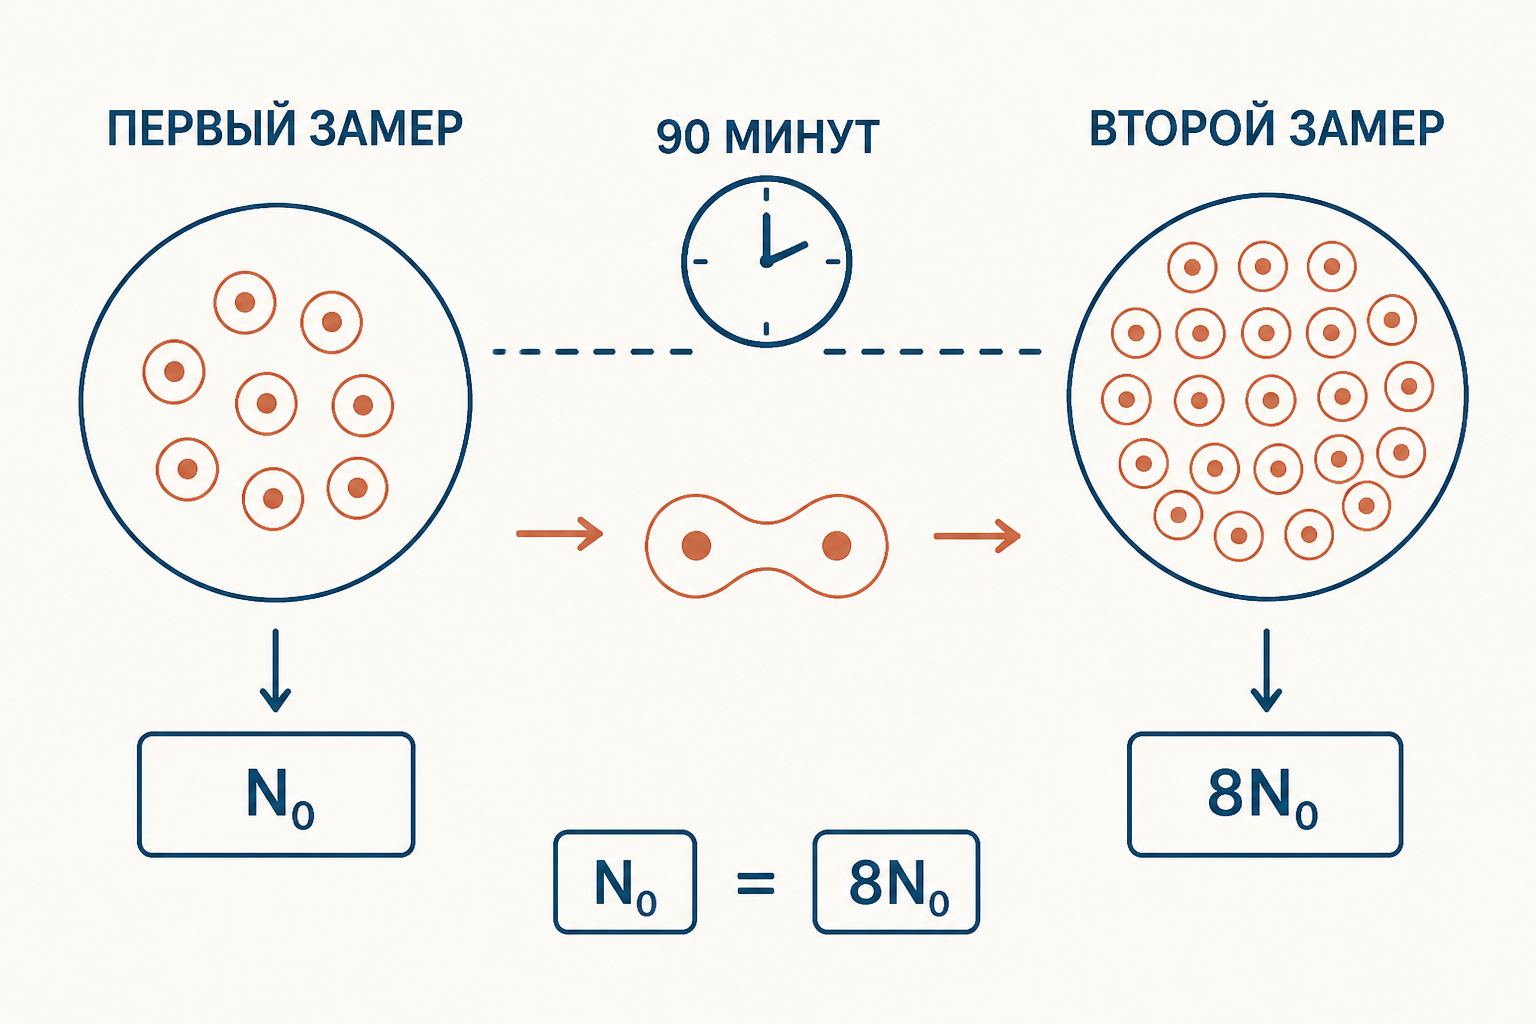
Пусть в лог-фазе культуры в начале насчитали клеток, а через 90 минут - . Сначала найдём отношение: . Подставляем числа:
За 90 минут прошло три генерации: . Этот пример учебный: он специально выбран так, чтобы отношение было точной степенью двойки. В реальных данных число поколений чаще дробное; например, при отношении 5 расчёт всё равно корректен, если точки взяты из экспоненциального участка и измерены одной методикой.
| Время от старта | Численность в модели | Число удвоений |
|---|---|---|
| 0 мин | 150 000 | 0 |
| 30 мин | 300 000 | 1 |
| 60 мин | 600 000 | 2 |
| 90 мин | 1 200 000 | 3 |
Не округляйте промежуточный результат слишком рано. Если клетки считают в камере или оценивают оптическую плотность, повторные измерения и график от времени надёжнее одной пары точек: прямой участок показывает, что допущение о постоянной хотя бы приблизительно выполнено. Оптическая плотность сама по себе не всегда равна числу жизнеспособных клеток, особенно при высокой плотности; метод измерения и его линейный диапазон нужно фиксировать.
Четыре фазы роста бактерий
Классическая кривая периодической культуры имеет четыре участка. Лаг-фаза начинается после переноса в свежую среду: клетки приспосабливаются, меняют метаболизм и могут увеличиваться, но численность ещё растёт медленно. Затем наступает логарифмическая, или экспоненциальная, фаза. Здесь прирост наиболее регулярный, и именно здесь измеряют .
В стационарной фазе питательные вещества истощаются, накапливаются продукты обмена, а число новых клеток в среднем уравновешивается потерями. Наконец, в фазе отмирания жизнеспособных клеток становится меньше. Такой набор фаз и причины переходов описаны в учебном обзоре микробного роста. Нельзя подставлять точки, одна из которых лежит в лаг-фазе, а другая - на плато: полученное «среднее» время удвоения скроет адаптацию и ограничения среды.
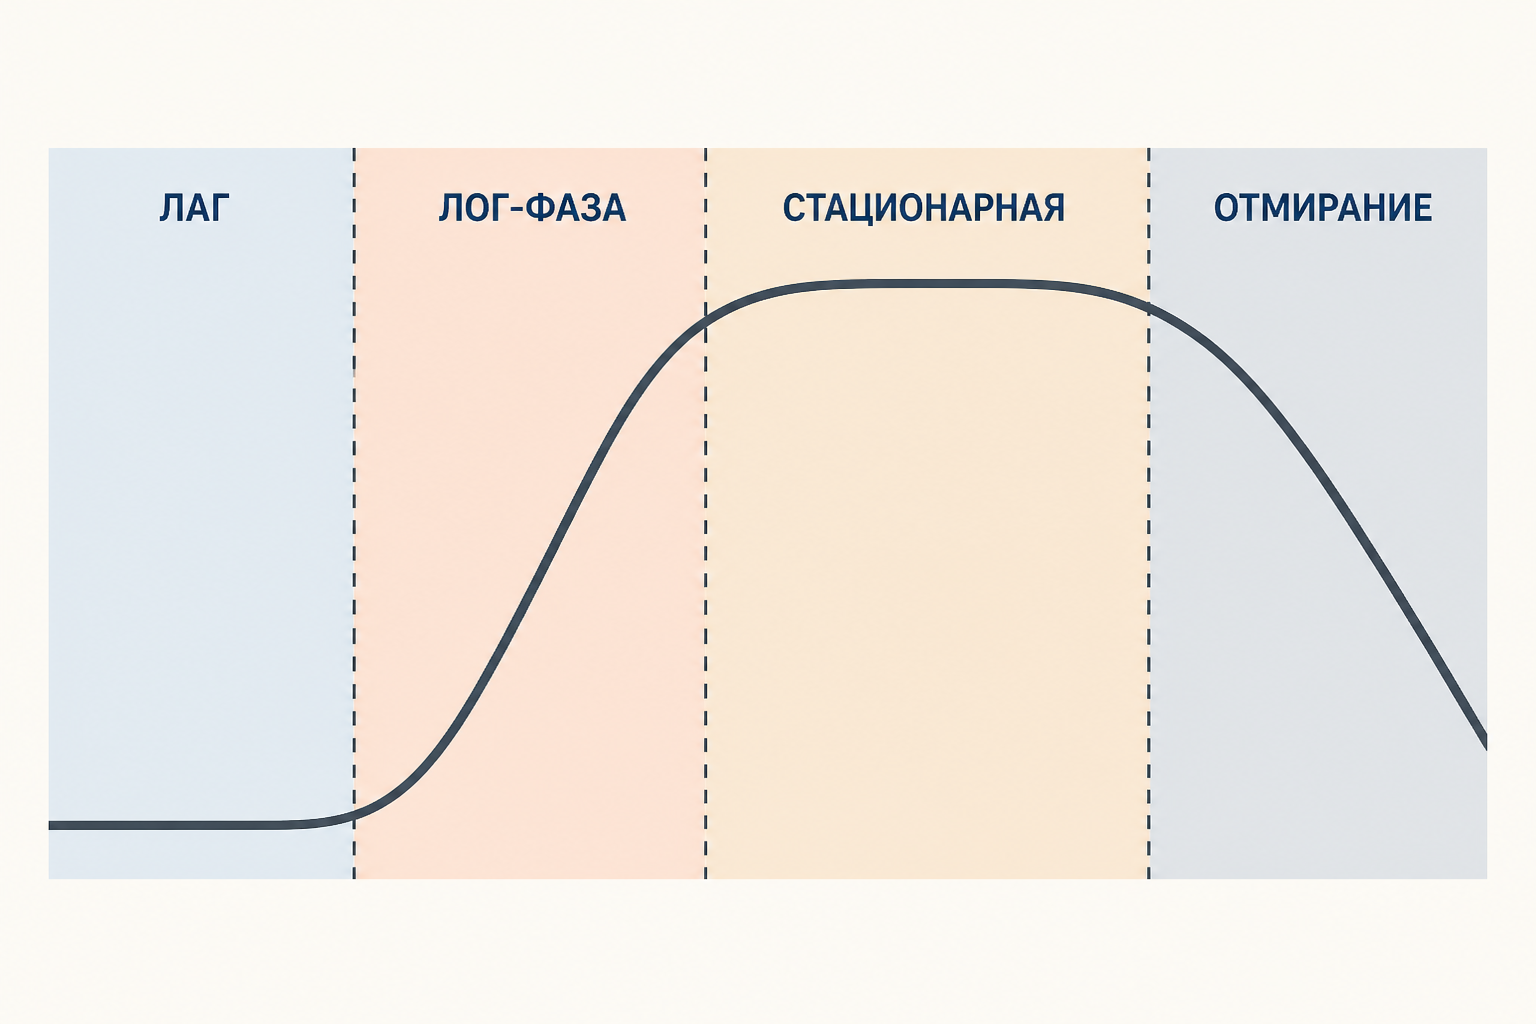
Сравнение фаз полезно и для интерпретации модели. В лог-фазе J-образная экспонента - хорошее локальное приближение. На длинном опыте кривая скорее напоминает S-образное ограниченное насыщение, которое обсуждается в модели Ферхюльста. Это не противоречие между формулами: первая отвечает за короткий участок с постоянным темпом, вторая добавляет ограничение роста при увеличении плотности.
Ориентиры для разных клеток
Число «20 минут для E. coli» - не биологическая константа вида. Это распространённый учебный ориентир для быстрого роста Escherichia coli в богатой среде при благоприятной температуре; смена штамма, температуры, аэрации или состава среды изменит результат. Поэтому в лабораторной записи всегда указывают условия вместе с .
Для почкующихся дрожжей в учебнике приводят прохождение клеточного цикла примерно за 90 минут, а для типичной быстро пролиферирующей клетки человека - около 24 часов; эти величины также не универсальны и зависят от типа клетки и условий. Источник прямо сопоставляет эти примеры и фазы эукариотического цикла в главе NCBI Bookshelf. Для сравнения механизмов деления полезно помнить, что клетка возникает из предсуществующей клетки: это положение разобрано в статье о клеточной теории Шванна и Шлейдена.
| Объект и условный ориентир | Порядок времени | Как читать величину |
|---|---|---|
| E. coli в благоприятной богатой среде | около 20 мин | ориентир лог-фазы, не для любой культуры |
| Почкующиеся дрожжи | около 90 мин | пример быстро делящихся эукариот |
| Быстро пролиферирующие клетки человека | около 24 ч | пример длительности клеточного цикла |
Время удвоения опухоли: что оно говорит врачу
В онкологии говорят о времени удвоения объёма опухоли, а не только о времени деления одной клетки. Это разные показатели: видимый объём зависит от деления, гибели клеток, кровоснабжения, иммунного ответа и точности визуализации. Две опухоли одинакового размера не обязаны иметь одинаковый темп, а одна опухоль не обязана сохранять темп на всём протяжении наблюдения.
Поэтому показатель используют как часть клинической картины: для оценки динамики на повторных исследованиях, обсуждения интервалов наблюдения и прогноза вместе с локализацией, гистологией, стадией и другими данными. Нельзя по одной формуле ставить диагноз, выбирать лечение или переносить данные одного вида опухоли на другой. Например, систематический обзор гепатоцеллюлярной карциномы показал большую неоднородность: объединённая оценка времени удвоения объёма была около 4–5 месяцев, но разброс между образованиями существенен в самом обзоре. Это хороший пример того, почему «типового» срока для всех опухолей не существует.
Когда расчёт нужно остановить и перепроверить
Формула предполагает, что обе численности положительны, измерены сопоставимо и относятся к одному экспоненциальному участку. Если отношение близко к единице, логарифм в знаменателе мал, и случайная ошибка подсчёта резко меняет . Если точки получены разными методами, например сначала по числу колоний, а затем по оптической плотности без калибровки, отношение тоже нельзя интерпретировать напрямую.
Полезная практика - взять несколько точек в лог-фазе, построить от и оценить наклон. Тогда - наклон прямой, а . Также стоит отдельно учитывать жизнеспособность: общее число частиц, мутность и число клеток, образующих колонии, отвечают на близкие, но не тождественные вопросы. Переход к строению бактериальной клетки помогает понять, почему условия среды и клеточная оболочка важны для роста, но не заменяет измерений.
Для воспроизводимого опыта заранее задают момент отбора проб, температуру, состав среды, способ перемешивания и метод подсчёта. Слишком редкие точки могут пропустить короткий экспоненциальный участок, а слишком плотная культура выходит за линейный диапазон прибора. Полезно записывать единицы времени рядом с каждым значением: минуты для быстрорастущей культуры и часы или сутки для клеток млекопитающих. Тогда результат можно проверить, повторить и честно сопоставить только с опытом, выполненным в сходных условиях.
Частые ошибки
- Подставлять данные стационарной фазы. Там нет постоянного экспоненциального прироста, поэтому одно не описывает процесс.
- Путать время удвоения и время одного деления конкретной клетки. Показатель относится к популяции и является средним темпом на выбранном интервале.
- Считать, что 20 минут - обязательный результат для E. coli. Это ориентир для благоприятных условий, а не паспортное свойство любой культуры.
- Брать диаметр вместо объёма опухоли без модели. Удвоение диаметра не равно удвоению объёма; геометрия измерения принципиальна.
FAQ
Можно ли найти время удвоения, если численность выросла не ровно в 2, 4 или 8 раз?
Да. Используйте ; логарифм как раз переводит любое положительное отношение роста в число поколений.
Почему лог-фаза называется логарифмической?
Экспоненциальная зависимость становится прямой на графике от времени. Поэтому участок удобно анализировать в логарифмической шкале.
Можно ли по времени удвоения судить о злокачественности опухоли?
Нет, сам по себе показатель недостаточен. Его трактуют только врачом вместе с типом опухоли, исследованиями в динамике и другими клиническими данными.
Коротко
Время удвоения находят по модели и двум сопоставимым измерениям: . Оно осмысленно прежде всего в экспоненциальной, или лог-фазе. Для бактерий, дрожжей, культур клеток и опухолей число зависит от условий и метода наблюдения, поэтому формула даёт оценку динамики, а не неизменную характеристику «вообще».
Читайте также
Анаэробное дыхание бактерий: типы и акцепторы
Анаэробное дыхание бактерий: типы по конечному акцептору электронов - нитратное, сульфатное, фумаратное, железное. Отличие от брожения, энергетический выход.
Элективные среды для бактерий: принцип действия
Элективные среды для бактерий подавляют рост посторонней микрофлоры и дают преимущество нужному виду. Разбираем механизм, состав классических сред и практику применения.
Морфология бактерий: основные формы клеток в микробиологии
Морфология бактерий - кокки, палочки, спириллы, вибрионы. Разбираем формы бактериальных клеток, их медицинское значение и методы определения в учебной микробиологии.
Транспозоны бактерий: IS-элементы и механизм транспозиции
Что такое транспозоны и IS-элементы бактерий, как они перемещаются по геному, регулируют активность и распространяют гены устойчивости к антибиотикам.
Путь Энтнера-Дудорова: альтернативный гликолиз у бактерий
Путь Энтнера-Дудорова - альтернативная схема катаболизма глюкозы у прокариот через KDPG. Разбираем реакции, ферменты, энергетический баланс и зачем он Pseudomonas и Zymomonas mobilis.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.