Устьица: как работает механизм открывания и закрывания
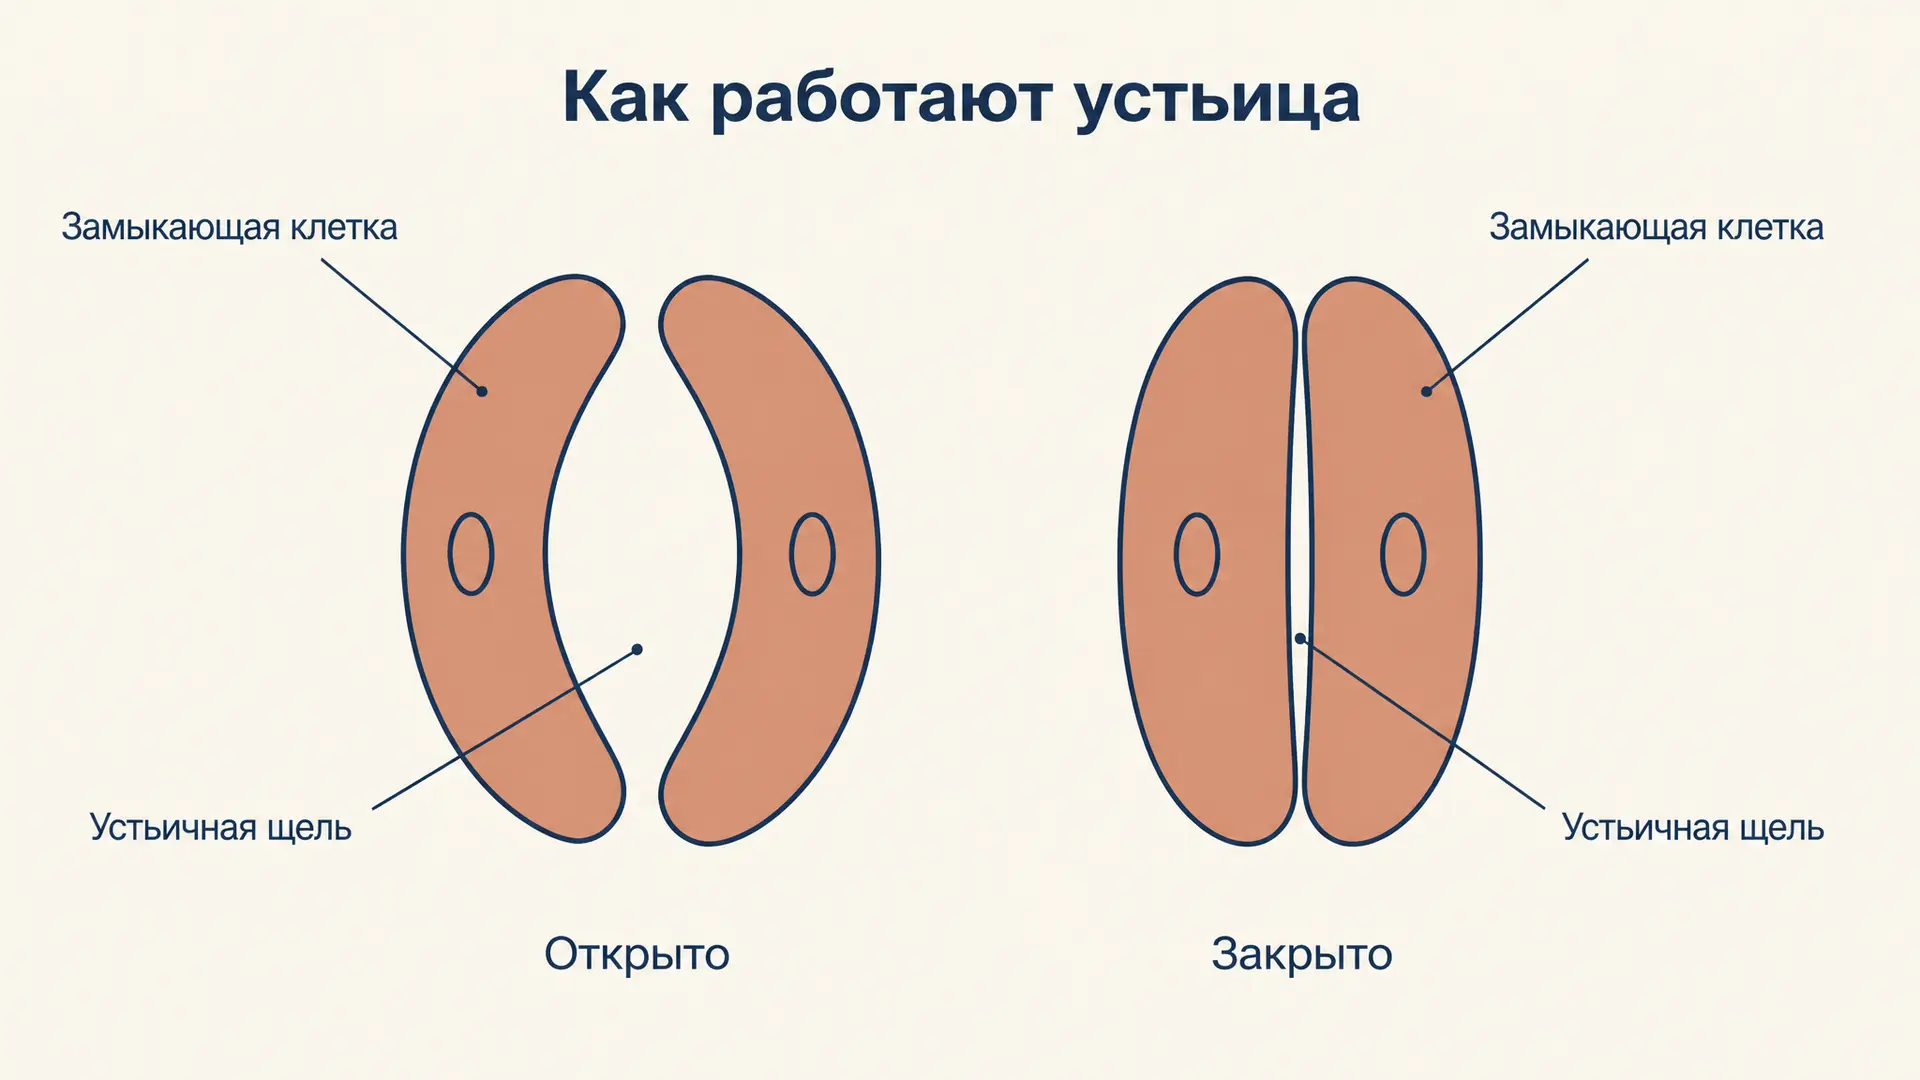
Устьица занимают около одного процента поверхности листа, но через них проходит почти весь газообмен растения и до девяноста процентов испаряемой воды. Работа устьица - это постоянный компромисс: щель нужно открыть, чтобы впустить углекислый газ для фотосинтеза, и закрыть, чтобы не высохнуть. Ниже разобрано, из чего состоит устьичный аппарат, почему замыкающие клетки изгибаются при набухании, какие ионы и сигналы управляют щелью и как работу устьиц измеряют количественно. Форма ниже соберёт точный запрос под ваш случай: выбираете аспект, объект и формат ответа.
Из чего состоит устьичный аппарат
Устьице - это пора в эпидермисе (устьичная щель) и две окружающие её замыкающие клетки. Вместе с прилегающими побочными, или околоустьичными, клетками они образуют устьичный аппарат. Под щелью находится подустьичная полость - воздушная камера в губчатом мезофилле, откуда водяной пар и газы расходятся по межклетникам.
Замыкающие клетки заметно отличаются от остальных клеток кожицы. У большинства видов только они в эпидермисе содержат хлоропласты, у них плотная цитоплазма, крупное ядро и мощный набор ионных переносчиков на плазмалемме. Форма у двудольных бобовидная (почковидная), а у злаков и осок - гантелевидная: узкая средняя часть и вздутые концы.
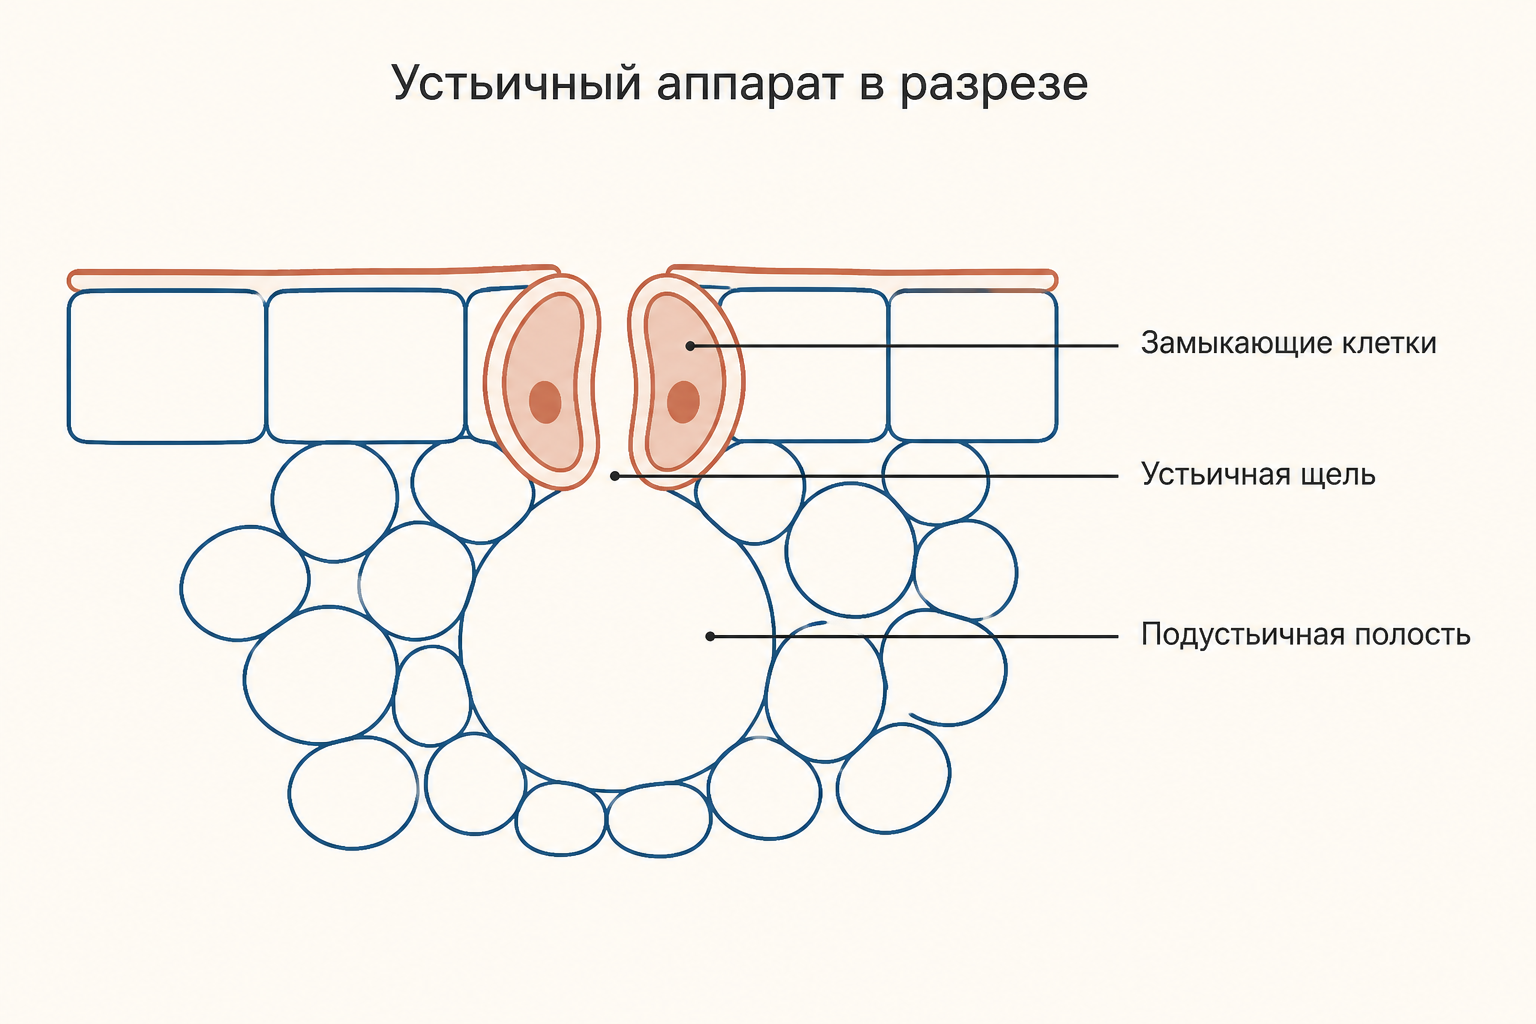
Плотность устьиц у типичного мезофита составляет 100–300 штук на квадратный миллиметр, у отдельных видов доходит до 500 и более. Длина щели 10–40 мкм, ширина в раскрытом состоянии 3–12 мкм. Считают и относительный показатель - устьичный индекс:
где - число устьиц, а - число обычных клеток эпидермиса в том же поле зрения. Индекс устойчивее плотности, потому что не зависит от того, насколько сильно растянулись клетки при росте листа.
Размещение устьиц тоже говорит об образе жизни. У большинства деревьев лист гипостоматный - устьица только на нижней стороне. У травянистых светолюбивых растений часто амфистоматный, с устьицами на обеих сторонах. У плавающих листьев кувшинки - эпистоматный: поры только сверху, потому что снизу вода.
Почему набухшая клетка открывает щель, а не закрывает её
Ключ к работе устьиц - асимметрия стенок замыкающей клетки. Стенка, обращённая к щели (её называют брюшной или внутренней), заметно толще и жёстче наружной, спинной. Кроме того, целлюлозные микрофибриллы уложены в стенке радиально, кольцами поперёк длинной оси клетки, - это радиальный мицеллярный каркас.
Такая укладка работает как армированный шланг. При росте тургора клетка не может увеличиться в обхвате: кольца микрофибрилл не растягиваются. Единственный доступный ей способ вместить лишнюю воду - удлиниться. А поскольку концы двух замыкающих клеток скреплены между собой, удлинение реализуется через изгиб наружу - тонкая наружная стенка выгибается сильнее толстой внутренней, и между клетками раскрывается щель. Падает тургор - клетки распрямляются и смыкаются.
У злаков механика другая и более быстрая. Гантелевидные клетки имеют тонкие стенки только на вздутых концах: при накачке воды концы раздуваются, как воздушные шарики, и раздвигают жёсткие средние части в стороны. Именно поэтому у пшеницы и кукурузы устьица реагируют на изменение освещённости за считанные минуты.
Ионная накачка: калий, протоны и малат
Тургор замыкающей клетки меняется не сам по себе. Растение целенаправленно меняет её осмотический потенциал, а вода идёт следом по градиенту водного потенциала. Здесь работает то же уравнение, что и для любой другой растительной клетки:
Последовательность открывания выглядит так. Синий свет улавливают рецепторы-фототропины, которые активируют протонную АТФазу плазмалеммы. Насос выкачивает ионы наружу и гиперполяризует мембрану примерно до −120…−160 мВ. Отрицательный заряд внутри клетки открывает калиевые каналы входящего выпрямления, и лавиной входит в клетку: его концентрация растёт со 100 мМ до 400–800 мМ. Для электронейтральности внутрь заходит , а из запасного крахмала синтезируется малат. Осмотический потенциал падает на 1–2 МПа, вода входит в вакуоль, тургорное давление растёт, и щель раскрывается.
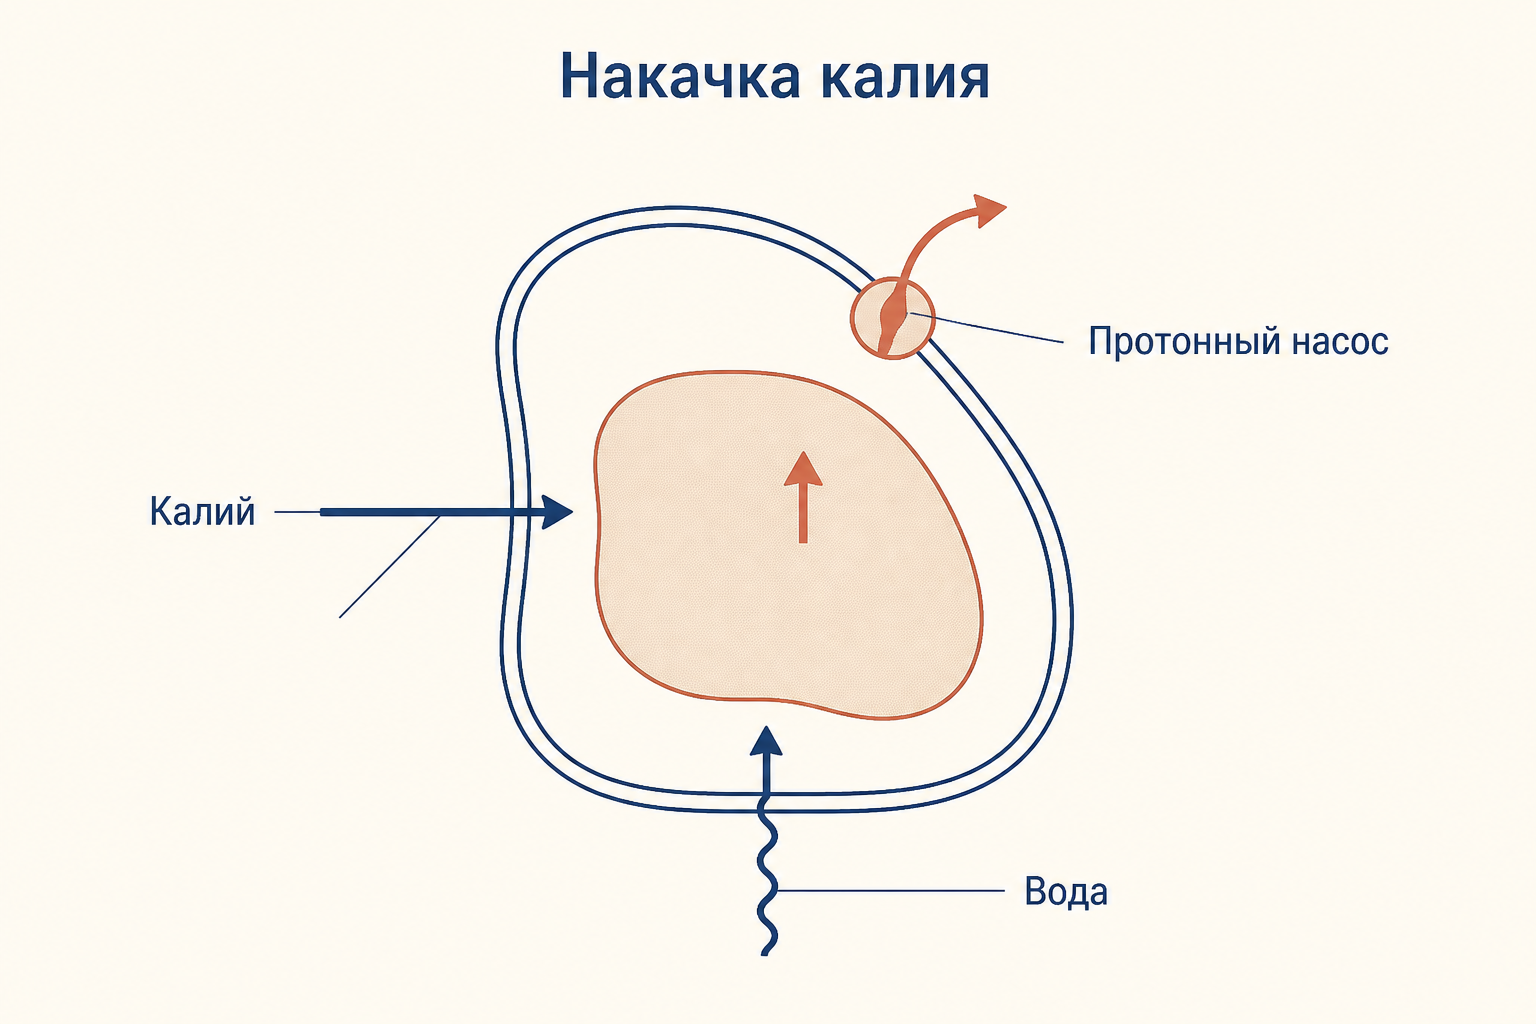
Прикидка масштаба: при моль/л, , К и л·МПа/(моль·К) осмотический потенциал равен МПа. Именно такой перепад и втягивает воду из соседних клеток за минуты.
Что открывает и что закрывает устьица
Открывающих сигналов три. Синий свет действует напрямую через фототропины и сильнее всего влияет на утреннее раскрытие. Красный свет действует косвенно, через фотосинтез мезофилла. Низкая концентрация в подустьичной полости говорит клетке, что углерод расходуется быстрее, чем поступает, - щель нужно шире. Работает и внутренний циркадный ритм: устьица начинают приоткрываться перед рассветом, ещё в темноте.
Закрывающий сигнал главный один - абсцизовая кислота (АБК). При подсыхании почвы корень синтезирует АБК и отправляет её с пасокой в лист, плюс гормон образуется и в самом листе. Рецепторы семейства PYR/PYL, связав АБК, выключают фосфатазы PP2C, те перестают тормозить киназу OST1, а она открывает анионные каналы SLAC1. Анионы уходят из клетки, мембрана деполяризуется, вслед за анионами через каналы выходящего выпрямления утекает , за ионами уходит вода - тургор падает, щель закрывается. Дополнительно закрывают устьица темнота, высокая концентрация и большой дефицит влажности воздуха.
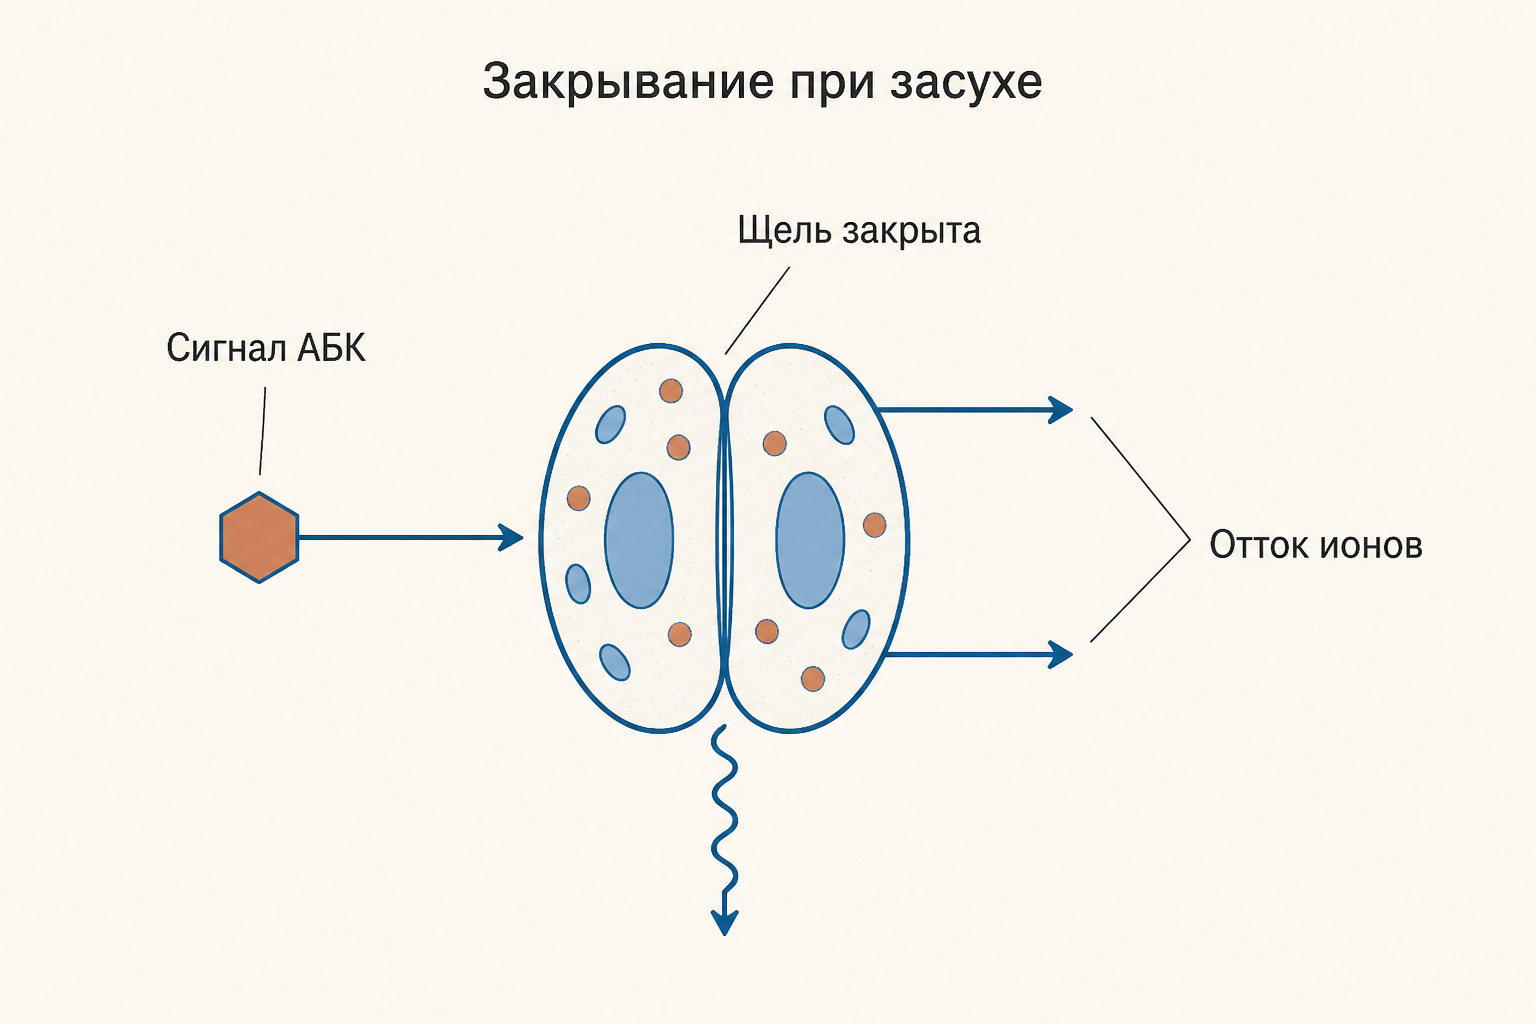
Отсюда суточный ход. Утром щель раскрывается, к полудню в жару наступает полуденная депрессия - устьица прикрываются, чтобы растение не потеряло больше воды, чем поднимает корневое давление и транспирационный ток, к вечеру ненадолго открываются снова, ночью смыкаются. Исключение - растения с САМ-фотосинтезом: у них график перевёрнут, устьица открыты ночью, когда испарение минимально.
Как измеряют работу устьиц
Количественная мера работы устьица - устьичная проводимость , величина, обратная диффузионному сопротивлению щели: . Поток водяного пара из листа записывают через проводимости последовательных участков пути:
где и - концентрация пара в подустьичной полости (воздух там практически насыщен), и - в наружном воздухе, - сопротивление пограничного слоя. У открытых устьиц обычно 0,1–0,5 моль/(м²·с), у закрытых падает ниже 0,05 - тогда основной канал потерь смещается на кутикулярную транспирацию.
Проводимость измеряют порометром или инфракрасным газоанализатором. Для учебных работ пользуются методом отпечатков: на кожицу наносят тонкий слой бесцветного лака, снимают плёнку и под микроскопом считают устьица и меряют ширину щелей.
В задаче на плотность устьиц считайте поры в поле зрения микроскопа, переводите площадь поля в квадратные миллиметры и только потом делите. Самая частая потеря балла - забытый перевод мкм² в мм².
Отдельный сюжет - закон Стефана. Скорость диффузии через мелкое отверстие пропорциональна его диаметру, а не площади. Поэтому множество мельчайших пор пропускает пар почти так же, как открытая водная поверхность той же величины, хотя суммарная площадь щелей составляет всего 1–2 % листа.
Частые ошибки
- Путать устьица с гидатодами. Устьица испаряют пар и регулируются, гидатоды выделяют жидкую воду при гуттации и щель не смыкают.
- Считать открывание механическим движением. Никаких сократительных структур нет: щель открывает осмотический вход воды вслед за ионами.
- Думать, что при закрытых устьицах потеря воды прекращается. Остаётся кутикулярная транспирация, и при долгой засухе она решает исход.
- Перепутывать замыкающие и побочные клетки. Хлоропласты и ионные насосы - у замыкающих, побочные лишь обслуживают их ионный обмен.
- Обобщать расположение устьиц. Лист бывает гипо-, амфи- и эпистоматным, и в расчёте площади испарения это меняет ответ вдвое.
FAQ
Почему устьица открываются именно на свету?
Свет запускает две линии сразу. Синий воспринимают фототропины замыкающей клетки и включают протонный насос. Красный работает через фотосинтез мезофилла: он снижает концентрацию углекислого газа в подустьичной полости, а низкий сам по себе служит сигналом к открыванию.
Что происходит с устьицами в полуденную жару?
При сильном дефиците влажности воздуха испарение обгоняет подачу воды по ксилеме, водный потенциал листа падает, накапливается АБК, и устьица прикрываются. Транспирация временно снижается, несмотря на максимум света и температуры, - это полуденная депрессия.
Как посчитать число устьиц на листе?
Снимают лаковый отпечаток кожицы, считают устьица в нескольких полях зрения, делят на площадь поля и получают плотность на квадратный миллиметр. Умножив на площадь листа, получают общее число, а для сравнения видов дополнительно считают устьичный индекс.
Коротко
Работа устьица сводится к управляемому изменению тургора двух замыкающих клеток. Толстая внутренняя стенка и радиальные микрофибриллы заставляют набухшую клетку изгибаться наружу, поэтому приток воды раскрывает щель, а отток закрывает. Воду тянет осмос: на свету протонная АТФаза выкачивает , внутрь входит с хлором и малатом, осмотический потенциал падает на 1–2 МПа. Закрывает щель абсцизовая кислота через каскад PYR/PYL, OST1 и анионные каналы, а также темнота и высокий . Количественно работу устьиц описывает устьичная проводимость , которую измеряют порометром, а в учебной практике оценивают по лаковым отпечаткам и ширине щели.
Читайте также
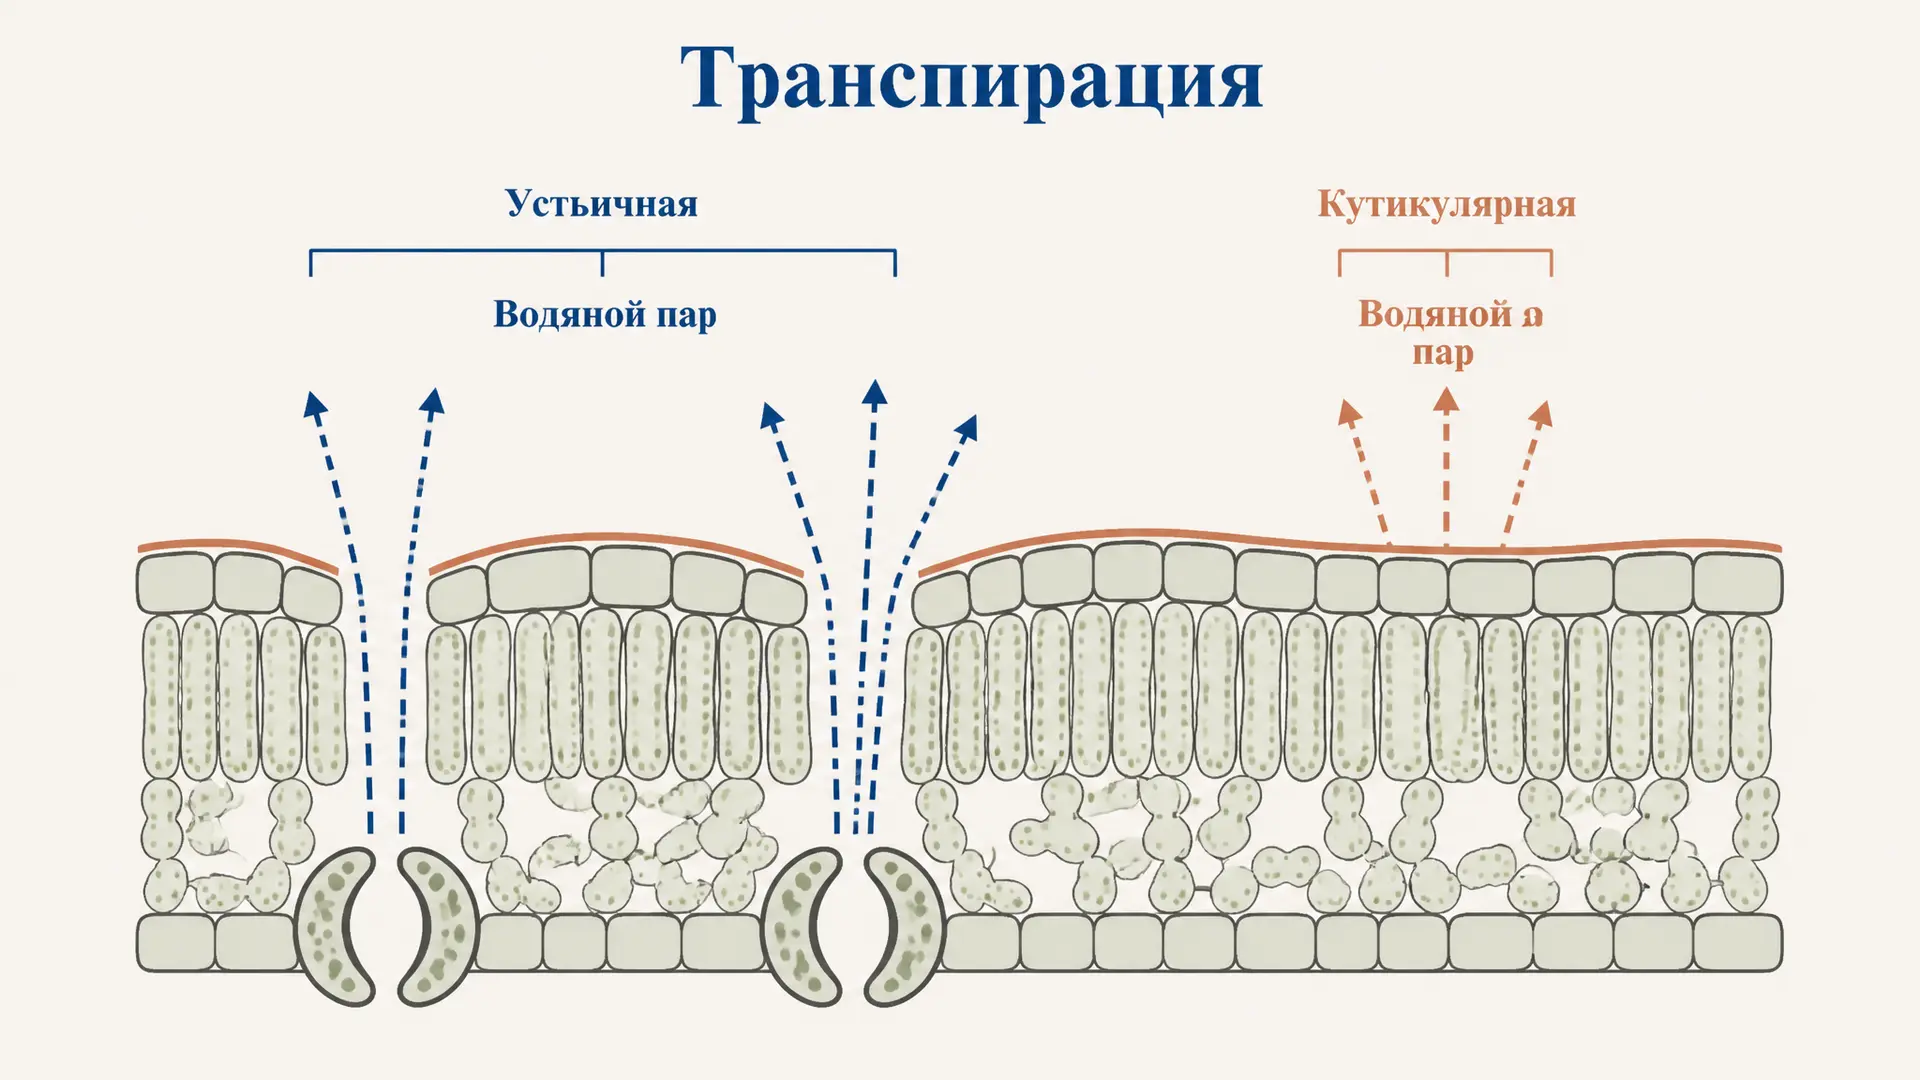
Транспирация устьичная и кутикулярная: два пути потери воды
Транспирация устьичная и кутикулярная: чем различаются два пути испарения воды листом, как работают устьица и кутикула, от чего зависит интенсивность и как её рассчитать.
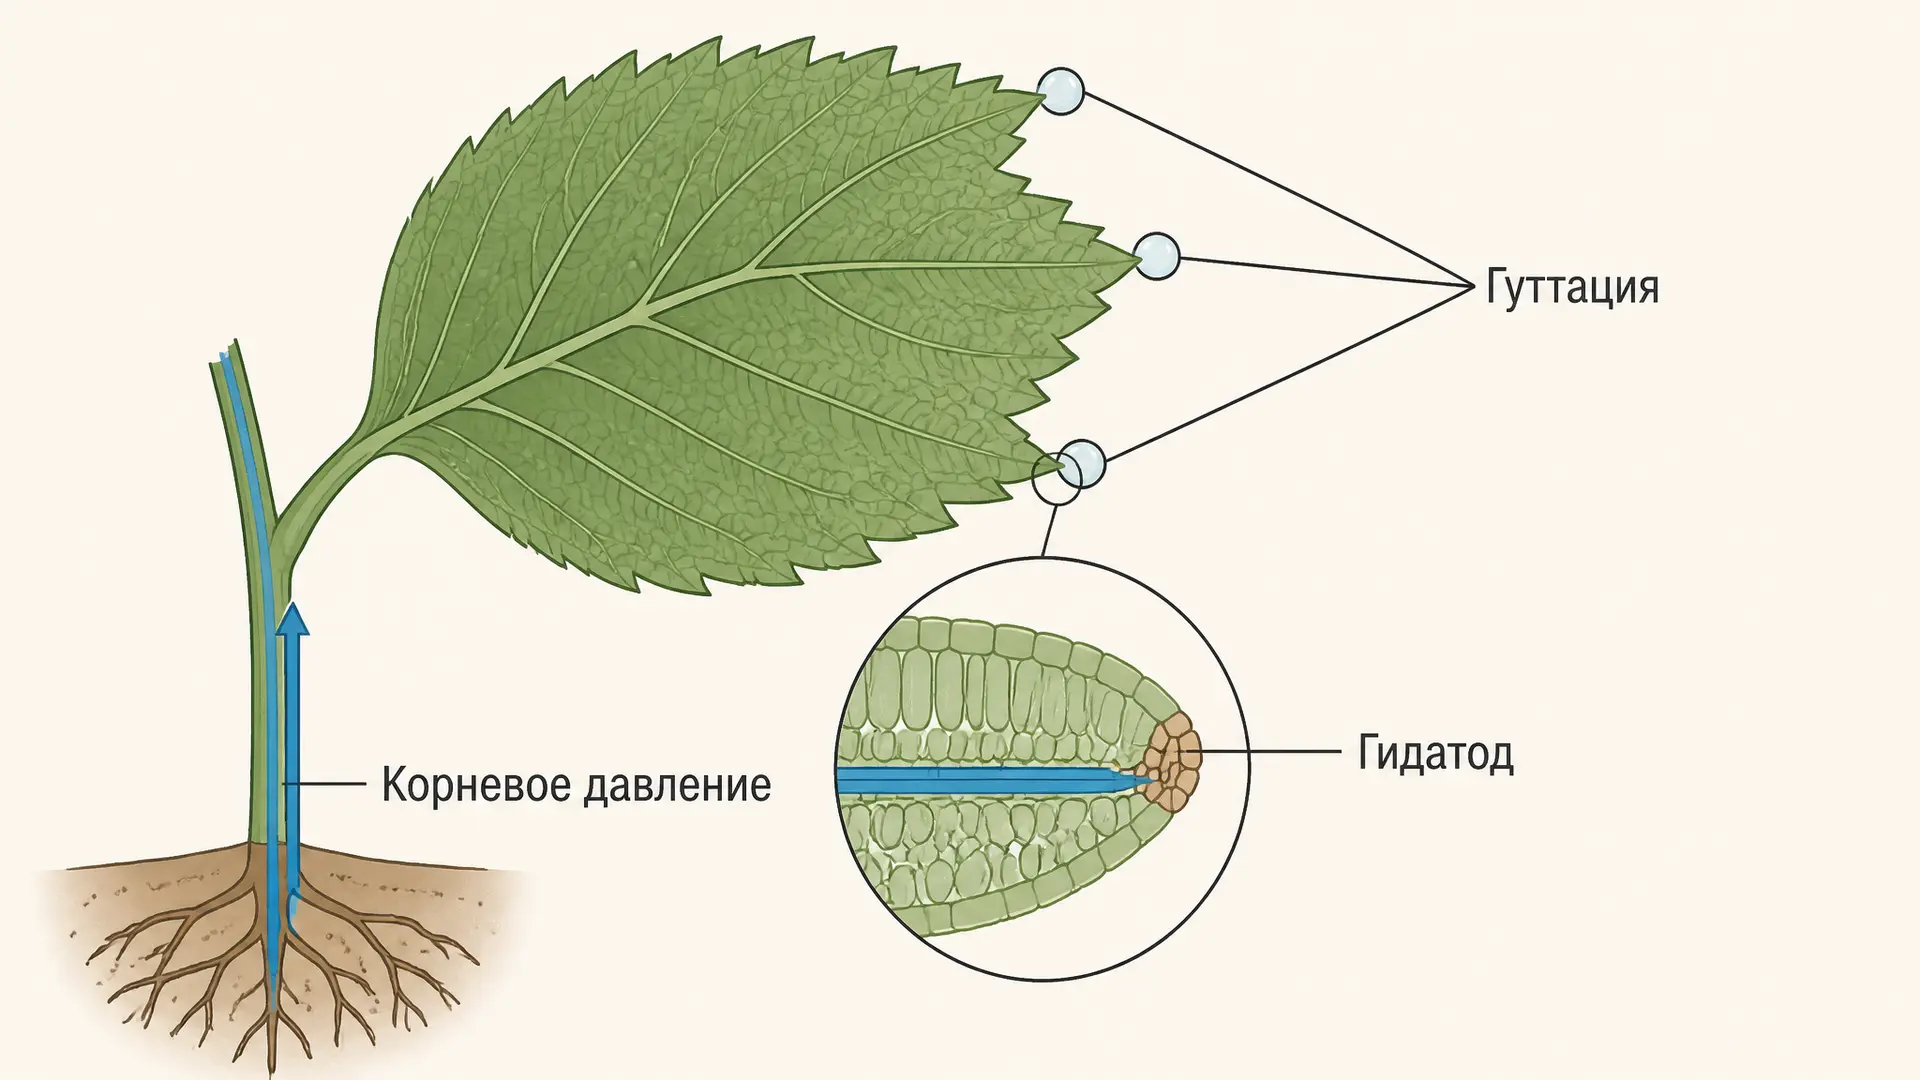
Гуттация: почему листья выделяют капли воды
Гуттация: как корневое давление выводит капли через гидатоды, чем они отличаются от росы и транспирации, что содержат и как наблюдать явление у растений.
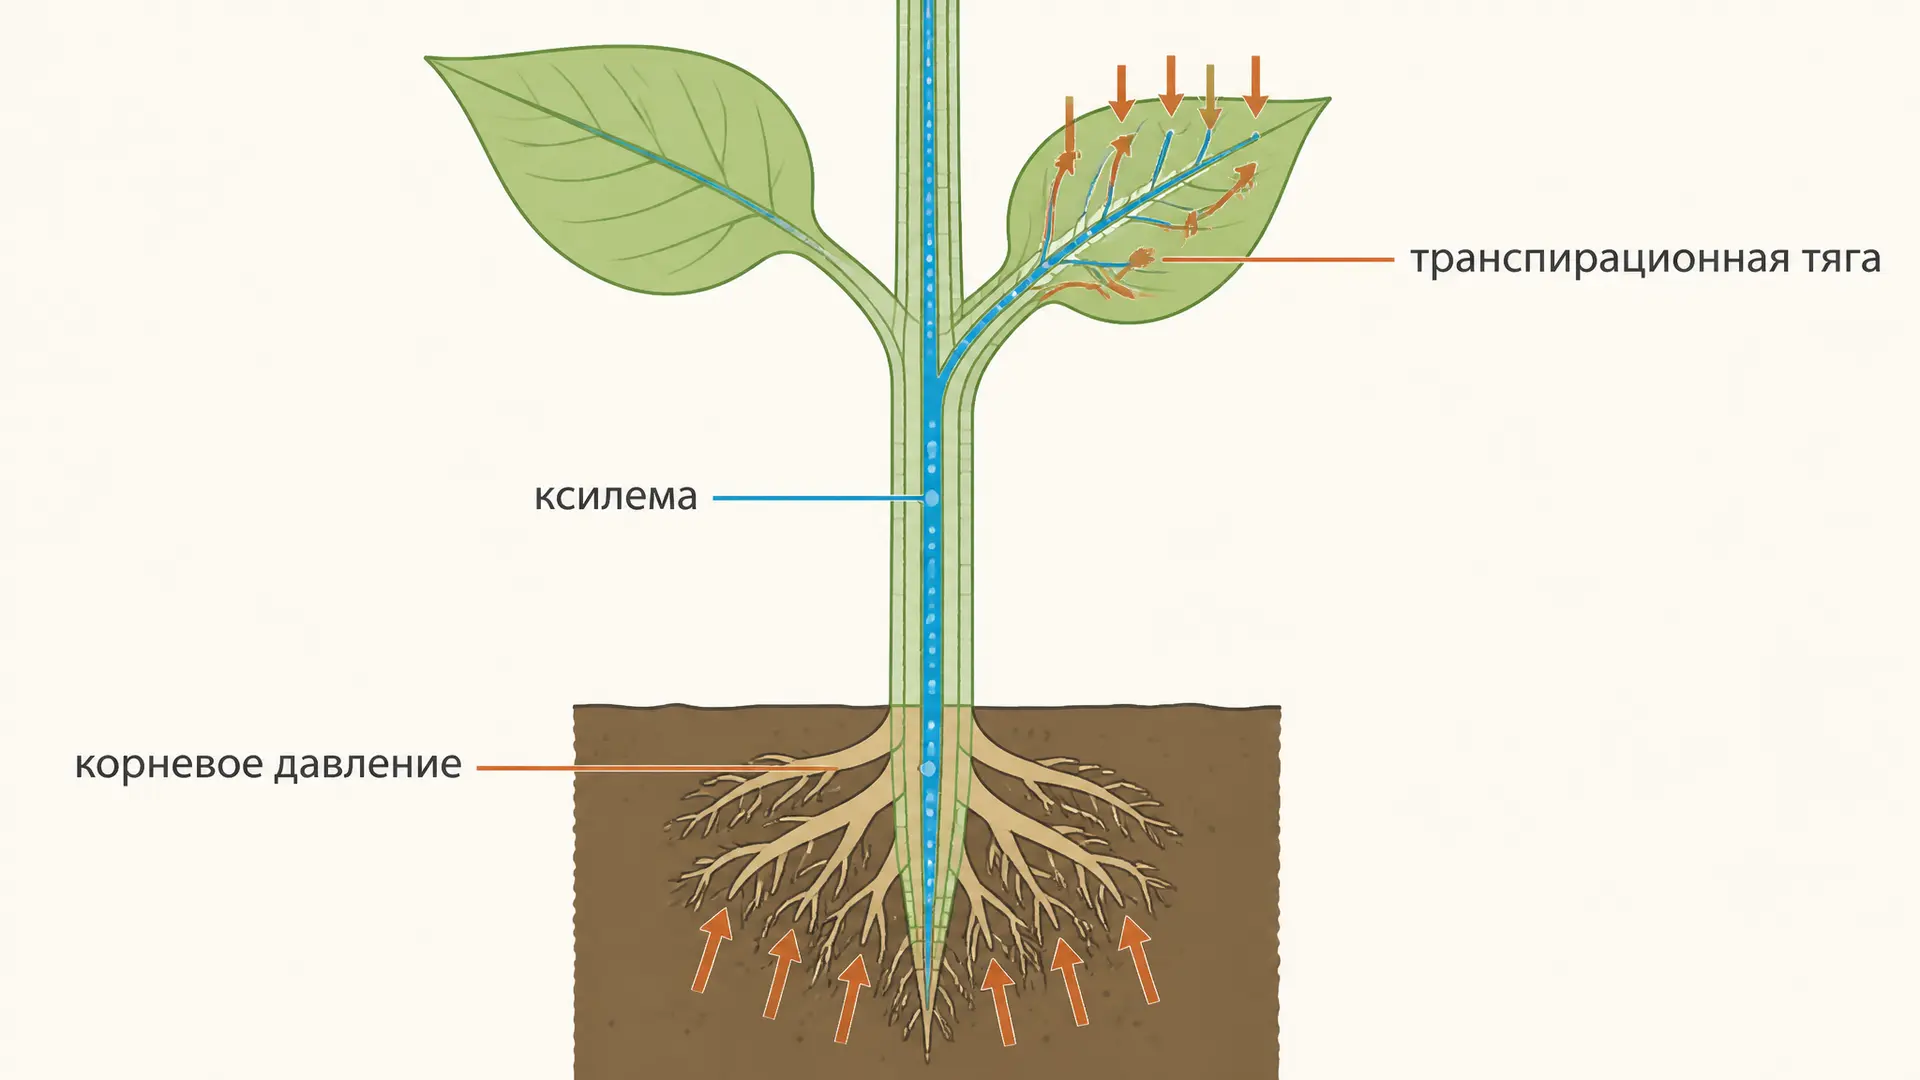
Концевые двигатели растений: ток воды в ксилеме
Концевые двигатели растений: корневое давление и транспирационная тяга, ксилема, теория Диксона-Джоли и расчёт высоты водяного столба при давлении 2 атм.
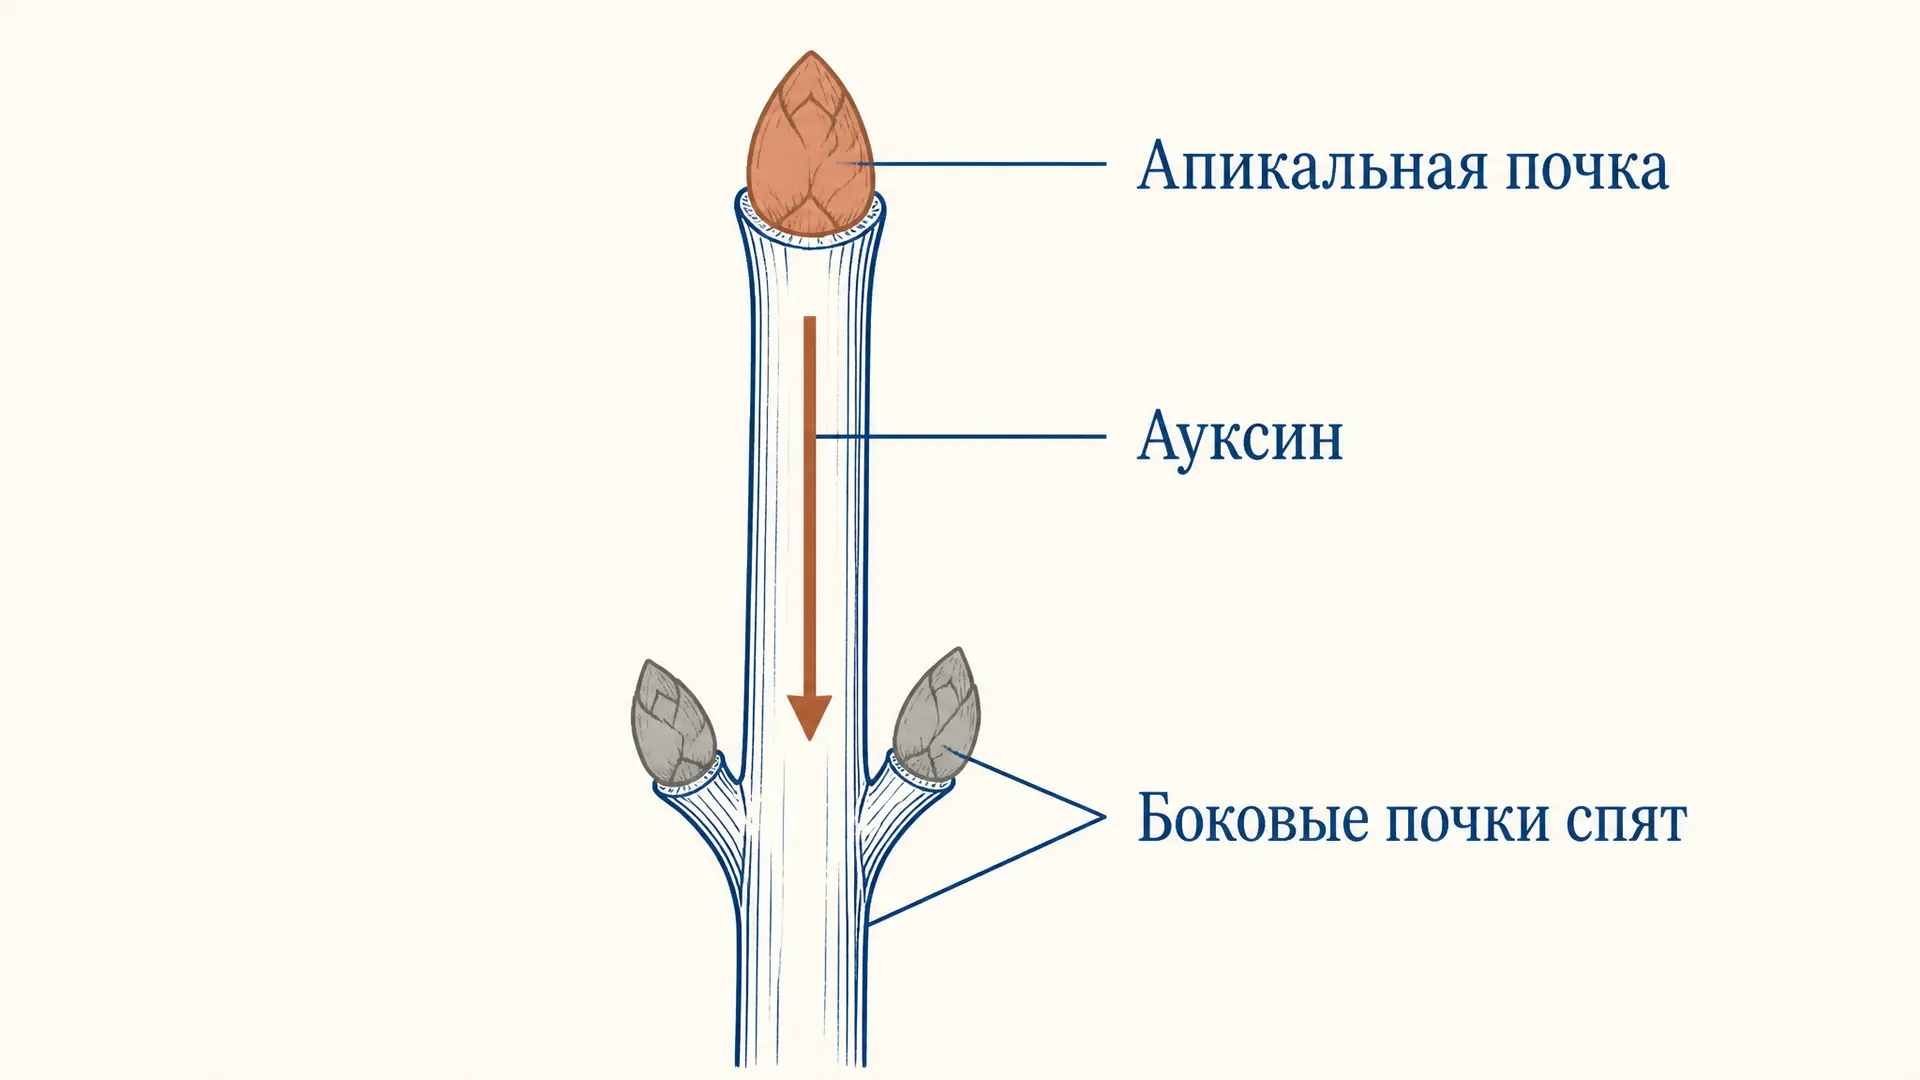
Апикальное доминирование: как ауксин тормозит боковые почки
Апикальное доминирование и ауксин: почему верхушечная почка подавляет рост боковых, как работают ауксин, цитокинин и сахара, что происходит после прищипки и зачем это нужно агроному.
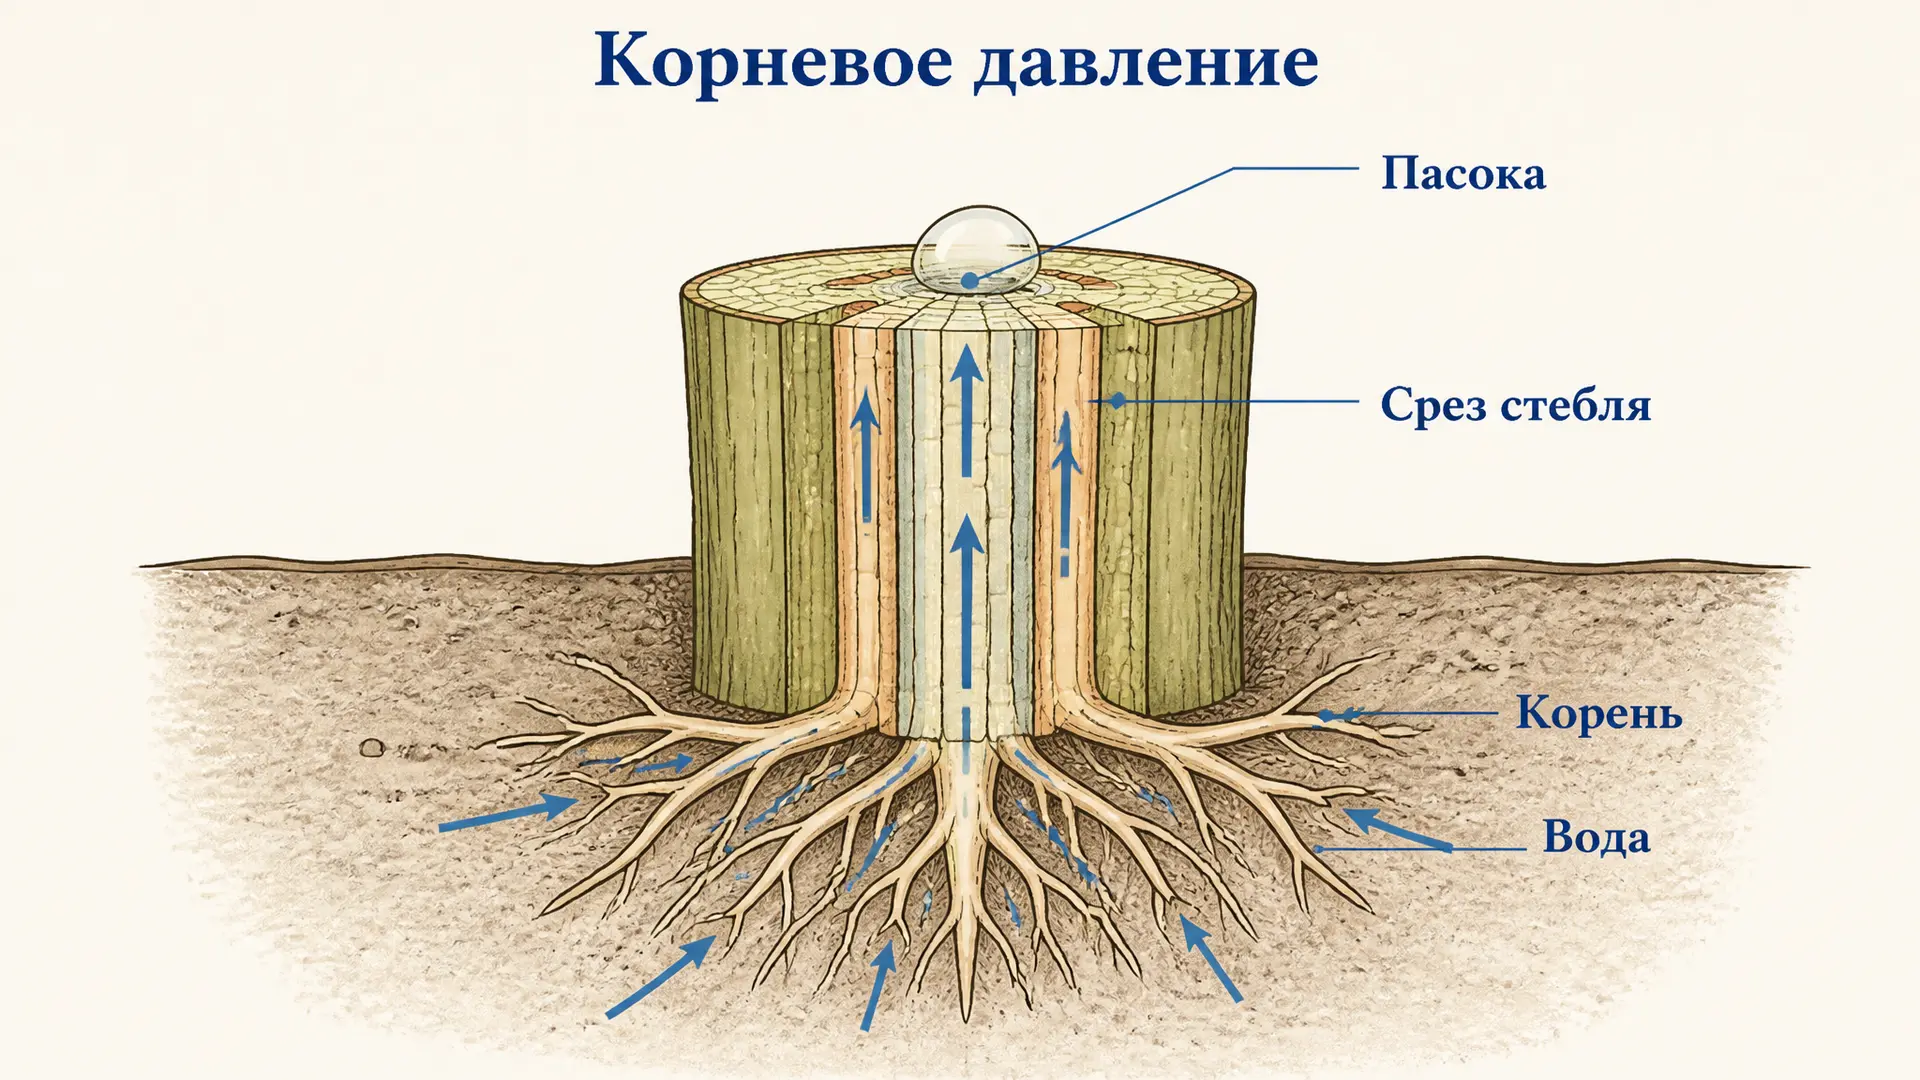
Корневое давление и пасока: как растение качает воду
Корневое давление и пасока простыми словами: как осмос в клетках корня поднимает воду, почему из среза стебля течёт сок и откуда берётся гуттация на листьях.
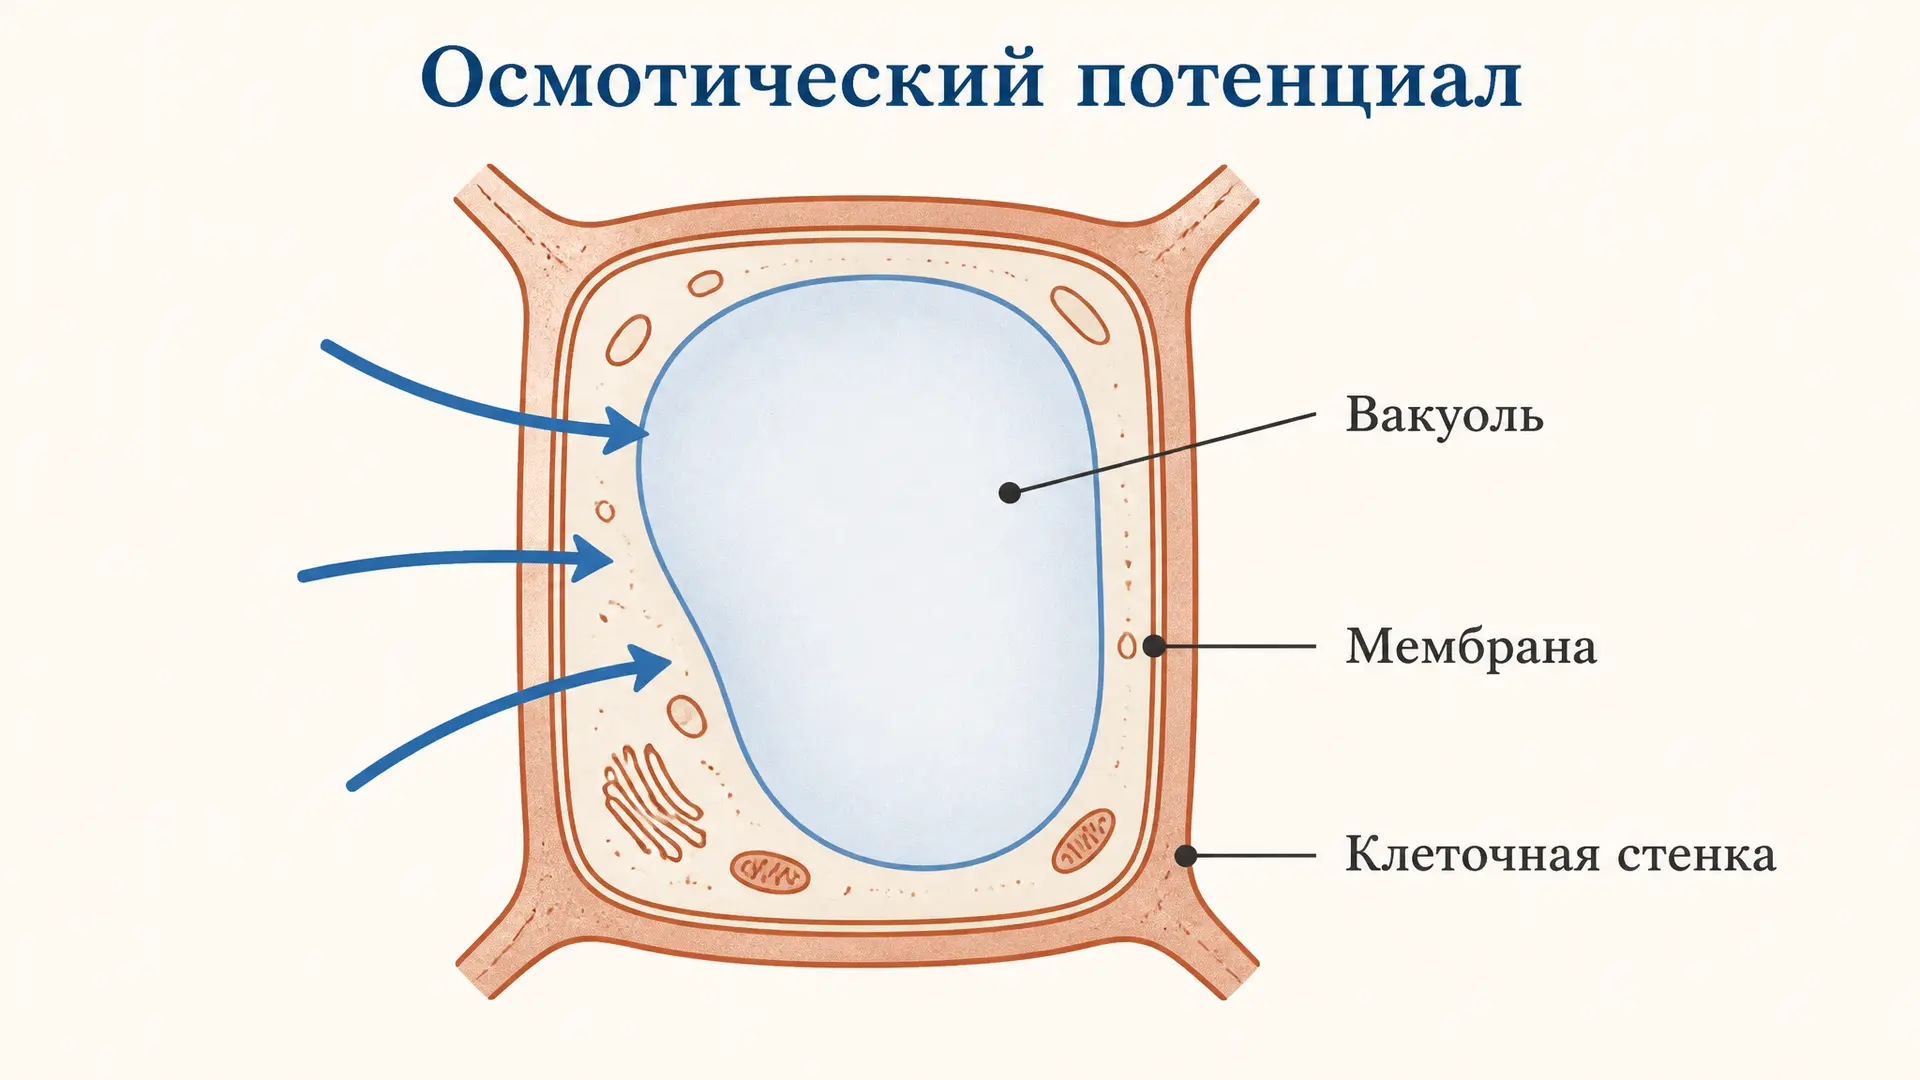
Осмотический потенциал клетки: формула и расчёт
Осмотический потенциал клетки: формула, физический смысл, связь с водным потенциалом и тургором, пошаговый расчёт, плазмолиз и тургесценция для задач по физиологии растений.