Синтез стероидных гормонов: пути и ферменты
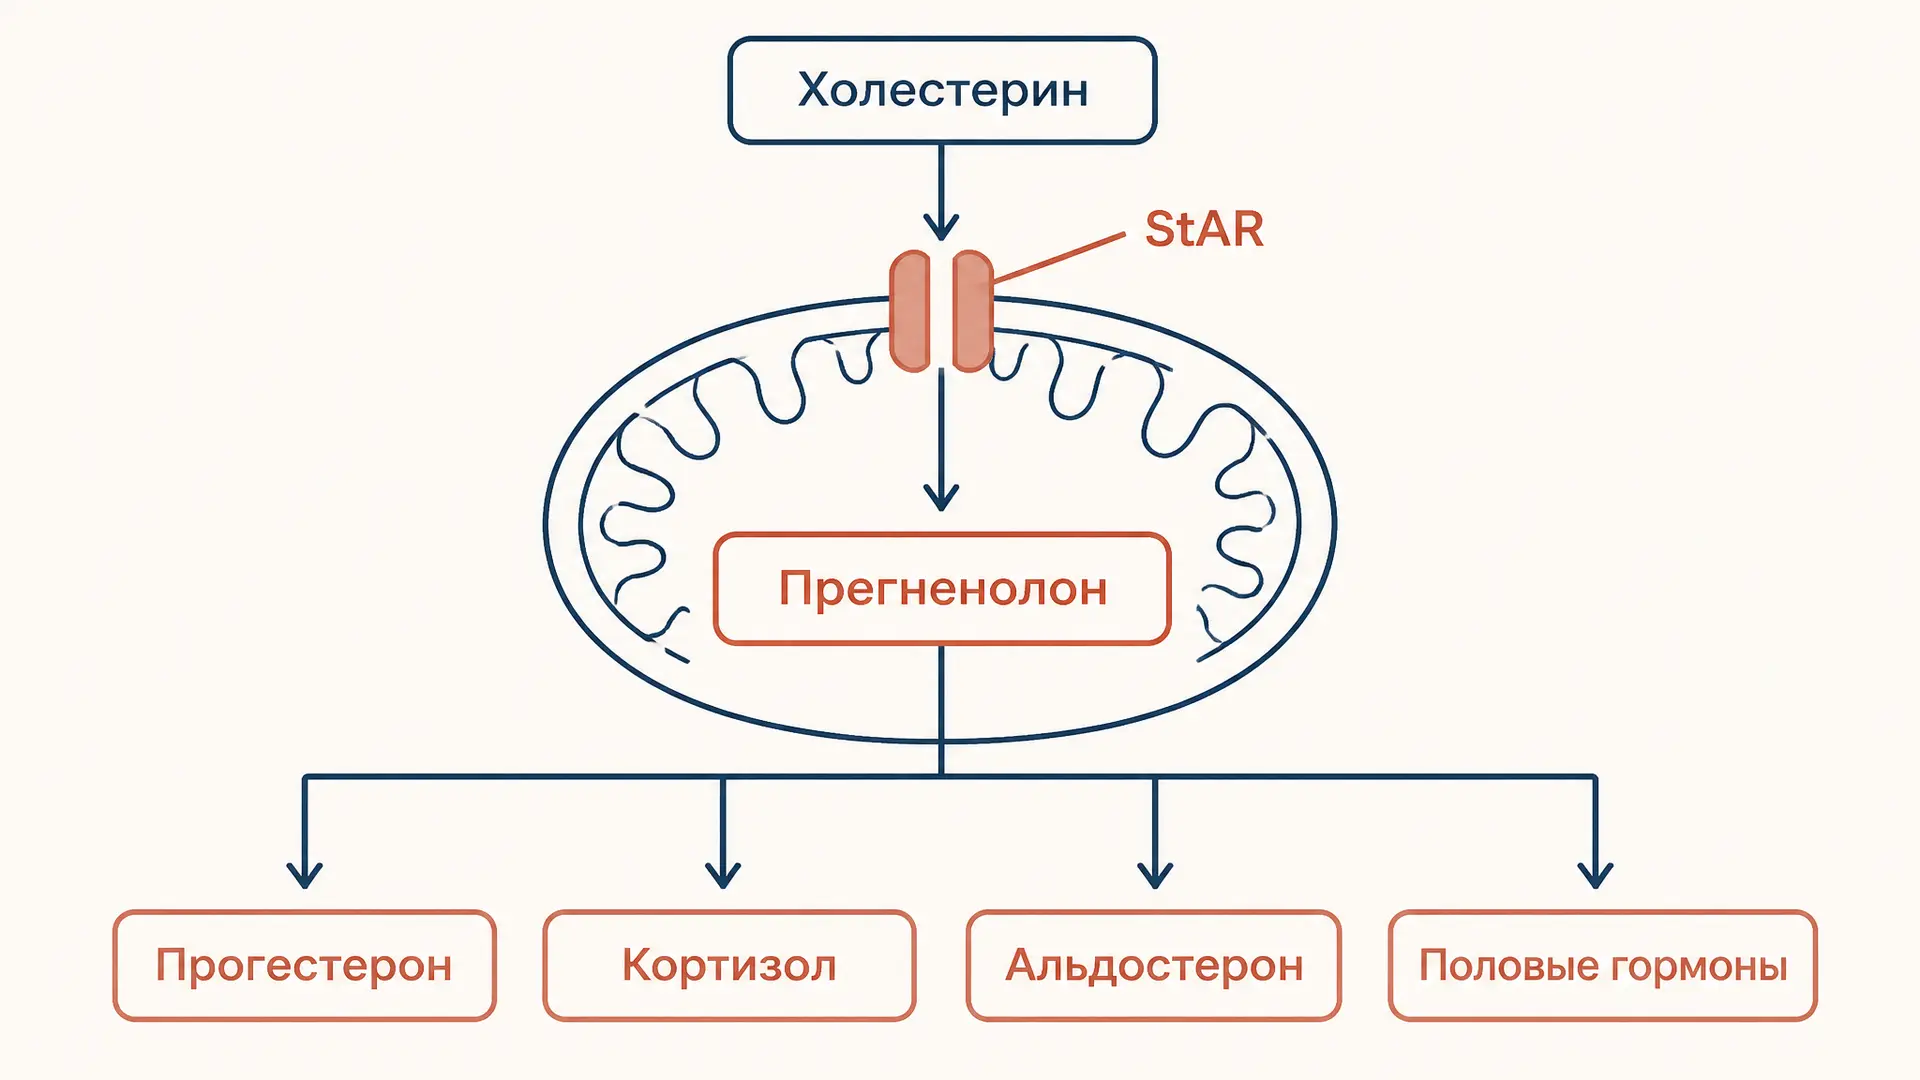
Стероидные гормоны различаются по эффектам, но начинают путь с одного субстрата - холестерина. Из него клетки надпочечников, яичников, яичек и плаценты последовательно собирают прогестерон, кортизол, альдостерон, андрогены и эстрогены. Важна не только цепочка реакций: конечный продукт определяется тем, какие ферменты есть в данной ткани и какой сигнал их включает. Поэтому стероидогенез удобно читать как карту развилок, а не как один длинный список названий.
Общий старт: холестерин, StAR и прегненолон
Свободные стероиды почти не хранятся в готовом виде в секреторных гранулах. Когда клетка получает стимул, она мобилизует холестерин из липидных капель или получает его из липопротеинов. Самый регулируемый ранний этап - перенос холестерина с наружной на внутреннюю мембрану митохондрии. Его обеспечивает белок StAR, steroidogenic acute regulatory protein. Если транспорт не состоялся, фермент следующего шага не получает субстрат.
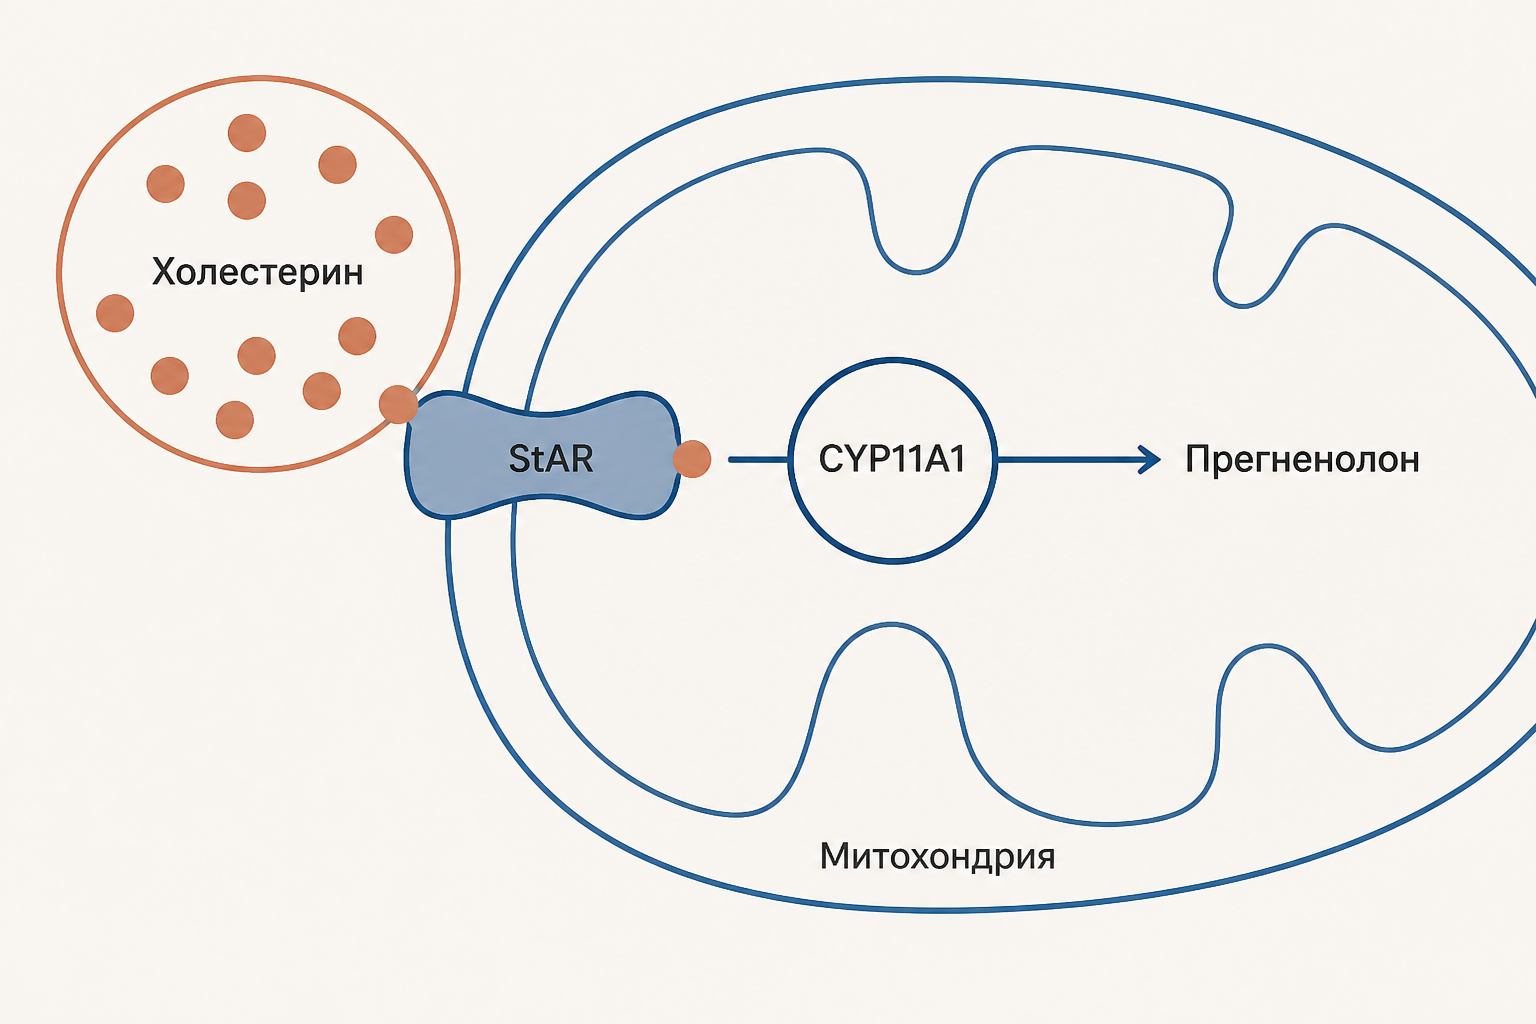
На внутренней мембране митохондрии CYP11A1, ранее называвшийся P450scc, отщепляет боковую цепь холестерина и образует прегненолон. Этот переход открывает синтез всех стероидов. Упрощённо его можно записать так:
Прегненолон далее выходит в эндоплазматический ретикулум. Там 3β-гидроксистероиддегидрогеназа превращает его в прогестерон. Это не только гормон беременности: прогестерон - важный промежуточный узел для минералокортикоидной и части глюкокортикоидной ветвей. Связь гормона с ядерным рецептором объясняет, почему многие эффекты стероидов развиваются через изменение транскрипции, а не мгновенно, как у медиатора в синапсе.
Одна схема, несколько конечных продуктов
Главные развилки удобно представить в виде дерева. Названия ферментов здесь важнее запоминать вместе со стрелкой, которую они обслуживают.
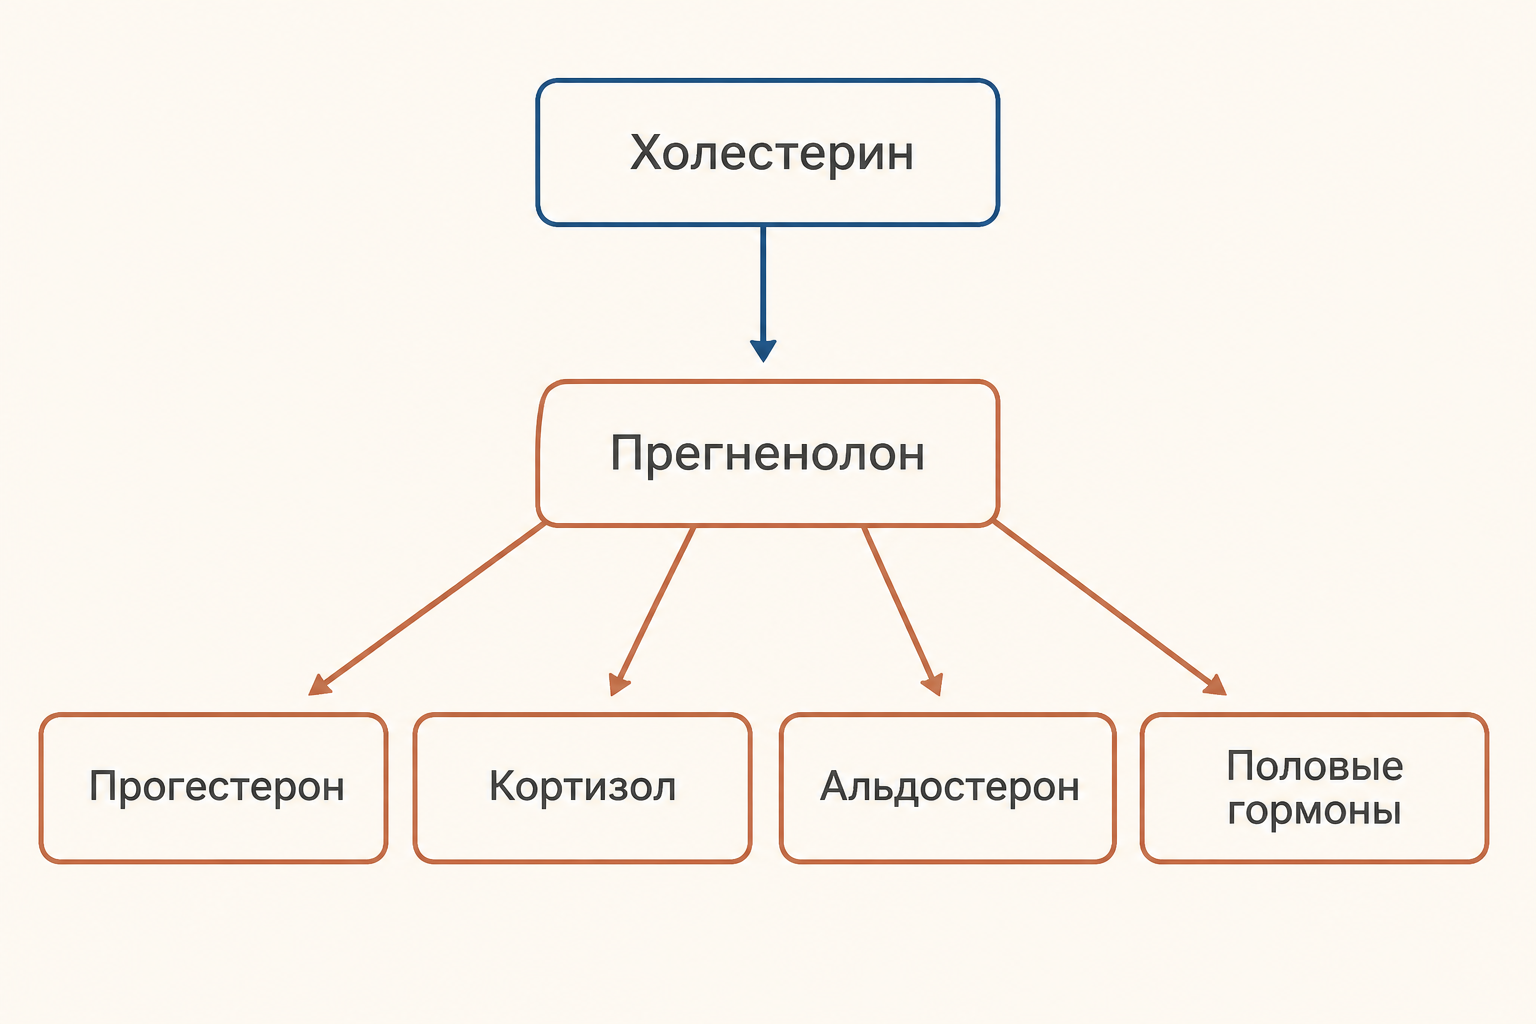
- К альдостерону: прегненолон → прогестерон → дезоксикортикостерон; финальные превращения выполняет альдостеронсинтаза CYP11B2.
- К кортизолу: после 17α-гидроксилирования образуется 17-гидроксипрогестерон; CYP21A2 даёт 11-дезоксикортизол, а CYP11B1 - кортизол.
- К андрогенам: CYP17A1 обладает также 17,20-лиазной активностью и направляет 17-гидроксипрегненолон к ДГЭА; далее образуется андростендион и в периферических тканях тестостерон.
- К эстрогенам: ароматаза CYP19A1 превращает андрогены в эстрогены. Поэтому эстрогеновый путь не начинается отдельно: ему нужны андрогенные предшественники.
Схема намеренно опускает часть промежуточных стероидов. На экзамене полезнее сначала уверенно назвать общий старт, три надпочечниковые ветви и ароматизацию, а затем добавлять детали. Химическую основу общего липидного предшественника можно повторить в структурной классификации липидов.
Почему зоны надпочечника делают разные гормоны
У коры надпочечника один источник субстрата, но три зоны с разным набором ферментов. В клубочковой зоне нет достаточной активности CYP17A1, зато экспрессируется CYP11B2, поэтому она направляет поток к альдостерону. Пучковая зона располагает CYP17A1, CYP21A2 и CYP11B1 и производит кортизол. Сетчатая зона использует 17,20-лиазную активность CYP17A1 и даёт преимущественно ДГЭА и андростендион.
Таким образом, «какой гормон получится» - это вопрос экспрессии ферментов, а не типа холестерина. Детали физиологических эффектов и стрессовой реакции кортизола разобраны отдельно в статье о гормонах коры надпочечников; здесь фокус остаётся на биосинтетической карте.
В гонадах распределение другое. В клетках Лейдига ЛГ усиливает стероидогенез, ведущий к тестостерону. В яичнике модель двух клеток и двух гонадотропинов помогает не смешать роли: ЛГ стимулирует тека-клетки к синтезу андрогенных предшественников, а ФСГ повышает активность ароматазы в гранулёзных клетках, где эти предшественники превращаются в эстрогены. Окончательный гормон зависит и от взаимодействия клеток, и от фермента.
Регуляция: разные сигналы для разных ветвей
АКТГ активирует стероидогенез надпочечника главным образом через быстрые сигнальные пути, увеличивающие доступность холестерина и работу StAR; особенно важен этот сигнал для кортизоловой и андрогенной ветвей. Кортизол затем тормозит гипоталамо-гипофизарную ось по отрицательной обратной связи. Общую логику таких петель можно сравнить с регуляцией гормонов щитовидной железы: в обоих случаях конечный гормон ограничивает верхние уровни управления, но ферменты и продукт различны.
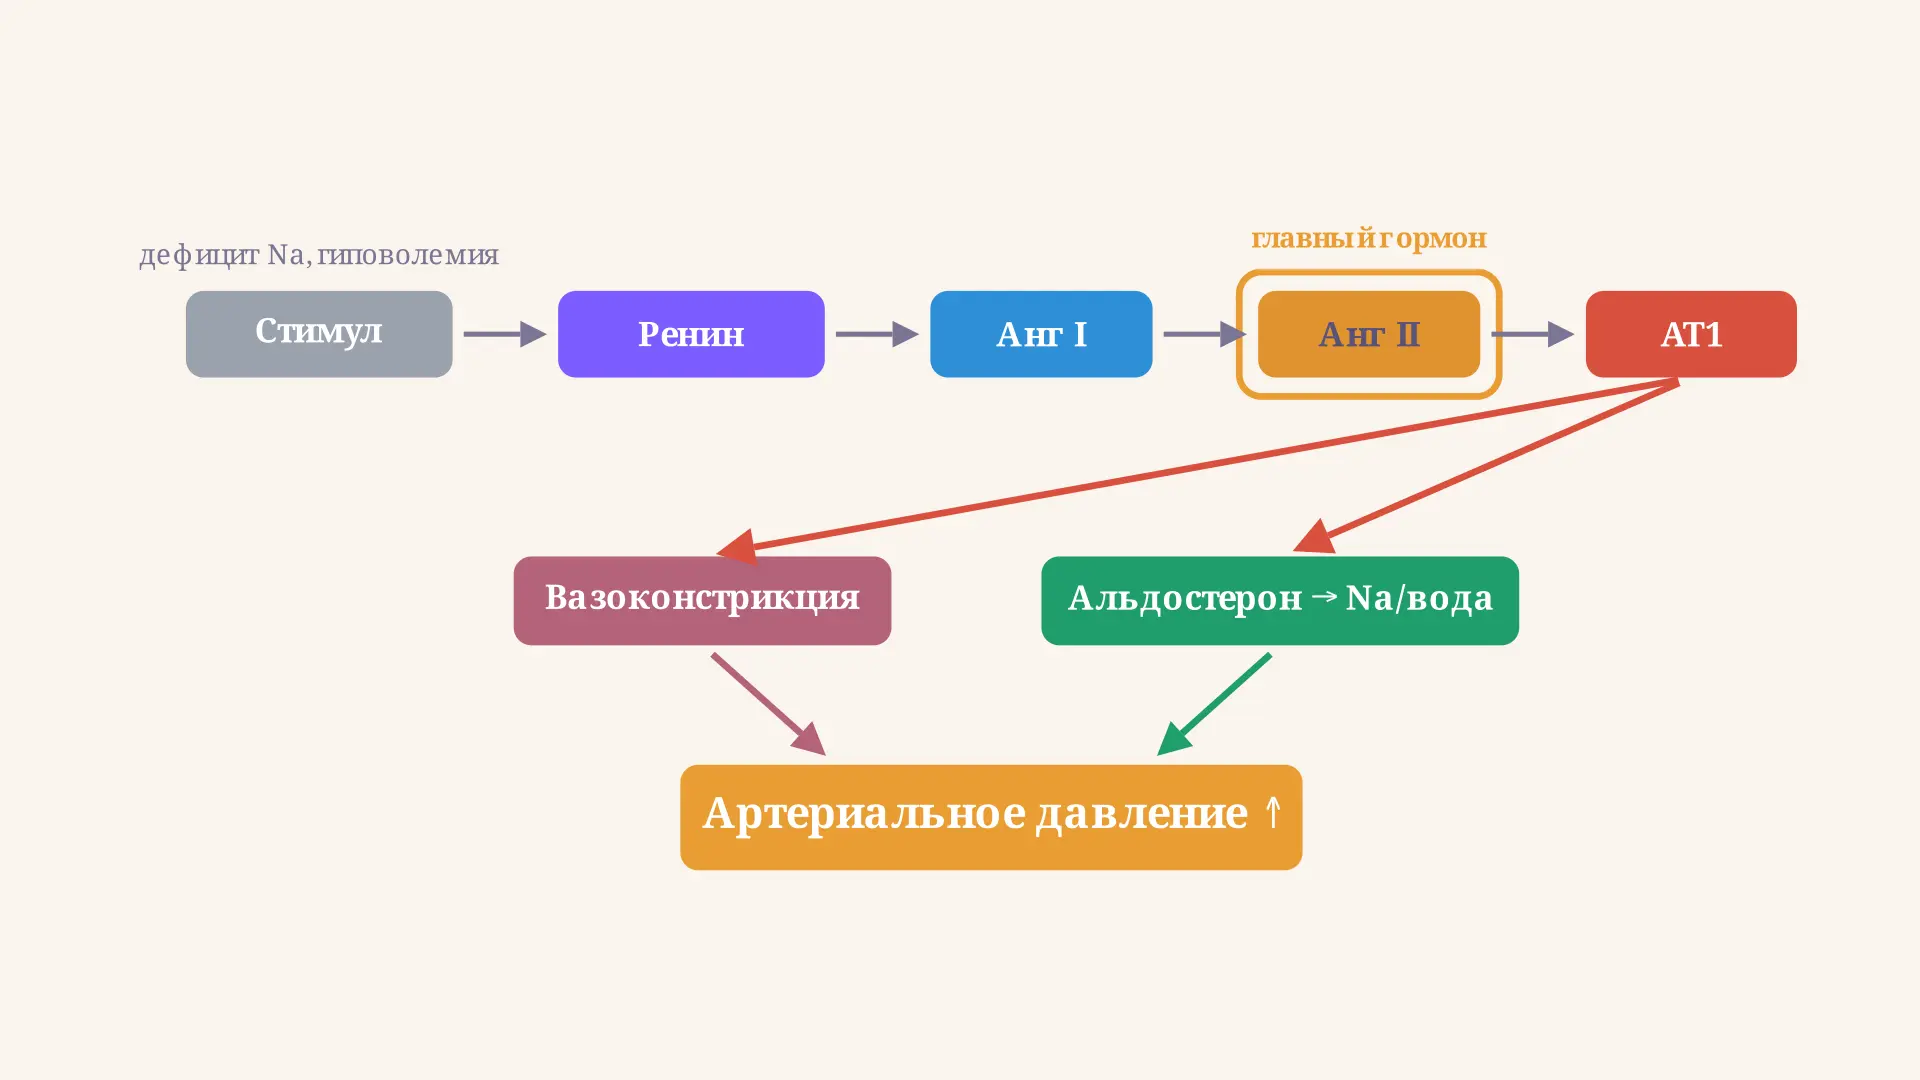
Альдостерон регулируется иначе. Для клубочковой зоны ведущими стимулами служат ангиотензин II и повышение калия; АКТГ имеет лишь кратковременный вспомогательный эффект. Так система связывает минералокортикоидный путь с объёмом жидкости и давлением, что подробнее раскрывает ренин-ангиотензин-альдостероновая система. Для синтеза половых стероидов ведущими становятся ЛГ и ФСГ. Один общий предшественник поэтому подчиняется нескольким независимым контурам регуляции.
Компартменты: почему путь прыгает между органеллами
Стероидогенез разделён между митохондрией и гладким эндоплазматическим ретикулумом. CYP11A1 находится в митохондрии, и туда же возвращаются некоторые поздние реакции: CYP11B1 завершает образование кортизола, а CYP11B2 - альдостерона. CYP17A1, CYP21A2 и ароматаза - ферменты эндоплазматического ретикулума. Перемещение промежуточных стероидов между компартментами - нормальная часть маршрута, а не ошибка схемы.
У ферментов этих двух групп различаются и системы передачи электронов, поэтому в учебной схеме полезно отмечать не только стрелку, но и место её выполнения. Митохондриальные P450 получают электроны через адренодоксиновую систему, а микросомальные ферменты ретикулума используют P450-оксидоредуктазу. Для базового уровня достаточно помнить практический вывод: последовательные стрелки могут проходить в разных органеллах одной стероидогенной клетки.
Это разделение полезно для понимания дефицитов: нарушение StAR или CYP11A1 стоит до всех развилок и снижает синтез многих стероидов. Блок одного позднего фермента оставляет часть путей доступной, а субстраты накапливаются перед препятствием. Именно поэтому профиль предшественников в лабораторном исследовании может подсказать, на каком участке возникла проблема.
Дефицит 21-гидроксилазы и логика ВДКН
Врождённая дисфункция коры надпочечников вследствие дефицита 21-гидроксилазы вызвана нарушениями гена CYP21A2. Фермент нужен в двух стрелках: прогестерон → дезоксикортикостерон и 17-гидроксипрогестерон → 11-дезоксикортизол. Поэтому тяжёлый дефект ограничивает синтез и кортизола, и альдостерона, а не только одну кортизоловую ветвь.
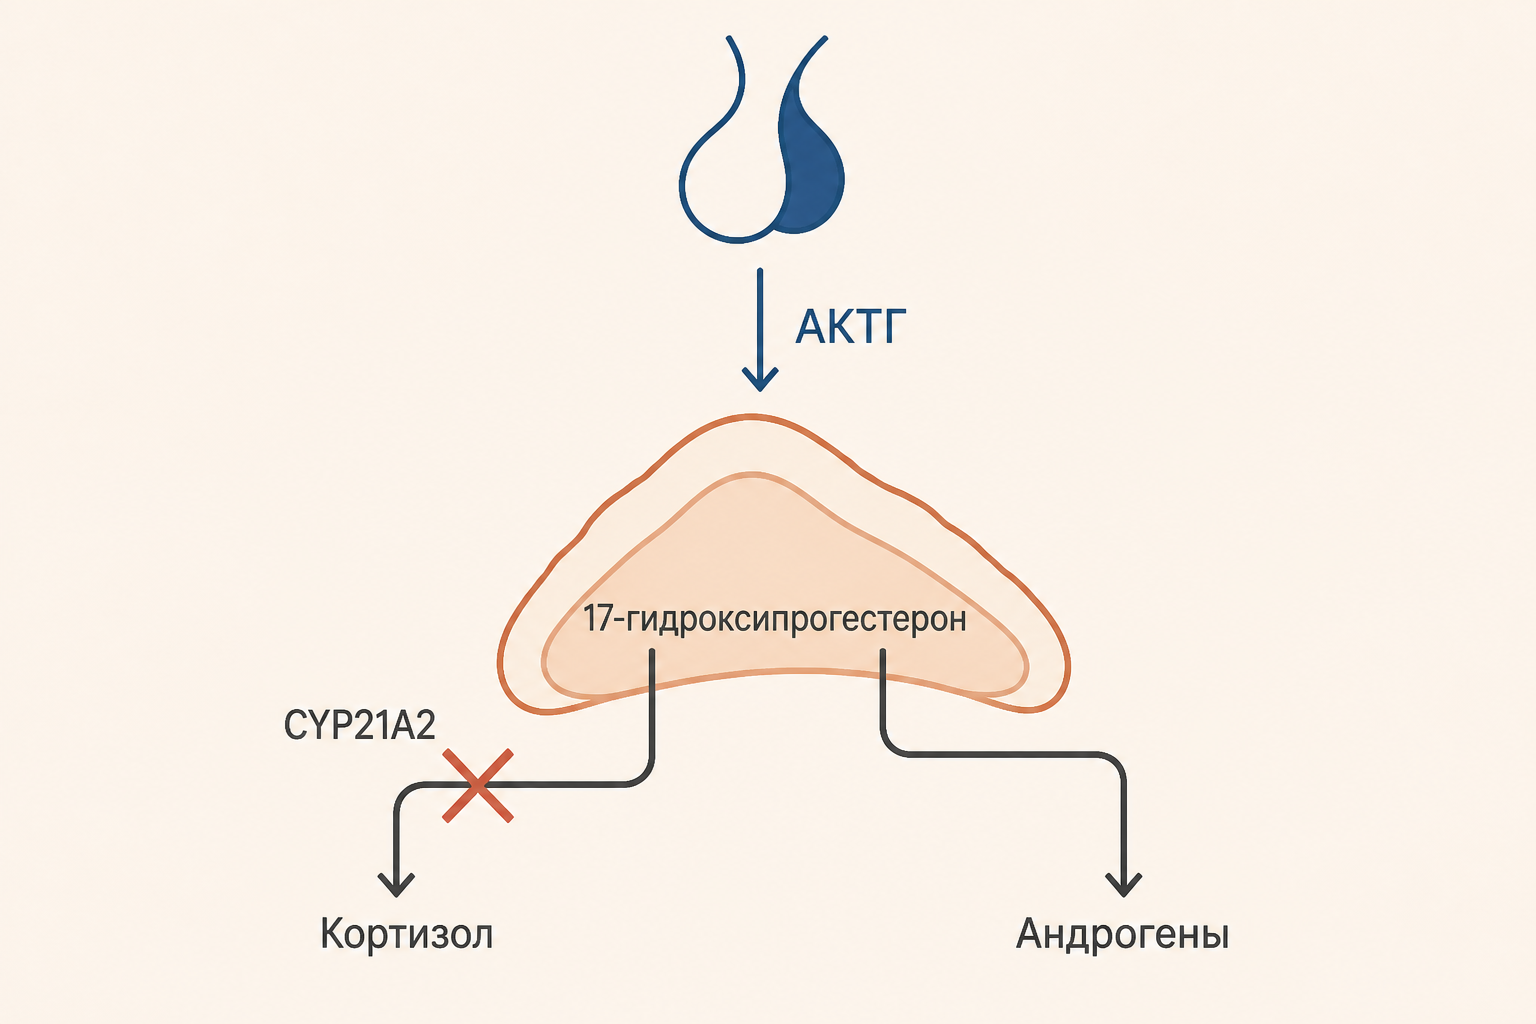
Когда кортизола мало, отрицательное торможение гипофиза ослабевает: АКТГ повышается и сильнее стимулирует кору. Перед блоком накапливается 17-гидроксипрогестерон, а часть потока перенаправляется в андрогенные пути. При сольтеряющей классической форме дефицит минералокортикоидной активности делает состояние неотложным и требует ведения эндокринологом; учебная схема не заменяет диагностику или лечение. Подтверждение опирается на гормональные исследования и, при необходимости, генетическую оценку. GeneReviews по дефициту 21-гидроксилазы описывает этот вариант как наиболее частую причину ВДКН.
Как читать схему на задаче
Начинайте с конечного гормона и двигайтесь назад до первой общей точки. Для альдостерона ищите клубочковую зону и CYP11B2; для кортизола - пучковую зону, CYP21A2 и CYP11B1; для эстрогенов - андрогенный предшественник и ароматазу. Затем добавьте ведущий регулятор. Такой порядок защищает от типичной путаницы, когда название гормона помнят, но назначают ему фермент соседней ветви.
В медицинской задаче важно отдельно назвать «дефицит продукта» и «избыток предшественника». Это две стороны одного блока. Обзор Endotext о стероидогенезе и ВДКН полезен как первичный ориентир для сверки ферментов и зон, но интерпретировать реальные анализы должен врач.
Частые ошибки
- Считать, что CYP11A1 сразу делает кортизол. Он образует общий ранний продукт - прегненолон.
- Путать StAR с ферментом: StAR переносит холестерин к месту реакции, а CYP11A1 катализирует расщепление боковой цепи.
- Приписывать альдостерону главную регуляцию АКТГ. Ведущи ангиотензин II и калий.
- Думать, что ароматаза создаёт эстрогены прямо из холестерина. Её субстратами служат андрогены.
- Объяснять дефицит CYP21A2 только избытком андрогенов и забывать о дефиците кортизола, повышении АКТГ и накоплении 17-гидроксипрогестерона.
FAQ
Что является лимитирующим этапом стероидогенеза? В острой регуляции ключевым считают доставку холестерина к внутренней мембране митохондрии с участием StAR и его превращение CYP11A1 в прегненолон. Трофические гормоны быстро влияют именно на доступность этого раннего этапа.
Почему кортизол и альдостерон синтезируются в одном органе, но регулируются по-разному? Разные зоны коры экспрессируют разные ферменты и рецепторы. Пучковая зона отвечает на АКТГ и образует кортизол, а клубочковая особенно чувствительна к ангиотензину II и калию и завершает путь к альдостерону с помощью CYP11B2.
Почему при дефиците 21-гидроксилазы повышается АКТГ? Из-за снижения кортизола ослабевает отрицательная обратная связь на гипофиз и гипоталамус. Повышенный АКТГ дополнительно стимулирует кору, но не устраняет ферментный блок и способствует накоплению предшественников.
Коротко
Стероидогенез начинается с переноса холестерина белком StAR в митохондрию и образования прегненолона ферментом CYP11A1. Дальнейший набор ферментов направляет общий предшественник к кортизолу, альдостерону, андрогенам или эстрогенам. АКТГ, ангиотензин II, калий, ЛГ и ФСГ регулируют разные ветви. При дефиците CYP21A2 падает синтез кортизола, нарушается минералокортикоидная ветвь при тяжёлых формах, растут АКТГ и 17-гидроксипрогестерон, а поток смещается к андрогенам.
Читайте также
Синтез желчных кислот: путь холестерина в печени
Синтез желчных кислот: роль CYP7A1, образование холевой и хенодезоксихолевой кислот, конъюгация, микробные превращения и энтерогепатический круговорот.
Гормоны коры надпочечников и стресс-реакция: разбор
Гормоны коры надпочечников и стресс-реакция: зоны коры, кортизол и альдостерон, ось ГГН, три стадии общего адаптационного синдрома Селье и эффекты в физиологии.
РААС: ренин-ангиотензин-альдостероновая система давления
РААС регулирует артериальное давление через ренин, ангиотензин II и альдостерон. Разбор каскада реакций, звеньев системы, фармакологических мишеней и нарушений РААС.
Синдром Конна: гиперальдостеронизм простыми словами
Синдром Конна (первичный гиперальдостеронизм): причины, патогенез, симптомы, как считают альдостерон-рениновое соотношение для скрининга и почему его путают с обычной гипертонией.
Система ренин-ангиотензин-альдостерон: каскад и давление
Система ренин-ангиотензин-альдостерон простыми словами: что запускает каскад, роль ренина, ангиотензина II и альдостерона, как регулируется давление и как работают ингибиторы АПФ и сартаны.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.