Конкурентное исключение: механизмы и примеры в природе
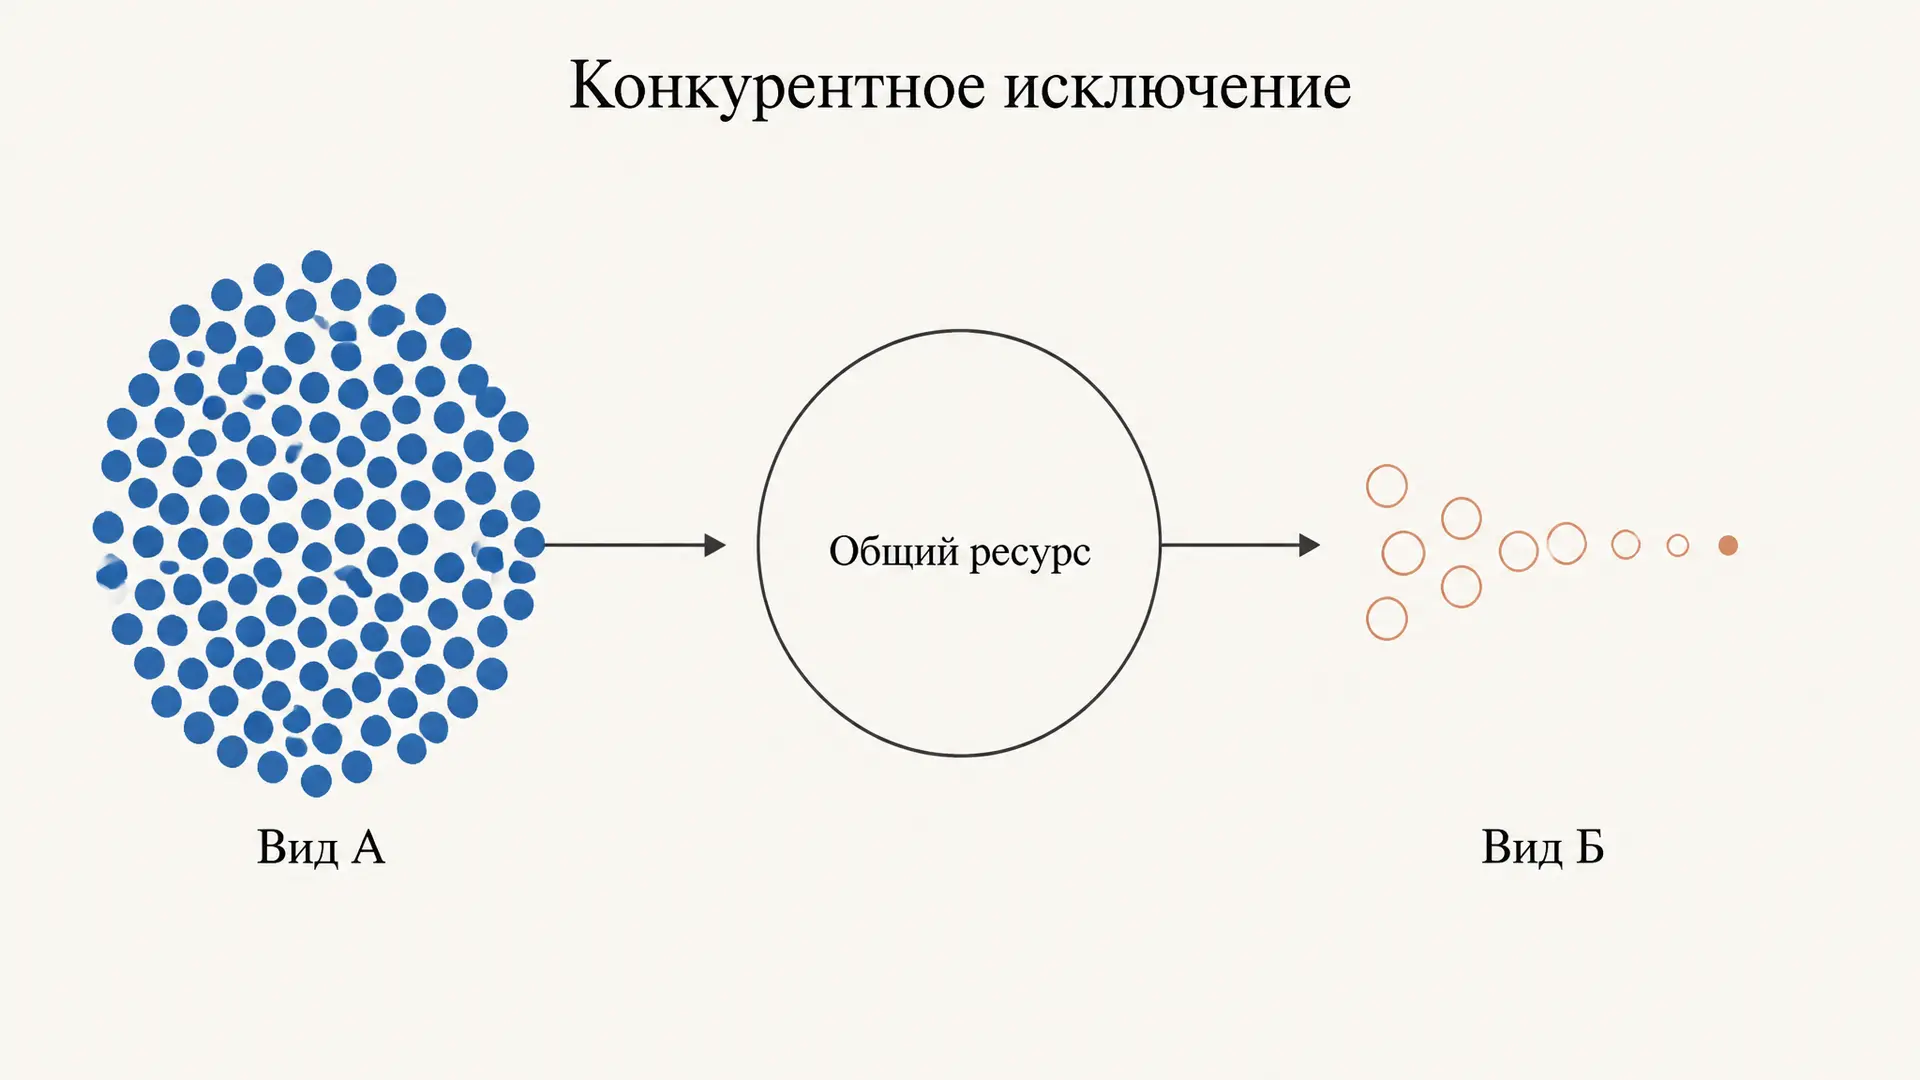
Конкурентное исключение - это исход межвидовой конкуренции, при котором один вид полностью вытесняет другой из сообщества. В учебниках его чаще всего вспоминают как формулировку принципа Гаузе, но в реальной экологии интереснее другой вопрос: какой именно признак решает, кто победит, и почему в поле полное вытеснение наблюдается заметно реже, чем предсказывает теория. Ниже разберём физиологический механизм исключения (правило ), два типа конкуренции, эволюционные и средовые «предохранители», которые останавливают вытеснение на полпути, и способы доказать исключение по данным. Чтобы сразу посмотреть, какой из двух видов выигрывает при конкретных параметрах роста, задайте их в калькуляторе ниже.
Что такое конкурентное исключение
Строгая формулировка звучит так: два вида, ограниченные одним и тем же лимитирующим ресурсом и живущие в неизменной однородной среде, не могут устойчиво сосуществовать. Один из них вытесняется до нуля. Ключевых слов здесь три, и все они - условия, а не украшения.
Один лимитирующий ресурс. Если численность обоих видов упирается в разные факторы (один в азот, другой в свет), исключения не будет: каждый ограничен своим потолком. Общее правило конкуренции за ресурсы: число устойчиво сосуществующих видов не может превышать число независимых лимитирующих ресурсов.
Неизменная среда. Исключение требует времени: вытеснение идёт со скоростью, пропорциональной разнице в приспособленности, и в лабораторной культуре занимает десятки поколений. Если среда меняется быстрее, исход не успевает реализоваться.
Однородное пространство. В мозаичной среде у проигрывающего вида почти всегда находится участок-убежище, где локальные условия переворачивают соотношение сил.
Подробный разбор самой формулировки, опытов на инфузориях и модели Лотки-Вольтерры - в статье про принцип конкурентного исключения Гаузе, здесь мы идём дальше и смотрим на механизм.
Правило R*: кто именно побеждает
Классическая модель Лотки-Вольтерры описывает исход через коэффициенты конкуренции, но не объясняет, откуда они берутся. Ресурсная теория конкуренции (Д. Тилман) даёт физиологический ответ. Скорость роста популяции на лимитирующем ресурсе концентрации описывается уравнением Моно:
где - максимальная удельная скорость роста, - константа полунасыщения (концентрация, при которой рост идёт вполовину максимума). Популяция удерживается, пока рост покрывает потери (смертность, вымывание, выедание). Приравняв , получаем пороговую концентрацию ресурса:
Это минимальная концентрация ресурса, при которой вид ещё держится в нуле прироста. Дальше работает простое правило: побеждает вид с наименьшим . Он продавливает концентрацию общего ресурса ниже порога соперника, после чего у того рост перестаёт покрывать смертность, и численность падает экспоненциально.
Важно, что не сводится ни к «быстрому росту», ни к «экономности» по отдельности. Вид с огромным , но плохим сродством к ресурсу (большое ) проигрывает медленному, но эффективному конкуренту - именно так объясняется вытеснение быстрорастущих зелёных водорослей диатомеями при дефиците кремния в опытах Тилмана.
Эксплуатация и интерференция: два механизма
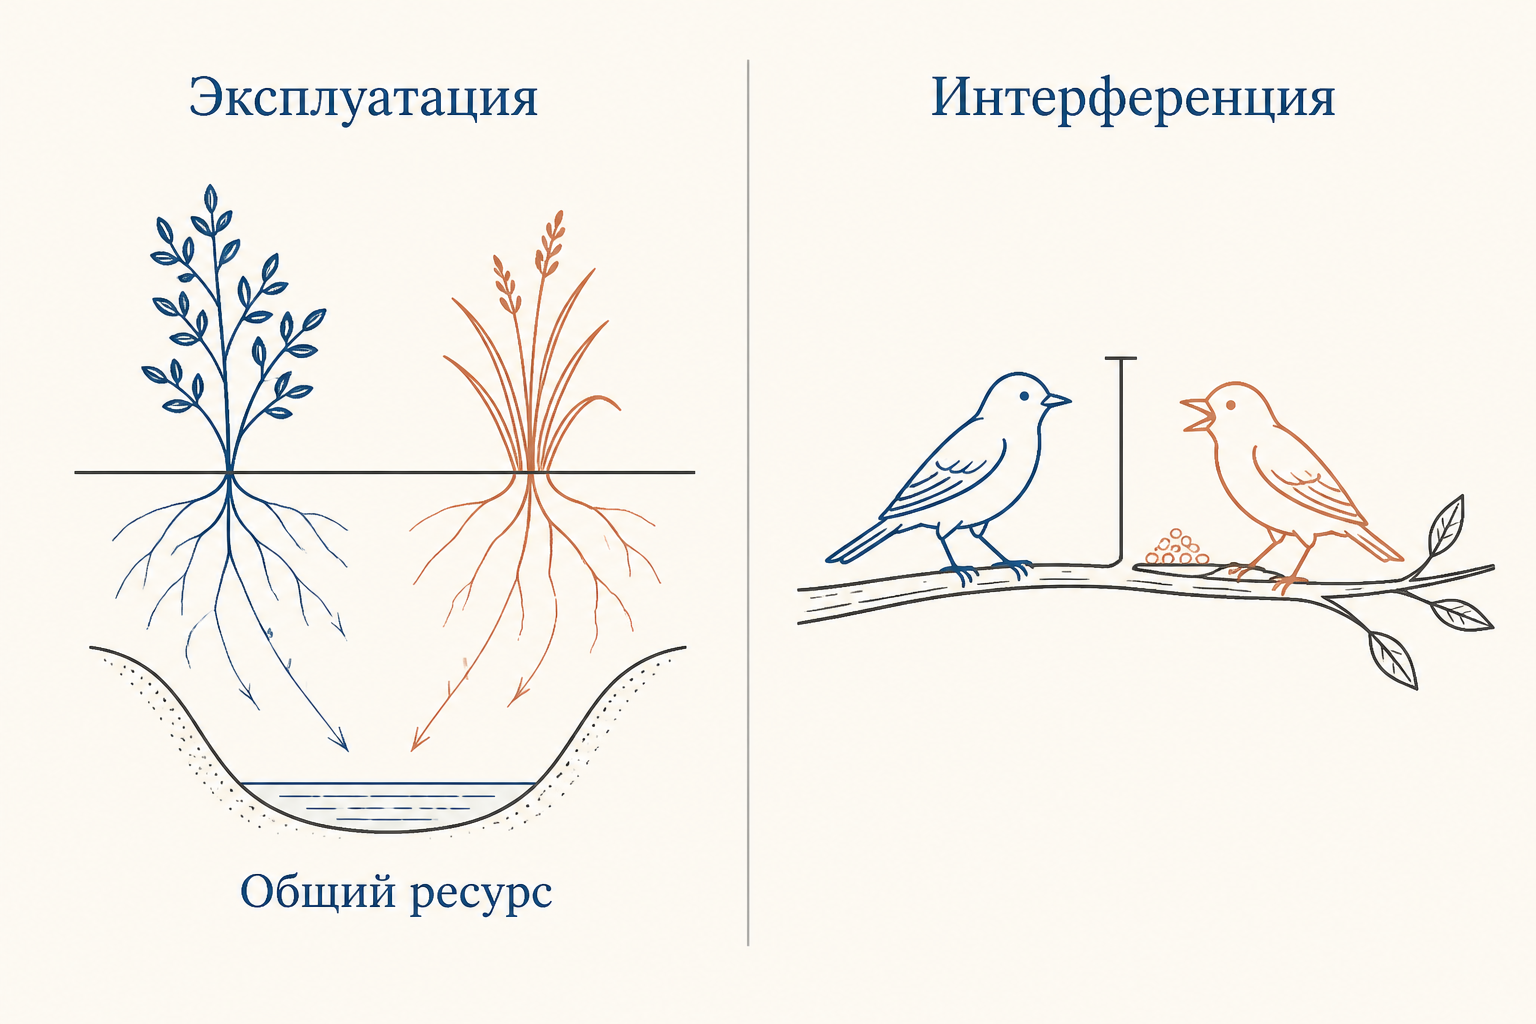
Правило описывает эксплуатационную конкуренцию: виды не взаимодействуют напрямую, они просто откачивают общий ресурс, и проигравший умирает от его нехватки. Прямого контакта может не быть вообще, конкуренты даже способны не встречаться во времени.
Второй механизм - интерференционная конкуренция: один вид напрямую мешает другому пользоваться ресурсом. Территориальность у птиц и грызунов, аллелопатия у растений (выделение веществ, подавляющих прорастание соседей), антибиоз у микроорганизмов, клептопаразитизм у хищников. Здесь исключение идёт быстрее и почти не зависит от эффективности использования ресурса: победитель определяется агрессивностью и размером, а не значением .
На практике механизмы смешаны. Аргентинский муравей вытесняет местные виды в Средиземноморье и Калифорнии обоими способами сразу: быстрее находит источники пищи (эксплуатация) и физически изгоняет соперников с кормовых точек (интерференция).
Почему полное вытеснение в природе редкость
Списки сосуществующих близких видов длиннее, чем допускает строгая теория. Причин несколько.
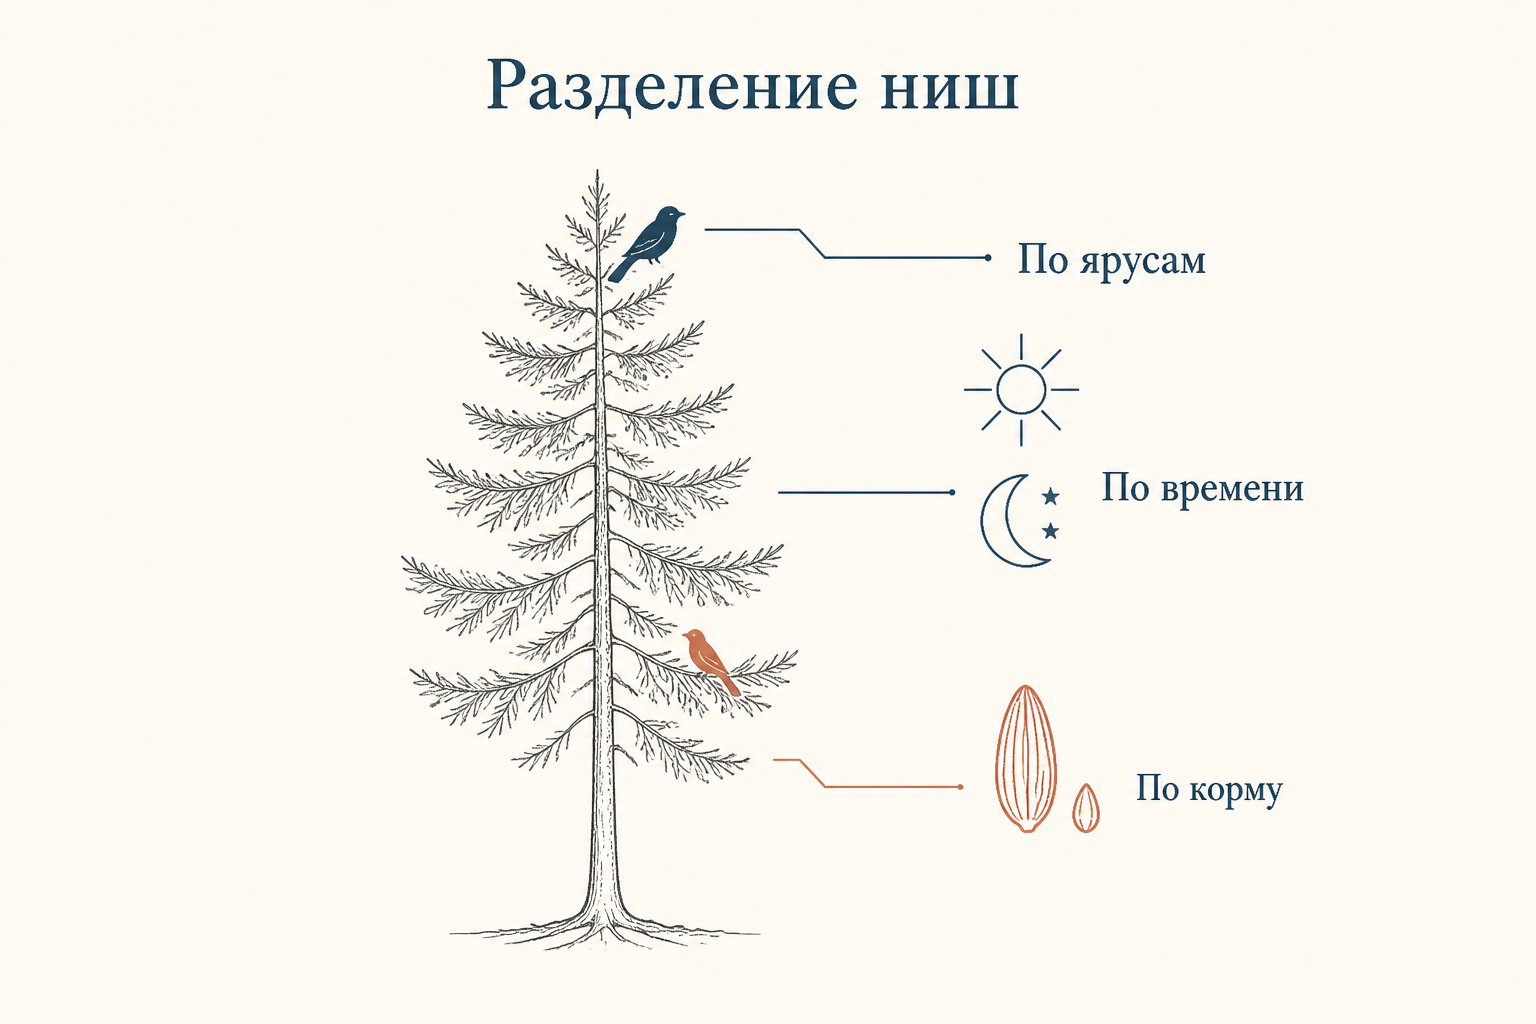
Разделение ниш. Виды расходятся по осям среды: по ярусам (пять видов славок Мак-Артура кормятся на разных участках одной ели), по времени активности (дневные и ночные хищники), по размеру добычи. Формально каждый становится ограничен «своим» ресурсом, и условие исключения снимается. Геометрию такого расхождения удобно описывать через n-мерную нишу Хатчинсона.
Нарушения и нестационарность. Штормы, пожары, паводки, сезонное перемешивание воды сбрасывают систему до того, как вытеснение завершится. Отсюда гипотеза промежуточных нарушений: максимальное видовое богатство приходится не на спокойную среду, а на умеренно нарушаемую.
Хищники и паразиты. Выедание сильнее давит на самый многочисленный вид, снимая с проигрывающего конкурентный пресс. Это хищничество, сдерживающее конкуренцию: морская звезда Pisaster, поедая доминирующую мидию, удерживает в литорали более десятка видов, которые без неё вытесняются за считанные сезоны.
Пространственная мозаика и расселение. Слабый конкурент выживает как «беглец»: он хуже держит захваченный участок, но быстрее занимает освободившиеся. Компромисс между конкурентоспособностью и расселением поддерживает оба вида на уровне метапопуляции.
Отдельный сюжет - парадокс планктона Хатчинсона: в толще воды десятки видов водорослей делят три-четыре лимитирующих элемента, что теория запрещает. Объяснение как раз в нестационарности: концентрации биогенов колеблются, лимитирующий фактор меняется в течение сезона, и ни один не успевает сработать до конца.
Смещение признаков как выход из-под конкуренции
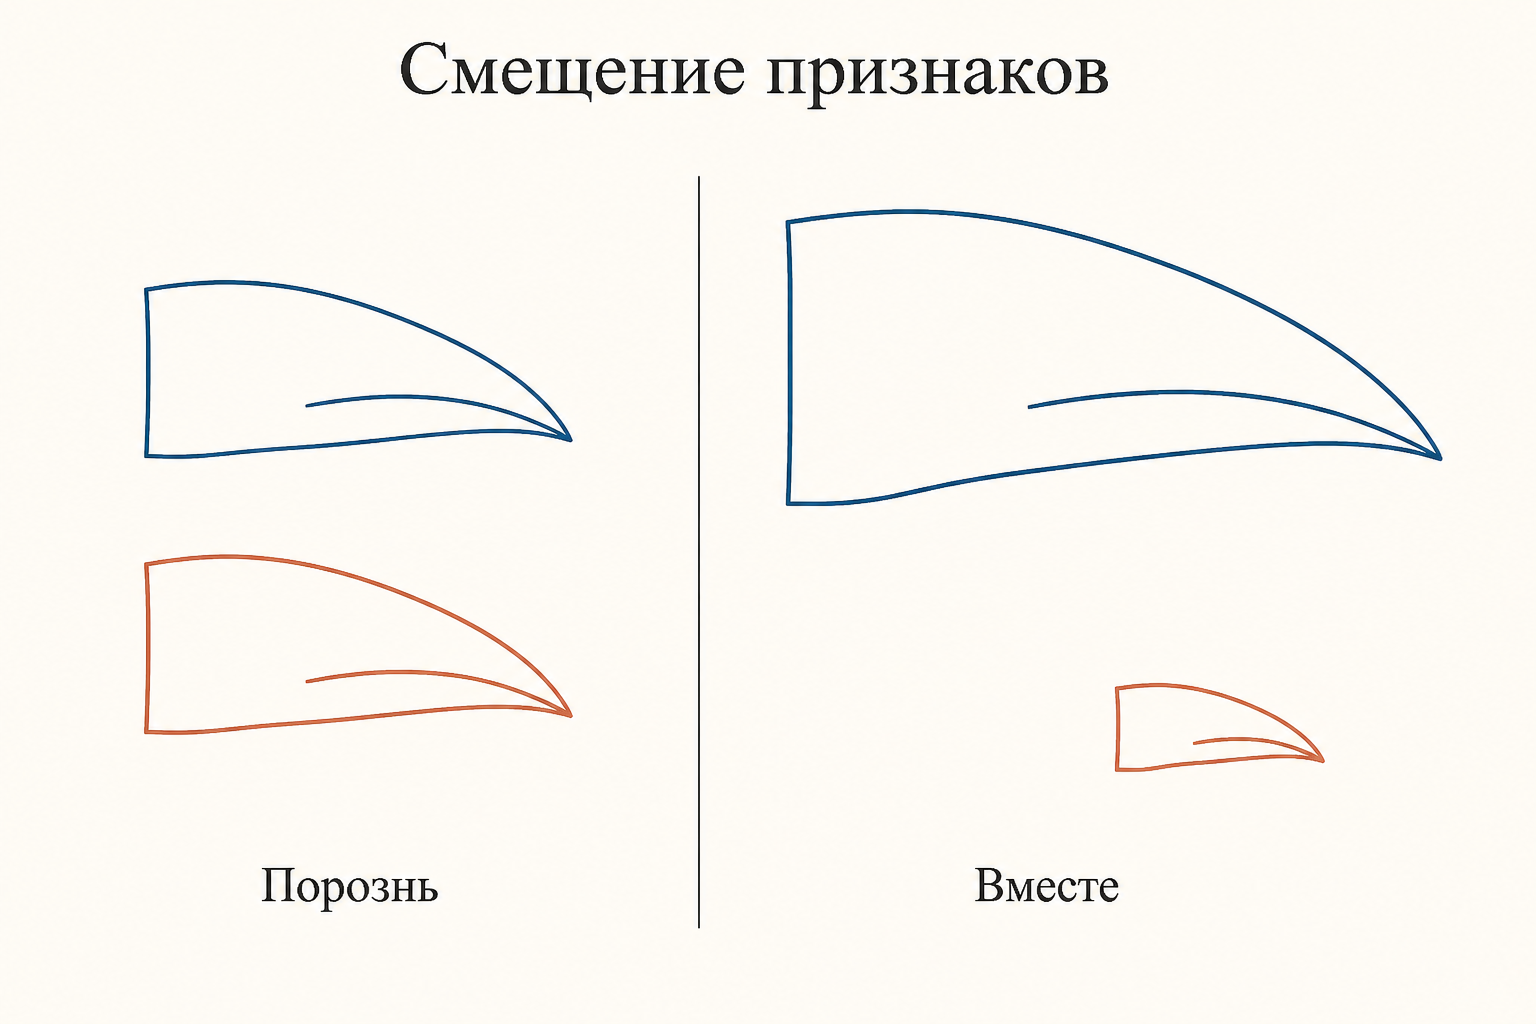
Если вытеснение растянуто во времени, отбор успевает изменить сами виды. Смещение признаков - эволюционное расхождение морфологии в зоне совместного обитания при совпадении признаков там, где виды живут порознь.
Хрестоматийный пример - галапагосские вьюрки Geospiza fortis и G. fuliginosa. На островах, где каждый вид живёт один, средняя высота клюва у обоих около 9-10 мм. На островах, заселённых обоими, у fortis клюв смещается к 12 мм, у fuliginosa - к 8 мм. Разошлись размеры семян в рационе, и с ними разошлись значения по разным фракциям корма.
Смещение признаков - прямое следствие конкурентного исключения, а не его опровержение: отбор устраняет самых похожих особей, потому что именно они конкурируют жёстче всего.
Вытеснение при инвазиях
Быстрее всего исключение наблюдается там, где человек свёл вместе виды, не имевшие общей эволюционной истории. Серая крыса вытеснила чёрную из городов Европы, американская норка - европейскую в большей части ареала, серая белка - обыкновенную в Британии (там к конкуренции добавился парапоксвирус, к которому вселенец устойчив). Ротан-головёшка вытесняет карасей и тритонов из мелких замкнутых водоёмов.
Общая черта таких случаев: у вселенца нет времени на разделение ниш, а у аборигена - на смещение признаков. Соотношение реализуется в чистом виде за десятки лет, а не за тысячи.
Как доказать исключение по данным
Отрицательная корреляция численностей двух видов - сама по себе не доказательство. Она возникает и без конкуренции: виды могут просто предпочитать разные условия. Убедительная аргументация строит цепочку из трёх звеньев.
- Показать перекрывание ниш. Индекс перекрывания Пианки по долям ресурсов даёт значение от 0 до 1; величины выше 0,6 указывают на реальную конкуренцию за общий ресурс.
- Показать нехватку ресурса. Без лимитирования перекрывание ниш безобидно: конкуренции нет, пока ресурса хватает обоим.
- Поставить эксперимент с удалением. Убрать один вид и получить рост численности или расширение ниши у второго. Это единственное прямое свидетельство; всё остальное косвенно.
Динамику самого вытеснения удобно описывать через логистическую модель роста с конкурентным членом: проигравший уходит по экспоненте со скоростью, равной разнице между его ростом при равновесной концентрации ресурса и смертностью.
Частые ошибки
- Путают нишу и местообитание. Два вида на одном дереве не нарушают принцип, если один кормится в кроне, а другой под корой: местообитание общее, ниши разные.
- Считают исключение мгновенным. Вытеснение занимает десятки и сотни поколений; в поле процесс почти всегда застают незавершённым.
- Берут как критерий победы. Побеждает наименьший , а он зависит и от , и от смертности . Быстрорастущий вид часто проигрывает при низкой концентрации ресурса.
- Выводят конкуренцию из корреляции численностей. Нужны перекрывание ниш, дефицит ресурса и эксперимент с удалением.
- Забывают про хищников. При сильном выедании доминанта конкуренция не доходит до исключения, и модель без хищника предсказывает неверный исход.
FAQ
Чем конкурентное исключение отличается от принципа Гаузе? Принцип Гаузе - формулировка запрета: полные конкуренты не сосуществуют. Конкурентное исключение - сам процесс и его результат, то есть вытеснение вида до нуля. Правило добавляет к запрету механизм и позволяет заранее сказать, кто именно проиграет.
Может ли вытесненный вид вернуться? Да, если изменится лимитирующий фактор или соотношение смертностей. Например, сезонное падение температуры меняет у видов по-разному, и знак разницы переворачивается. Поэтому в сезонной среде виды нередко чередуются в доминировании вместо окончательного исключения.
Сколько видов может жить на одном ресурсе? В равновесной однородной среде - один, с наименьшим . Число сосуществующих видов ограничено числом независимых лимитирующих ресурсов. Все прочие случаи объясняются нарушением условий: неоднородностью, колебаниями среды, хищничеством или ограниченным расселением.
Коротко
Конкурентное исключение - вытеснение одного вида другим при конкуренции за общий лимитирующий ресурс. Механизм задаётся правилом : выигрывает тот, кто удерживается при более низкой концентрации ресурса, причём порог зависит и от скорости роста, и от сродства к ресурсу, и от смертности. Реализуется исключение через эксплуатацию (истощение ресурса) или интерференцию (прямое подавление). В природе процесс редко доходит до конца: его останавливают разделение ниш, нарушения среды, хищничество и пространственная мозаика, а на эволюционном масштабе - смещение признаков. Доказательство исключения требует связки из перекрывания ниш, дефицита ресурса и эксперимента с удалением.
Читайте также
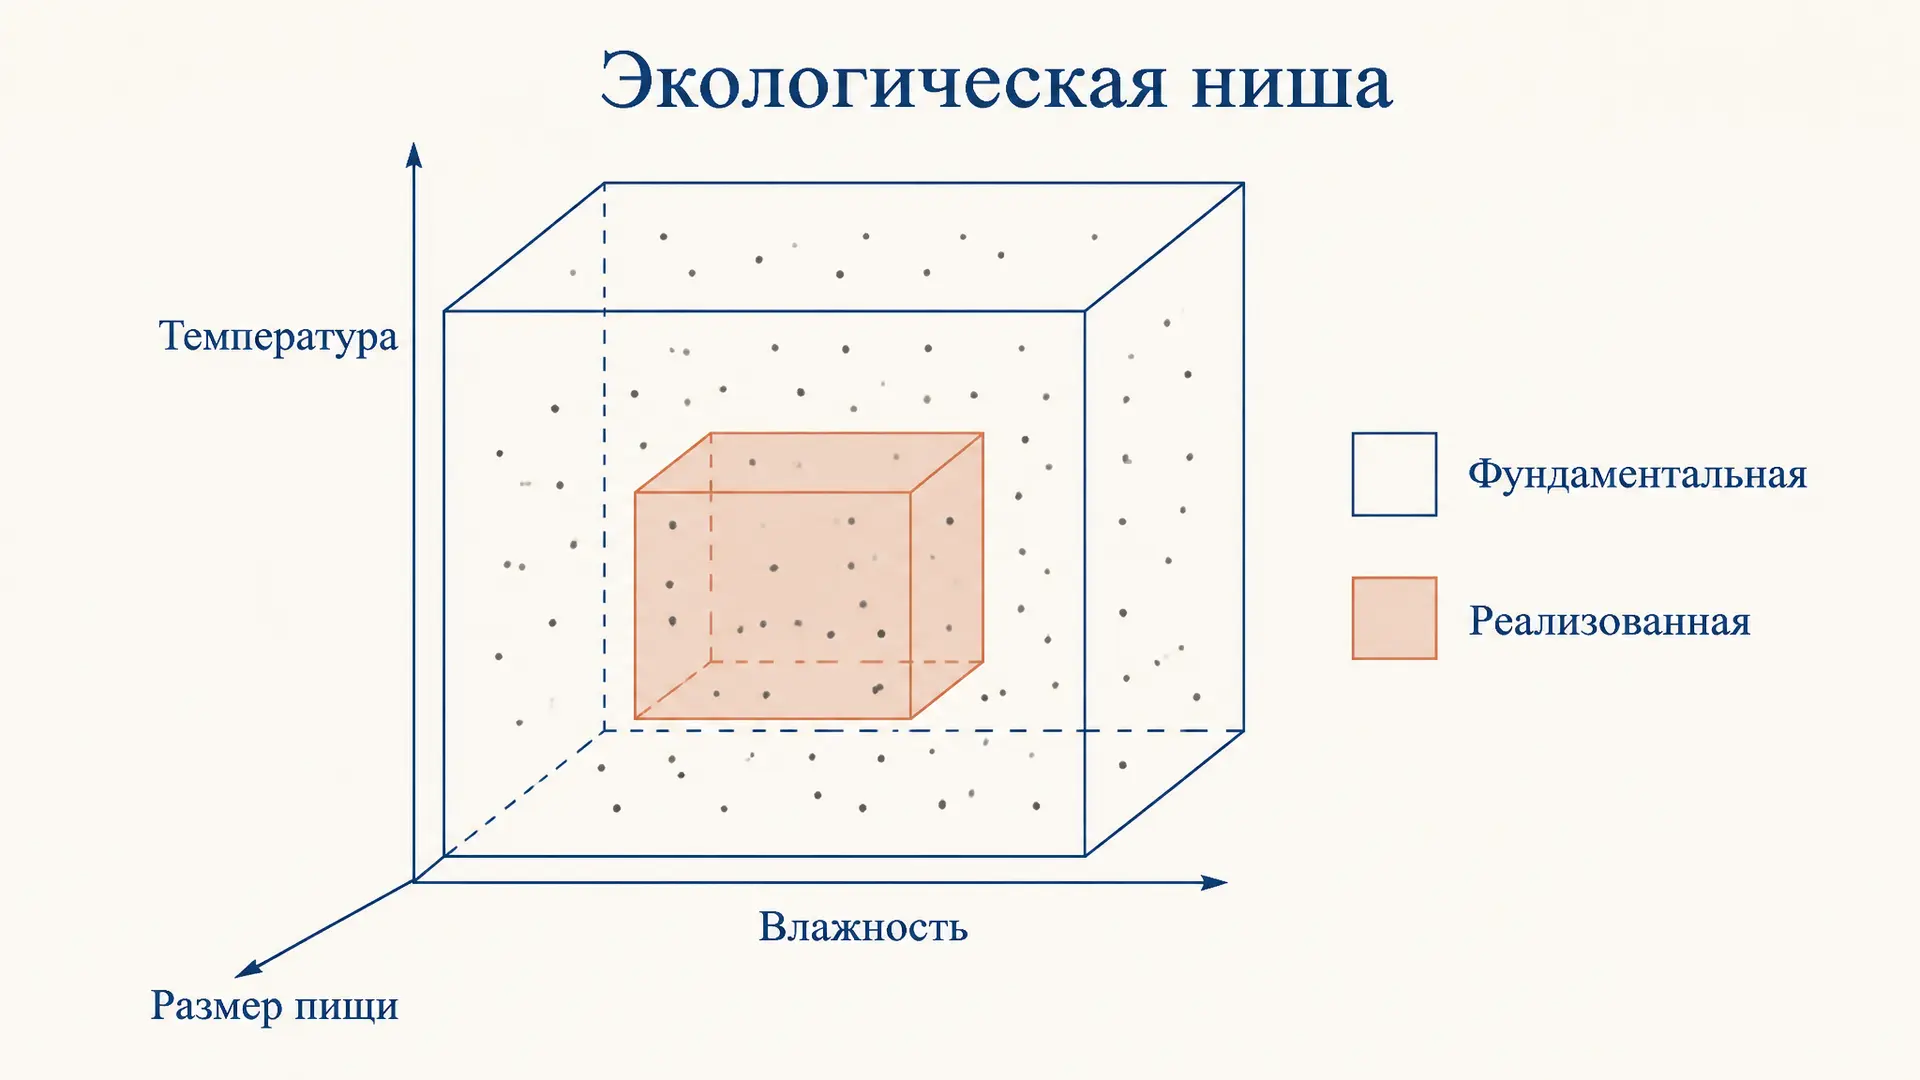
Экологическая ниша Хатчинсона: n-мерный гиперобъём
Экологическая ниша Хатчинсона как n-мерный гиперобъём: фундаментальная и реализованная ниша, оси среды, перекрывание ниш, связь с принципом Гаузе и решение задач.
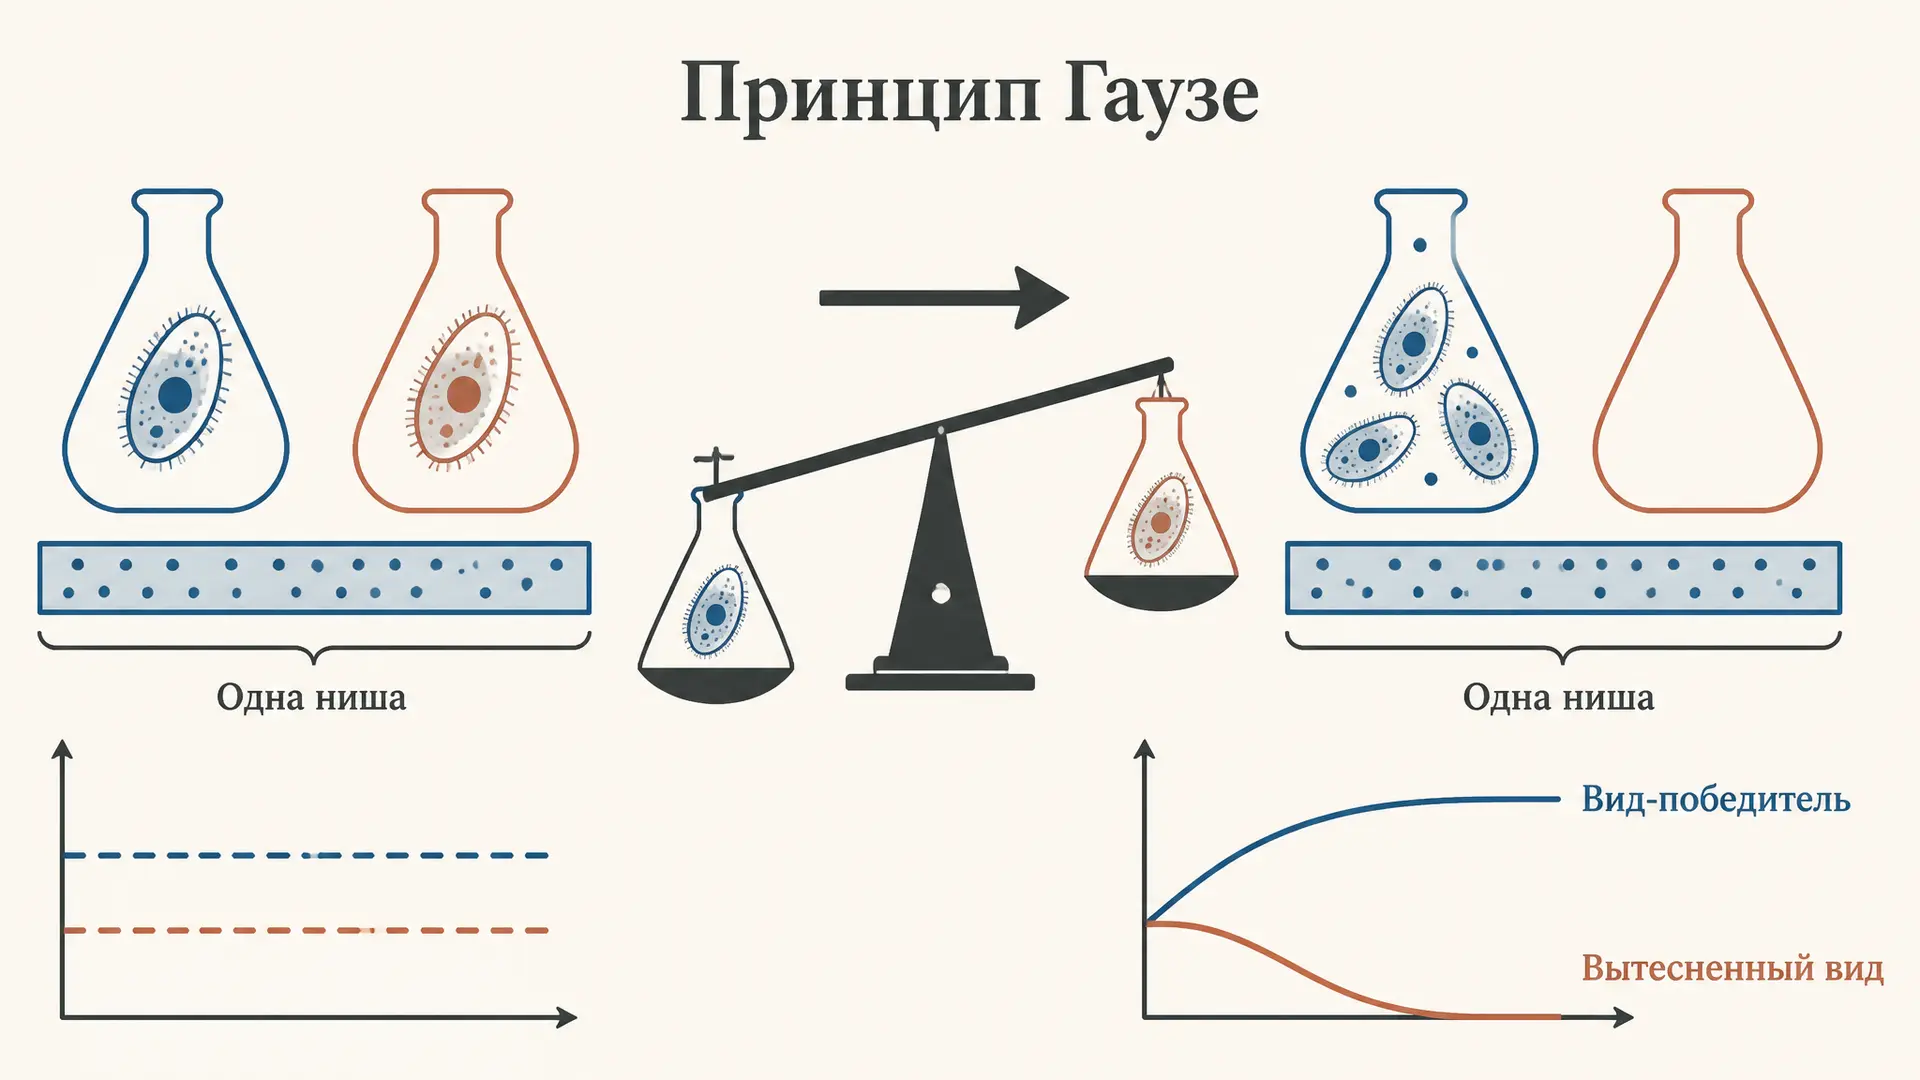
Принцип конкурентного исключения Гаузе: суть и примеры
Принцип конкурентного исключения Гаузе: формулировка, опыты с инфузориями, условия сосуществования видов, разделение ниш и решение типовых задач по экологии.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.
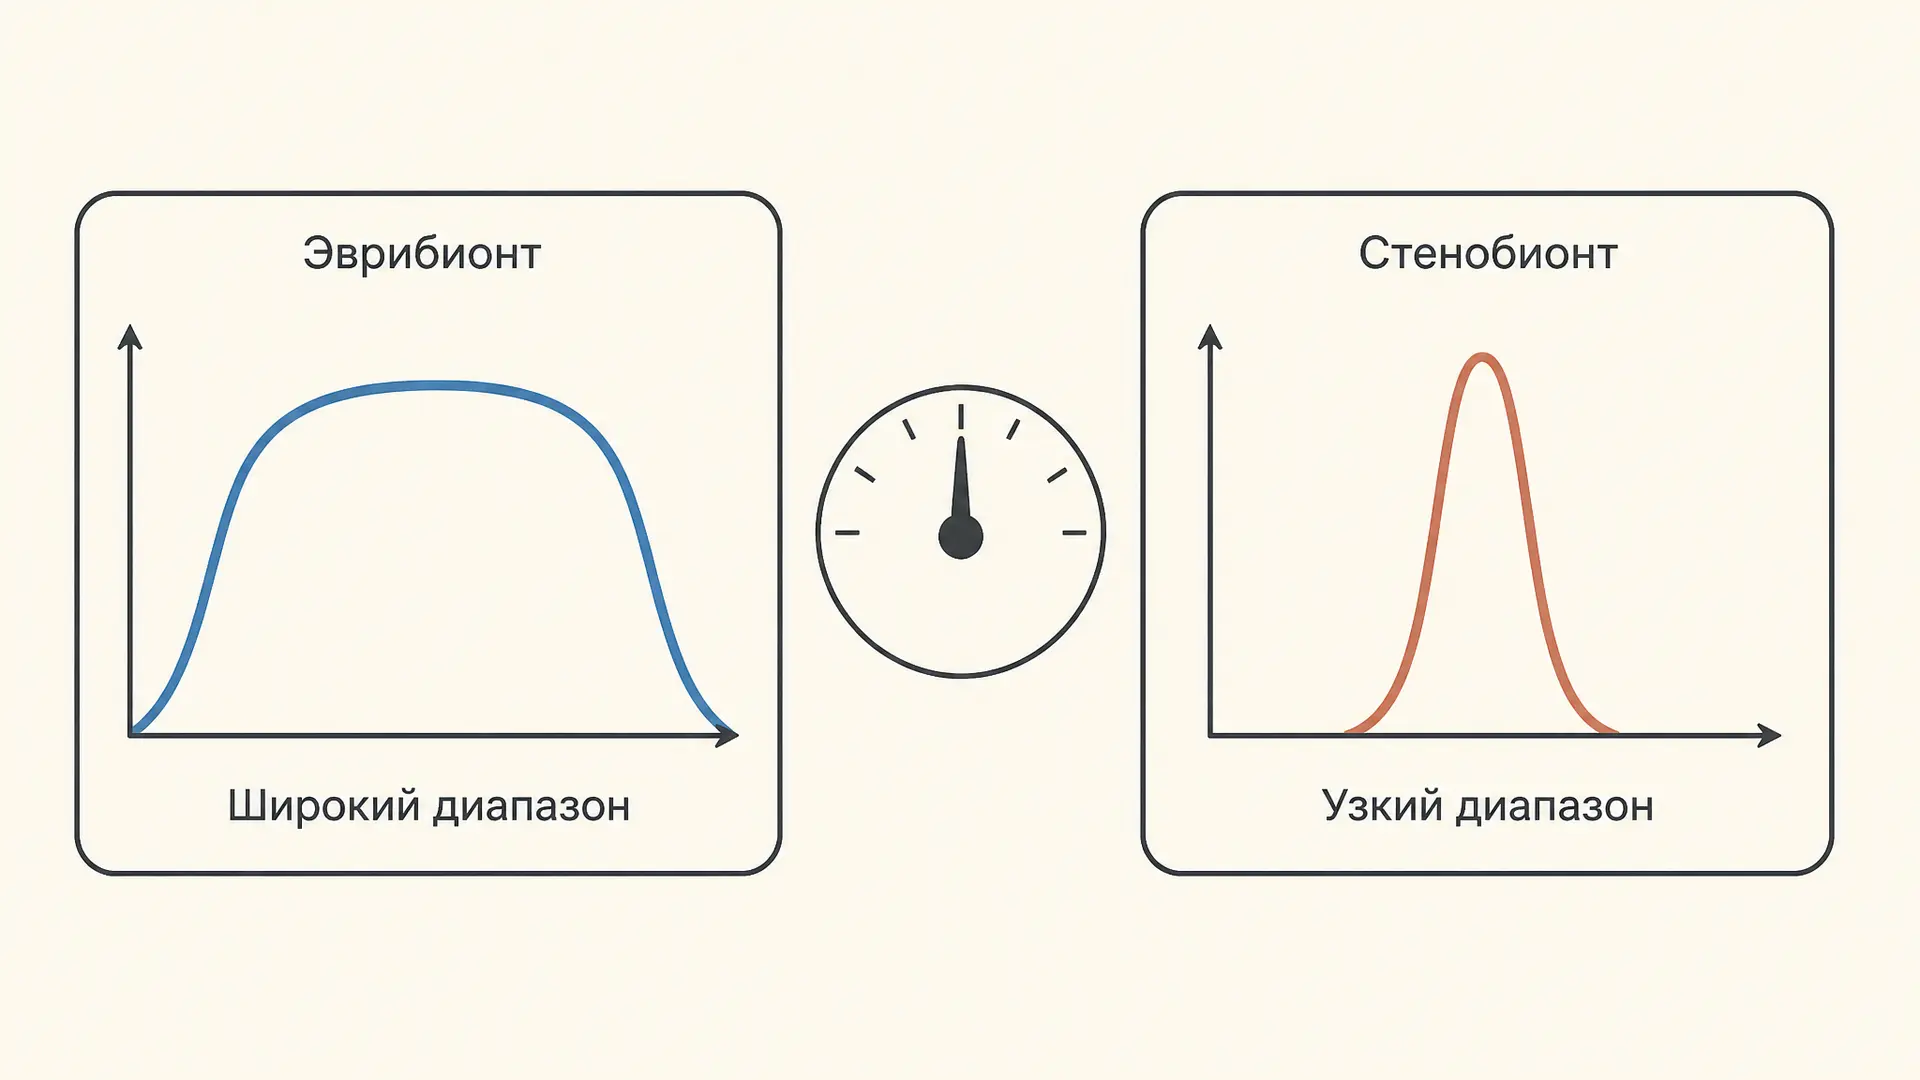
Эврибионты и стенобионты: экологическая пластичность
Эврибионты и стенобионты: как сравнивать диапазоны толерантности по температуре, солёности, кислороду и пище, читать графики и применять биоиндикацию.
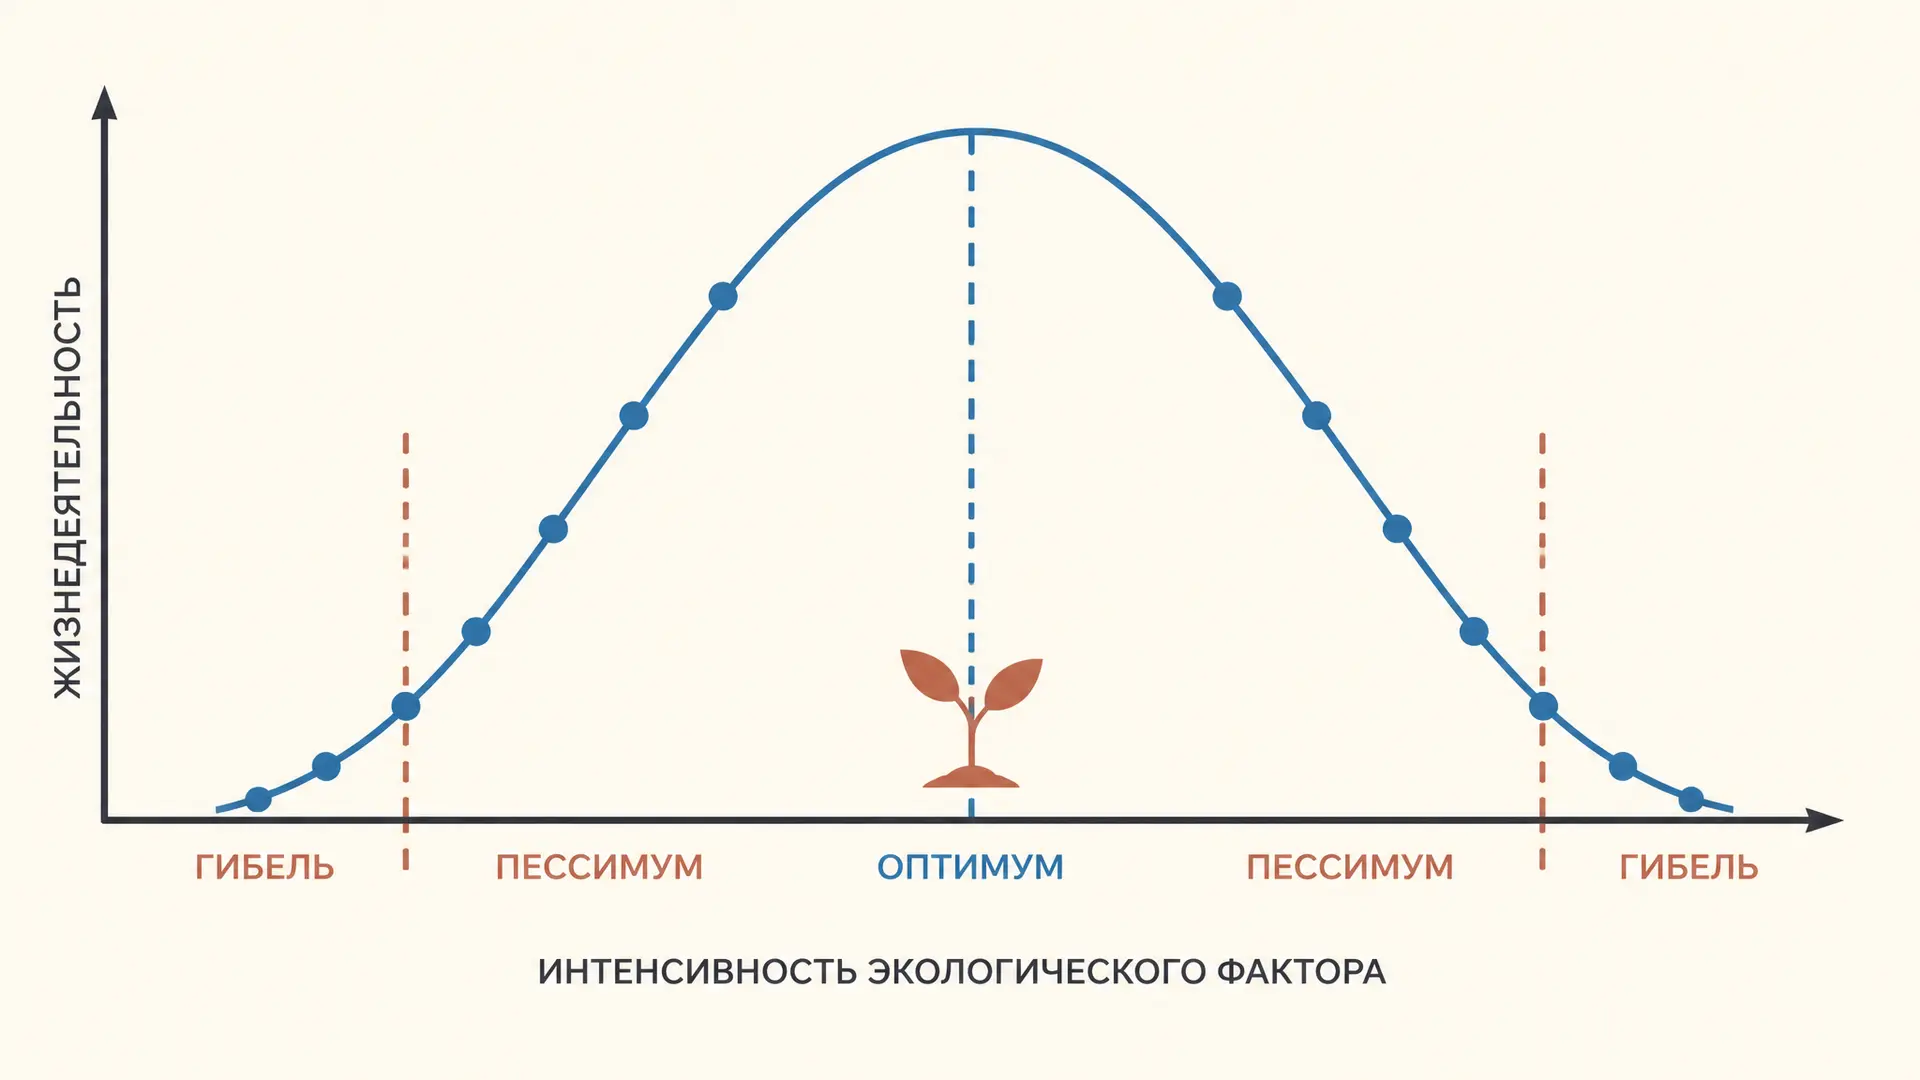
Закон толерантности Шелфорда: минимум и максимум
Закон толерантности Шелфорда: как минимум, максимум и оптимум фактора ограничивают организм, чем пессимум отличается от гибели и как построить кривую.
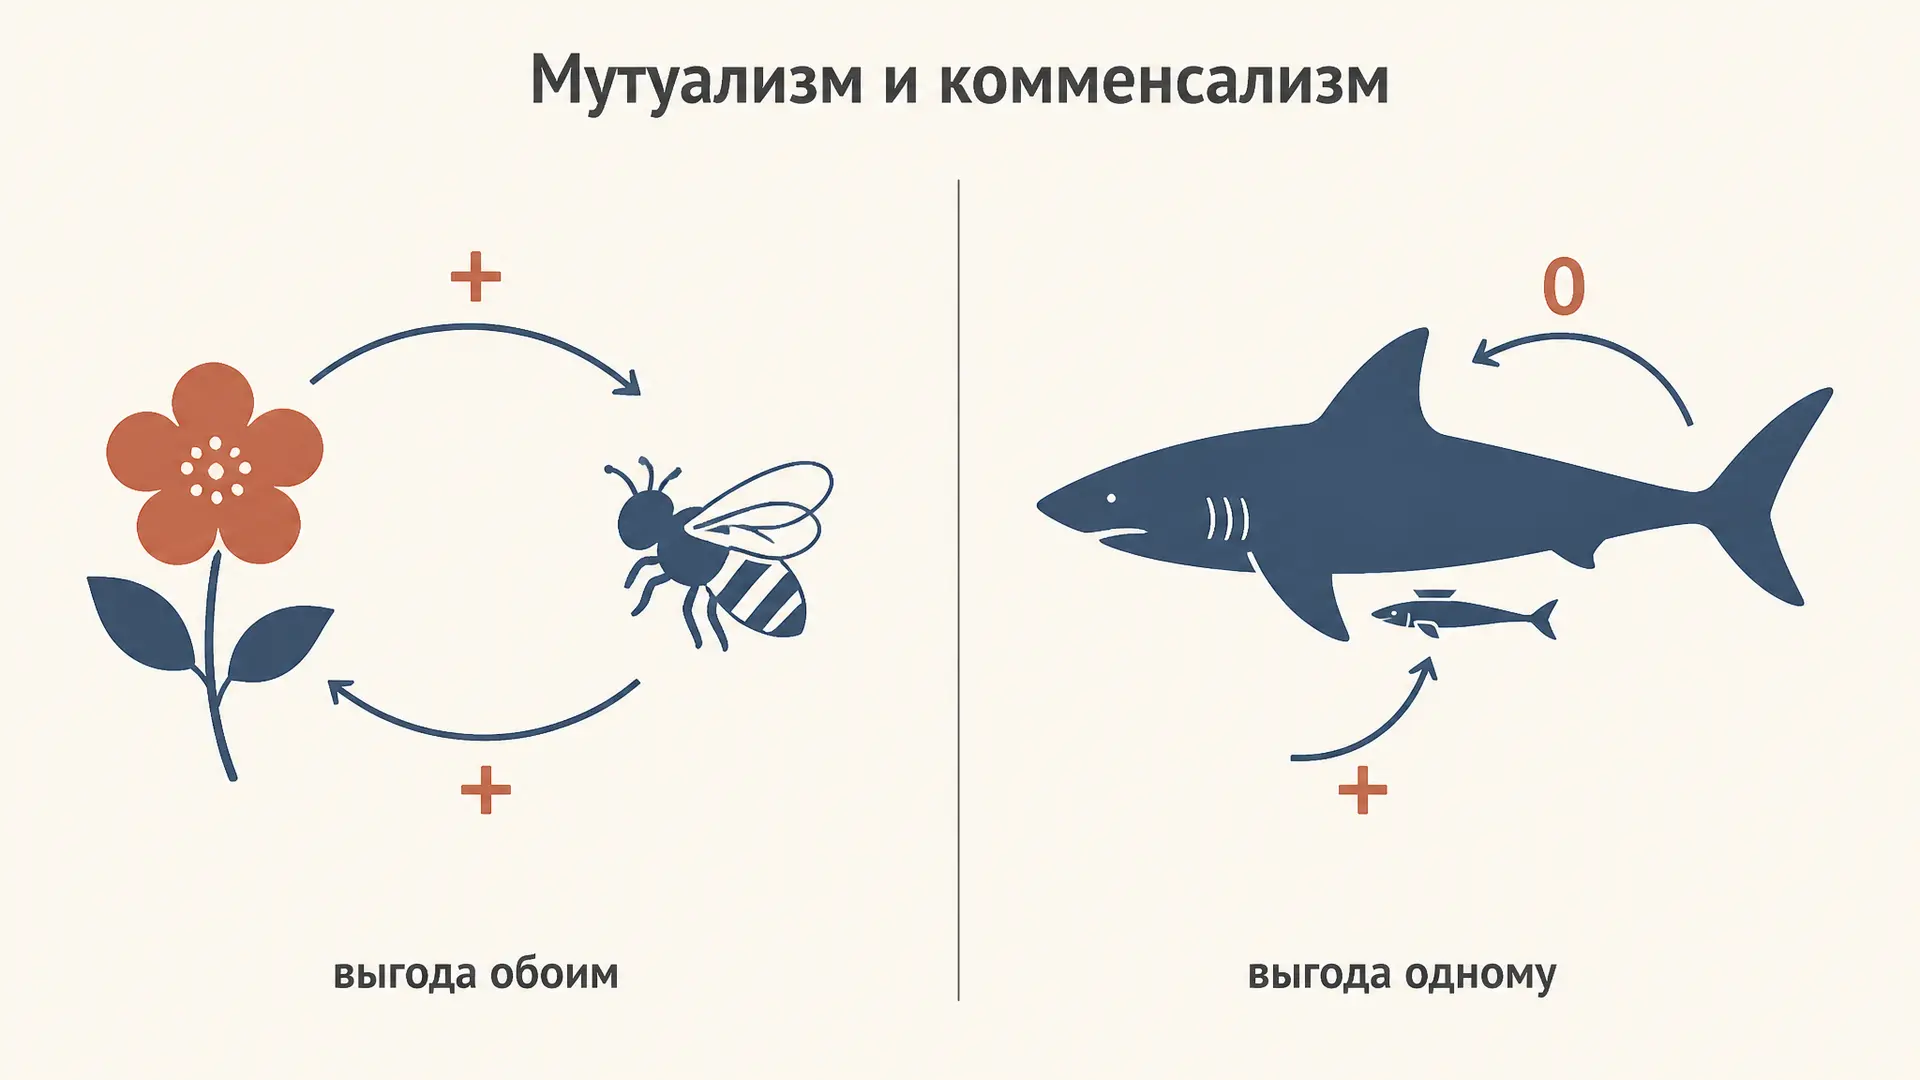
Мутуализм и комменсализм: как отличить по знакам
Мутуализм и комменсализм: чем взаимная выгода отличается от нахлебничества, как доказывают нулевой эффект на партнёра, формы и облигатность связей, типовые ошибки и разбор задач.