Сигнальный путь Wnt: как β-катенин включает гены
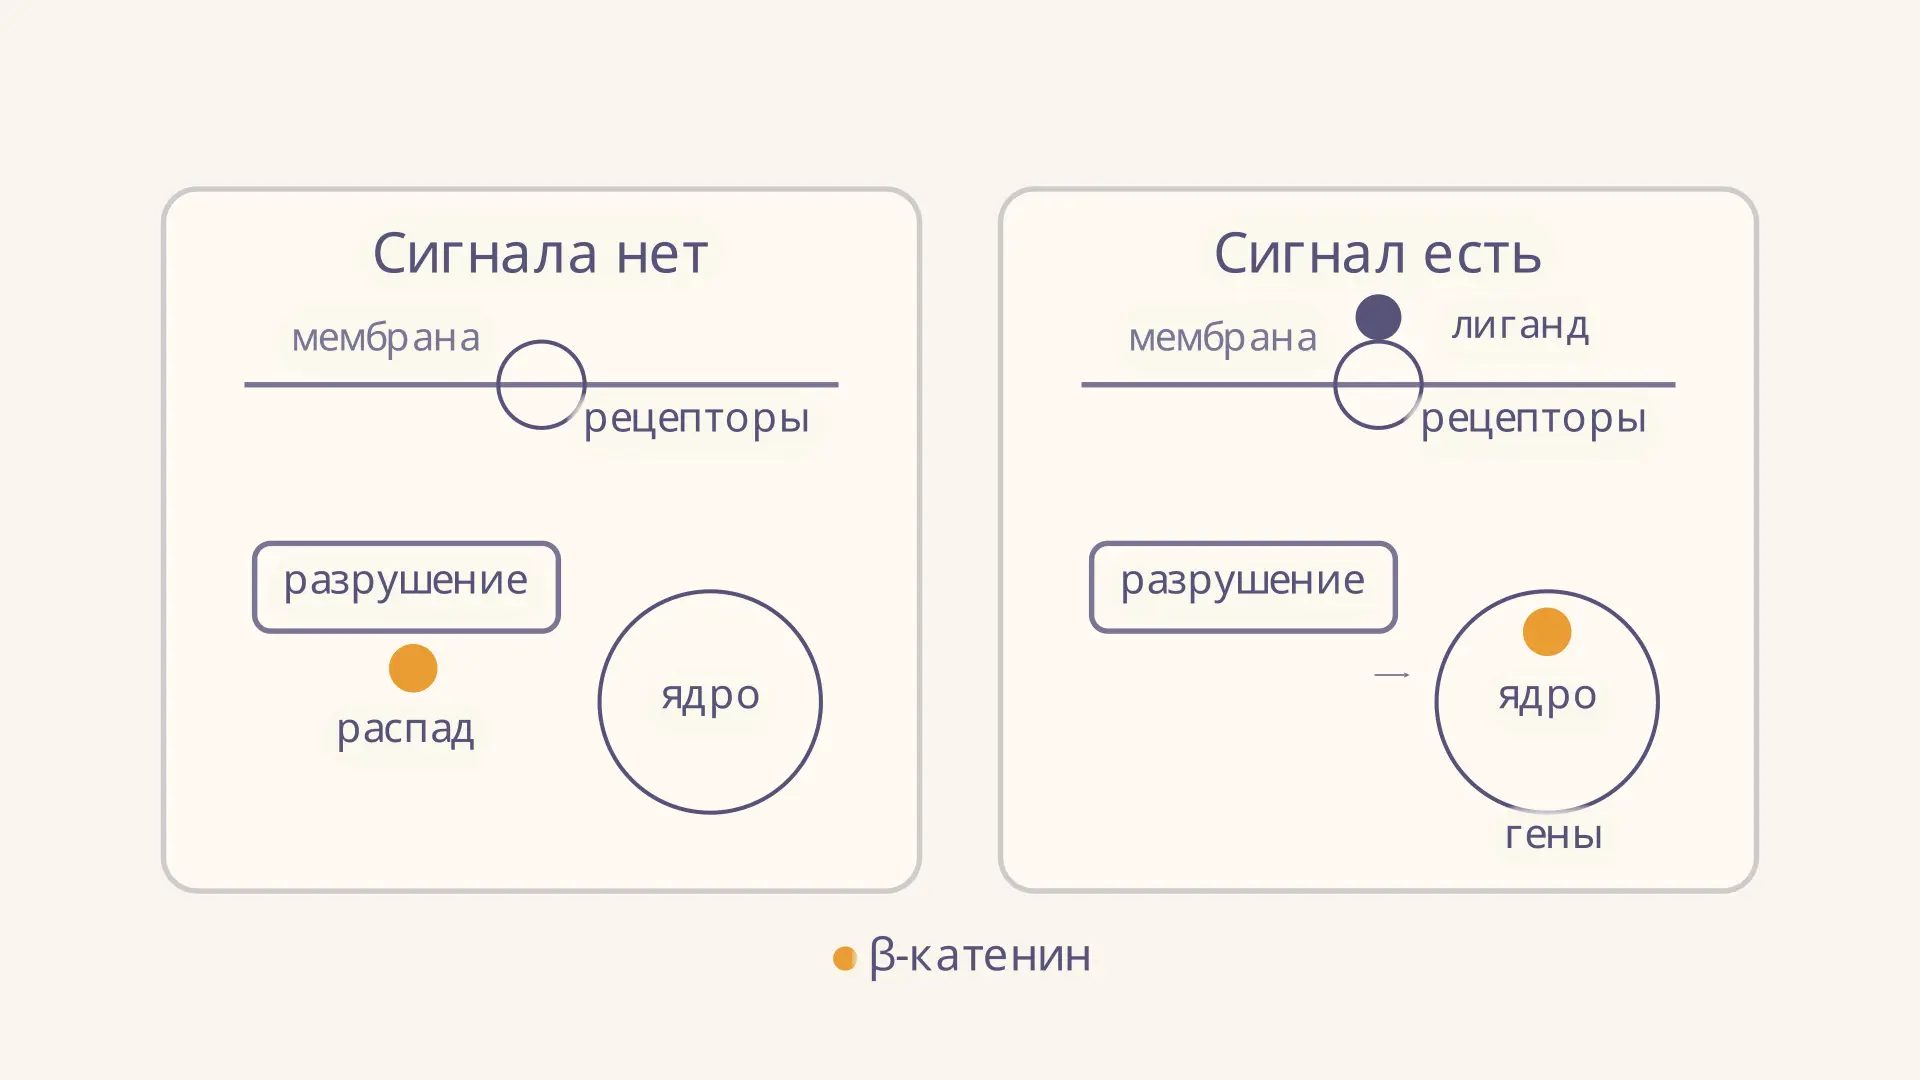
Сигнальный путь Wnt помогает клетке отвечать на сообщения окружающей ткани: сохранять способность делиться, менять специализацию или участвовать в формировании органа. В его наиболее изученной, канонической ветви ключевую роль играет белок β-катенин. Без сигнала свободный β-катенин непрерывно направляется на разрушение; при наличии сигнала он стабилизируется и помогает включать определённые гены. Выберите ситуацию в инструменте, чтобы проследить эту цепочку, а затем проверьте каждый её шаг ниже.
Главная идея: регулировать разрушение белка
Wnt - название семейства секретируемых сигнальных белков и связанных с ними путей передачи сигнала. Рассмотрим сначала каноническую ветвь, зависящую от β-катенина. Её удобно представить как контроль запаса белка: клетка производит β-катенин, а специальный комплекс помогает удалять свободную цитоплазматическую фракцию. Сигнал ослабляет эту систему удаления. В результате больше β-катенина становится доступно для работы в ядре.
Это схема причинных связей, а не съёмка молекул: положение и скорость точек не соответствуют измеренным величинам. Реальная клетка содержит много молекул каждого участника, а их взаимодействия регулируются контекстом. Кроме того, β-катенин участвует в межклеточной адгезии в комплексах с кадгеринами; схема здесь относится прежде всего к свободной сигнальной фракции.
Без Wnt: комплекс разрушения удерживает ответ низким
Когда канонический сигнал отсутствует, белки Axin и APC организуют комплекс разрушения β-катенина. В нём также работают киназы CK1 и GSK3. Они последовательно фосфорилируют β-катенин: присоединяют фосфатные группы к определённым участкам белка. Эта метка позволяет системе убиквитинирования распознать его; затем β-катенин направляется в протеасому и разрушается.
Важно различать этапы. Фосфорилирование само по себе не равно протеолизу, а комплекс не «выключает» синтез β-катенина. Он способствует удалению белка после его образования. Поэтому уровень свободного β-катенина обычно остаётся низким, и в ядре мало материала для активации генов-мишеней. Факторы семейства TCF/LEF при отсутствии β-катенина могут быть связаны с корепрессорами и удерживать соответствующие гены в подавленном состоянии.
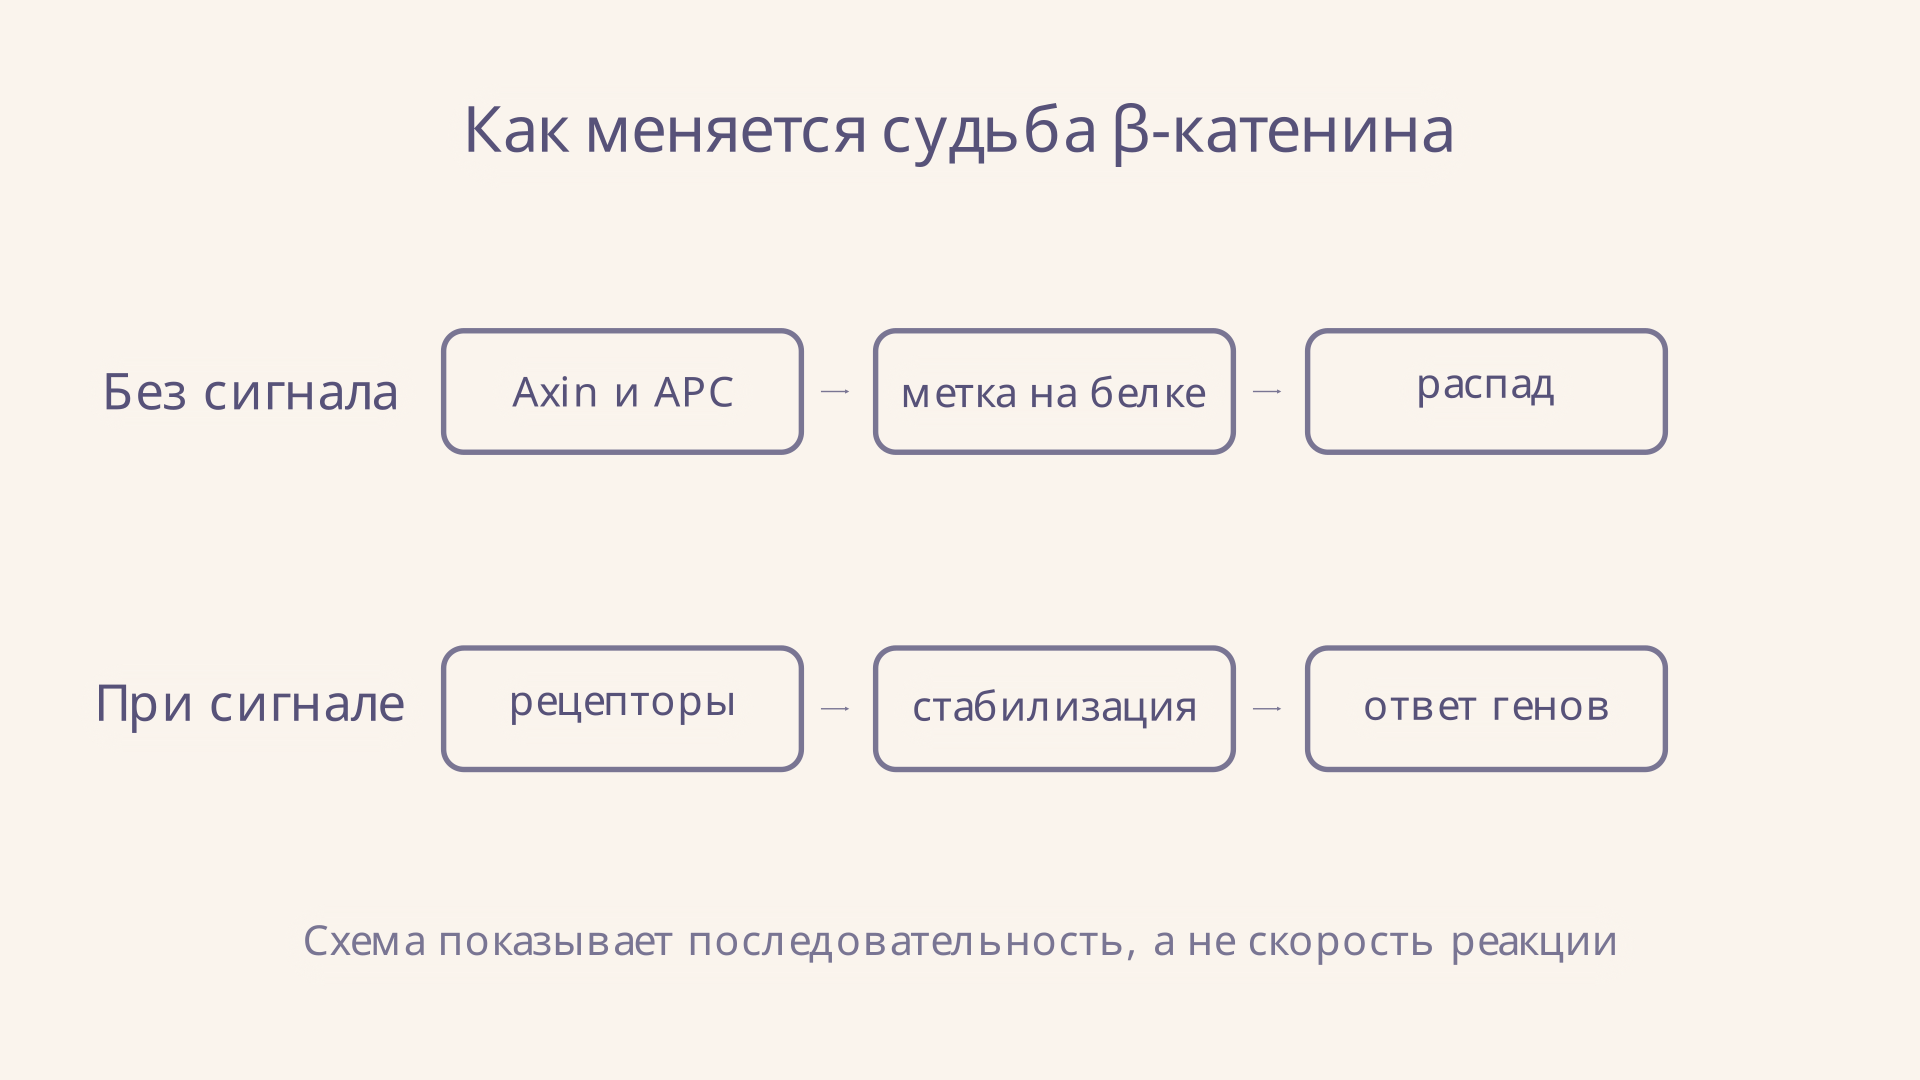
На рисунке показаны два качественных состояния, а не абсолютное отсутствие или бесконечное накопление белка. Даже при активном пути остаются другие механизмы регулирования его количества и ответа генов.
При сигнале: рецепторы меняют судьбу β-катенина
Лиганд Wnt связывается с рецептором семейства Frizzled и корецептором LRP5 или LRP6 на поверхности воспринимающей клетки. Формируется сигнальный комплекс с участием внутриклеточного белка Dishevelled. Фосфорилированный LRP привлекает Axin, а активность системы, направляющей β-катенин на разрушение, снижается.
Суть этого шага - не простое исчезновение всех компонентов комплекса. Исследование в клеточных системах показало, что подавление разрушения β-катенина возможно при сохранении комплекса Axin: изменяется его работа с субстратом, а не обязательно разрушается вся структура (Li и соавт., Cell). Молекулярные детали зависят от условий и продолжают изучаться.
Стабилизированный β-катенин накапливается и получает возможность попасть в ядро. Там он взаимодействует с TCF/LEF и другими регуляторными белками. Состав комплекса на ДНК меняется, и транскрипция некоторых генов-мишеней усиливается. Сам β-катенин не следует представлять как универсальный выключатель всех генов: результат определяется доступностью участков ДНК, партнёрами и типом клетки.
Для сравнения, в сигнальном пути Notch для типичной активации важен контакт соседних клеток и высвобождение внутриклеточного фрагмента самого рецептора. В каноническом Wnt сигнал передаётся через изменение стабильности отдельного внутриклеточного белка.
Какие гены отвечают и почему важен контекст
Среди известных генов, способных отвечать на Wnt/β-катенин, - AXIN2, LGR5 и MYC. Это не обязательный список для каждой клетки: наличие рецепторов, белков-партнёров и доступной хроматиновой среды влияет на результат. Так одна и та же общая цепочка может помогать поддерживать популяцию клеток в одной ткани и участвовать в выборе клеточной судьбы в другой.
AXIN2 особенно полезен для понимания обратной связи. Его продукт связан с системой регуляции β-катенина, поэтому включение гена может способствовать последующему ограничению сигнала. Между началом сигнала, накоплением белка и ответом генов существуют задержки; рисунок с двумя состояниями не измеряет их длительность и не предсказывает точную силу ответа.
При решении задачи сначала спросите, какая именно клетка рассматривается, сохранны ли её рецепторы и комплекс разрушения, а также какой показатель наблюдают: уровень белка, его расположение или транскрипцию гена. Эти показатели связаны, но не тождественны. Например, наличие β-катенина у клеточной мембраны само по себе не доказывает активацию ядерных генов Wnt.
Wnt в развитии и обновлении кишечника
Во время развития зародыша сигналы Wnt участвуют в пространственной организации тканей и выборе клеточных программ. Они действуют вместе с другими путями: ответ зависит не только от присутствия лиганда, но и от того, какие сигналы клетка получает одновременно. Пространственное положение клеток важно, например, при образовании нервной трубки и развитии нервного гребня.
У взрослого человека одна из наглядных систем - кишечный эпителий. В основании крипт находится ниша, поддерживающая стволовые и ранние клетки-предшественники; сигналы Wnt помогают сохранять эту популяцию. По мере перемещения клеток и их дифференцировки окружение и набор сигналов меняются. Строение ниши подробнее разобрано в статье о криптах тонкой кишки.
Маркер LGR5 связан с популяцией кишечных стволовых клеток, но маркер - это способ распознавания, а не доказательство, что один белок в одиночку создаёт стволовость. Ниша включает несколько типов клеток и регуляторов. Поэтому вывод о функции пути требует эксперимента с учётом ткани, а не только обнаружения названия гена в анализе.
Мутации APC и опухолевый рост
APC - белок-супрессор опухолевого роста и участник комплекса разрушения. Если его функция нарушена, контроль над β-катенином может ослабнуть даже без обычного внешнего сигнала Wnt. В исследовании клеток и опухолей толстой кишки нарушения APC либо активирующие изменения β-катенина были связаны с усилением β-катенин/TCF-зависимой транскрипции (Morin и соавт., Science).
Это объясняет, почему мутация на нижнем уровне цепи может обойти рецепторный контроль. Если механизм разрушения уже неисправен, отсутствие лиганда не обязательно вернёт систему к норме. Однако одной схемы недостаточно для предсказания поведения конкретной опухоли: имеют значение конкретный вариант мутации, другие изменения клетки и тканевая среда. Связь с путём также не делает результат анализа самостоятельным диагнозом или выбором лечения.
Неканонические ветви: не всё сводится к β-катенину
Под названием Wnt объединяют и β-катенин-независимые ветви. Например, сигналы могут влиять на планарную полярность клеток в плоскости ткани или на внутриклеточную передачу с участием кальция. Набор рецепторов и корецепторов помогает определить, какая программа будет запущена; один и тот же лиганд нельзя безусловно назвать строго каноническим для всех клеток.
Полезно начинать разбор с вопроса: какой выход пути измеряется? Накопление β-катенина и активация TCF/LEF относятся к каноническому описанию. Изменение ориентации клеток или кальциевого сигнала требует рассматривать соответствующие альтернативные механизмы, а не автоматически подставлять комплекс разрушения в любую схему Wnt.
Частые ошибки
- «Wnt создаёт β-катенин с нуля». Главный рассматриваемый эффект - стабилизация уже синтезируемого белка за счёт уменьшения его разрушения.
- «Комплекс разрушения полностью исчезает». Его активность может быть подавлена без обязательного распада всех составляющих.
- «β-катенин напрямую связывает ДНК вместо TCF». Он работает в составе регуляторного комплекса с ДНК-связывающими факторами и другими партнёрами.
- «Любой сигнал Wnt вызывает деление». Ответ зависит от ткани, рецепторов и других регуляторов; существуют и β-катенин-независимые ветви.
- «Мутация APC равна готовому диагнозу». Её эффект и клиническое значение оценивают в конкретном контексте вместе с другими данными.
FAQ
Что такое лиганд Wnt? Это секретируемый сигнальный белок семейства Wnt, способный взаимодействовать с рецепторами воспринимающей клетки. Семейство включает разные белки, а их эффекты зависят от рецепторного окружения.
Зачем β-катенину ядро? В ядре он взаимодействует с факторами TCF/LEF и помогает формировать комплекс, регулирующий транскрипцию генов-мишеней. Точный набор мишеней зависит от клетки.
Всегда ли отсутствие Wnt означает низкий β-катенин? Нет. Например, дефект APC или определённые изменения самого β-катенина могут нарушить обычный контроль его разрушения и поддерживать активность пути независимо от лиганда.
Коротко
Канонический путь Wnt связывает сигнал у мембраны с контролем стабильности β-катенина. Без сигнала комплекс Axin–APC и киназы помогают направить его на разрушение; при активации Frizzled и LRP5/6 это разрушение ослабевает. β-катенин становится доступен ядру и вместе с TCF/LEF регулирует транскрипцию. Путь важен для развития и обновления тканей, а последствия его нарушения зависят от клетки и конкретного компонента.
Читайте также
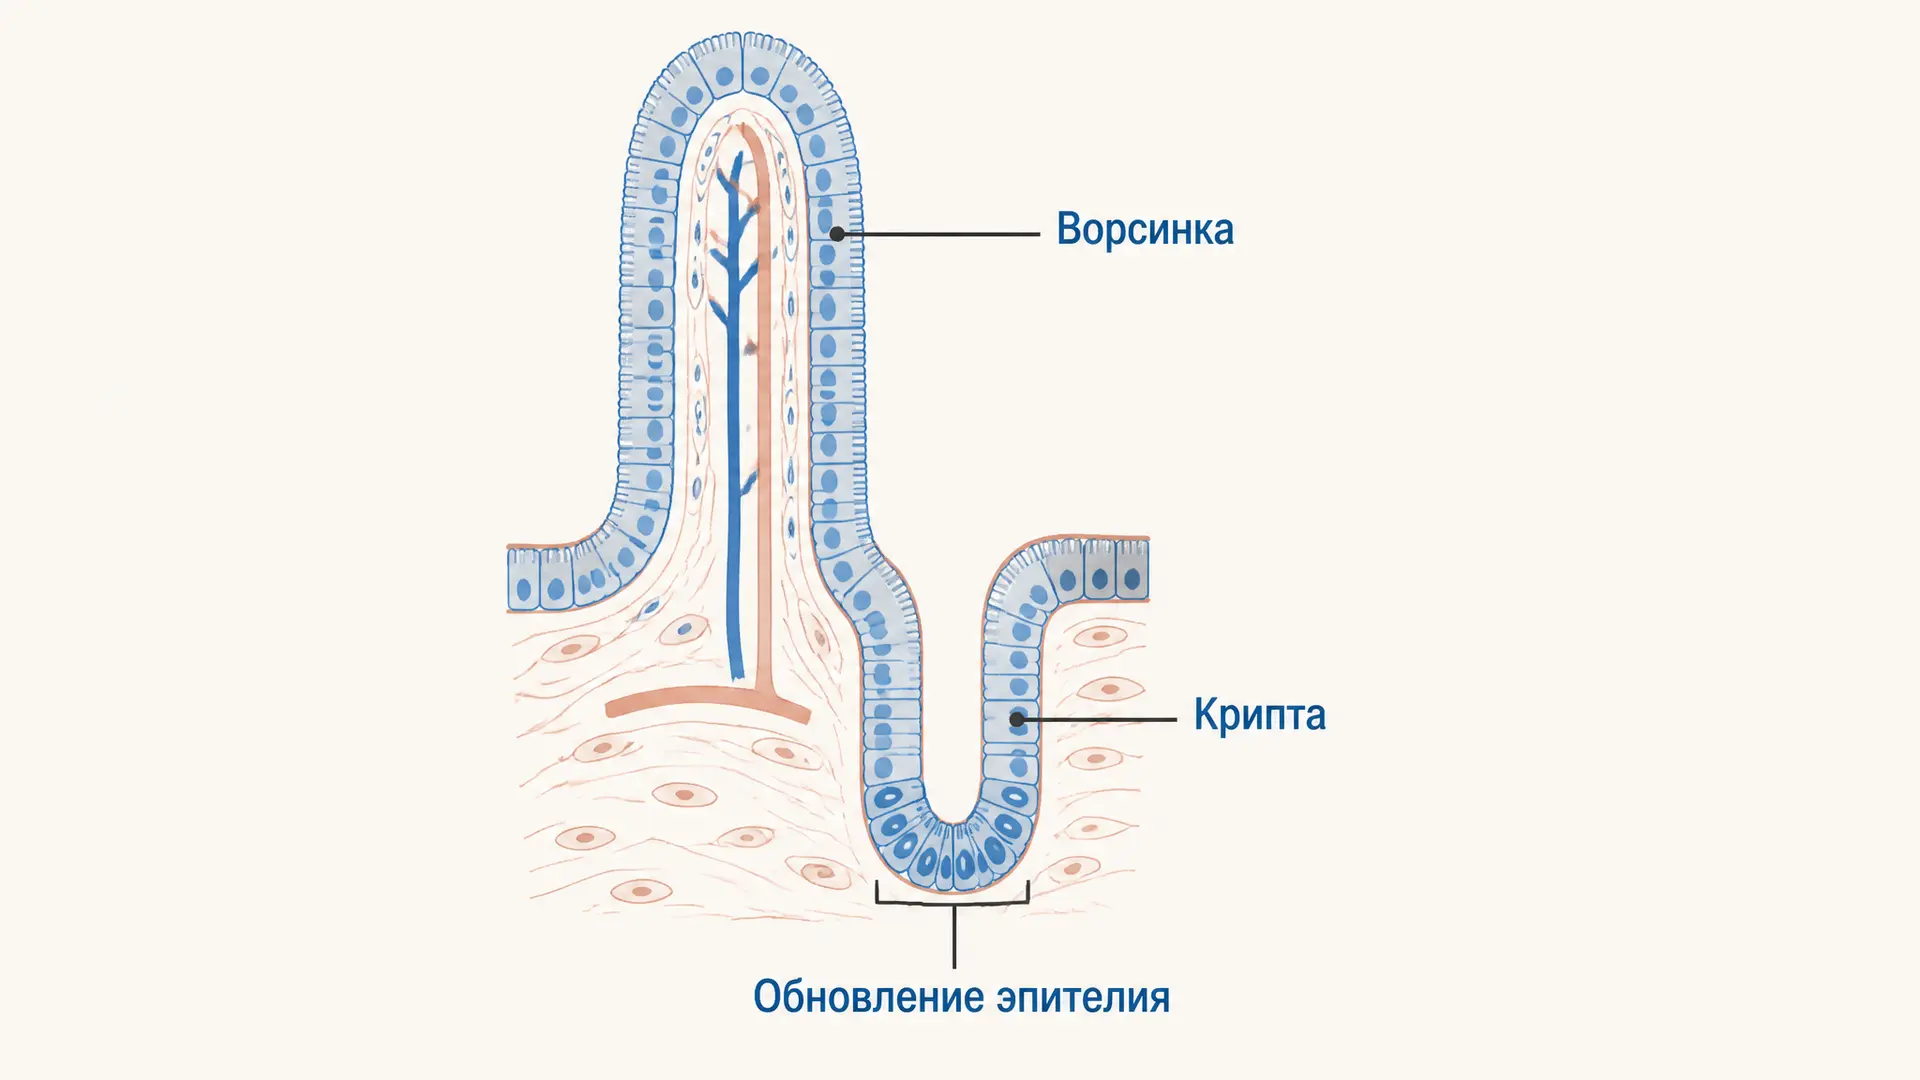
Крипты тонкой кишки: клетки, обновление и функции
Крипты тонкой кишки, или крипты Либеркюна: где находятся LGR5+ стволовые клетки, зачем нужны клетки Панета, как эпителий обновляется и что меняется при целиакии.
Строение красного костного мозга: строма и ниши
Строение красного костного мозга: строма, синусоидные капилляры, кроветворные островки, ниши стволовых клеток, возрастные изменения и методы исследования.
Клонирование организмов: методы, примеры, ограничения
Клонирование организмов: чем клон отличается от близнеца, как работает перенос ядра соматической клетки, почему появилась овца Долли и где проходят границы метода.
Стволовые клетки: виды по потентности и источнику
Виды стволовых клеток: классификация по потентности от тотипотентных до унипотентных и по источнику - эмбриональные, фетальные, взрослые и индуцированные иПСК, маркеры и применение.
Абсолютно неупругий удар: сохранение импульса
Как найти скорость тел после абсолютно неупругого удара, применить закон сохранения импульса и вычислить потерю кинетической энергии на понятных примерах с формулами.
Абсолютное и избыточное давление: формулы и вакуум
Абсолютное и избыточное давление, разрежение и вакуум: как выбрать начало отсчёта, перевести показания манометра и решить задачи с примерами в килопаскалях.